domingo, 31 de mayo de 2015

Los seres vivos y las condiciones de su entorno

Los organismos no vivimos aislados de lo que nos rodea. Nuestro medio nos afecta directa o indirectamente, condicionando nuestras posibilidades de sobrevivir. Las características ambientales que influyen sobre los seres vivos, provocando en ellos respuestas adaptativas, se denominan factores ambientales.

Cada tipo de organismo tiene unas ciertas preferencias ambientales. Podemos encontrarnos animales que viven perfectamente en ambientes cálidos, pero que no sobreviven por debajo de ciertas temperaturas, o peces que necesitan agua salada para sobrevivir, sin poder hacerlo en el agua dulce. Lo normal es que cada especie soporte un determinado rango de variación de las condiciones ambientales. Que vivan, por ejemplo, por encima de una cierta temperatura mínima y soporten hasta un valor máximo. En ese caso, los valores del factor ambiental que impiden la supervivencia de los organismos de una especie constituyen su zona de intolerancia. Dentro del rango de variación que toleran los organismos, algunos valores permiten su máximo desarrollo, por lo que se denominan zona óptima.

Los organismos tienden a colonizar los medios en las que sus condiciones de supervivencia son óptimas. En las zonas de intolerancia, o en las que tienen condiciones subóptimas, las probabilidades que tienen los individuos de no sobrevivir son elevadas, es decir, sufren una considerable presión selectiva.

Cada especie tiene diferentes rangos de tolerancia para los distintos factores ambientales que les afectan, es decir, pueden soportar mayores o menores variaciones de los factores ambientales. Las que se adaptan a grandes variaciones de un factor ambiental se denominan especies eurioicas, mientras que las que solo soportan pequeñas variaciones del factor se denominan estenoicas. Una especie puede ser estenoica para un factor y eurioica para otros, es decir, puede depender, por ejemplo, de que su entorno tenga una humedad ambiental concreta, pero adaptarse bien a cambios de temperatura. Para describir estas características de las especies las describimos utilizando los prefijos euri- y esteno- seguidos del nombre del factor ambiental al que se refiere la descripción. Así, una especie que solo soporta pequeñas variaciones en la humedad es estenohidra, mientras que una que puede adaptarse a grandes cambios de temperatura es euriterma.

Los factores ambientales que más afectan a los seres vivos son, en general, los climáticos, los hidrológicos y los que guardan relación con el suelo en el que viven (edáficos).

Temperatura

La temperatura del medio en el que viven los organismos puede presentar una gran variación en nuestro planeta, mayor en el medio terrestre que en el acuático debido al elevado calor específico del agua: en el medio terrestre podemos encontrar temperaturas que van desde los -60ºC hasta los 60ºC, mientras que en el medio acuático la temperatura oscila entre -2ºC y unos 50ºC.

La mayoría de los seres vivos está limitada, precisamente, a un rango de temperaturas que va desde los -2ºC a los 50ºC. Por debajo de los dos grados bajo cero el agua presente en el interior de sus células se congela, a pesar de las sustancias que se encuentran disueltas en ella, mientras que por encima de los 50ºC las proteínas pierden su forma tridimensional (se desnaturalizan) y con ello dejan de poder realizar sus funciones.

Existen algunas excepciones a estos límites, como ciertas bacterias (termófilas) que son capaces de sobrevivir por encima de los 85º C, en zonas de afloramiento de agua caliente procedentes del contacto con magmas, mientras que otras son capaces de soportar temperaturas en torno a los -30ºC.

Muchos organismos presentan características específicas que les permiten adaptarse a vivir en ciertas temperaturas. Las plantas adaptadas a las bajas temperaturas presentan formas redondeadas y pequeño tamaño, formando en ocasiones tapices vegetales que crean un microclima, lo que reduce su enfriamiento. La pérdida de las hojas durante las estaciones frías o la producción de sustancias anticongelantes también permiten a las plantas soportar los climas fríos.

Las temperaturas altas suelen ir asociadas a grandes pérdidas de agua por evaporación, por lo que las características de las plantas les permiten, sobre todo, evitar la deshidratación, ya que esta supone mayores problemas para ellas. En cualquier caso, la presencia de escamas, pelos o ceras que hacen a las hojas reflectantes, o la capacidad de mover las hojas (nastias) para evitar la luz incidente directa pueden considerarse adaptaciones a las altas temperaturas.

La principal adaptación de los animales a la temperatura es la capacidad de mantener constante la temperatura interna de su cuerpo, lo que se consigue de dos formas totalmente diferentes. Los ectotermos aprovechan la energía externa para conservar la temperatura del interior de su cuerpo, lo que logran modificando su actividad física a lo largo del día. Por el contrario, los animales endotermos consiguen mantener la temperatura de su cuerpo redistribuyendo el calor que se produce en su metabolismo interno. Para ello utilizan sus sistemas circulatorios para distribuir el calor por todo su cuerpo y el sudor para eliminar su exceso.

Otras adaptaciones animales a la temperatura son, por ejemplo, el desarrollo de estructuras aislantes, como almohadillas plantares que impiden la pérdida de calor a través del suelo, o el pelaje de invierno, que puede perderse en verano. En otros casos los animales modifican la actividad, como lo hacen los animales que hibernan (duermen durante el invierno) o estivan (duermen durante el verano), o cambian temporalmente su hábitat migrando.

Algunas adaptaciones a la temperatura son tan habituales, incluso entre grupos animales diferentes, que se consideran "reglas ecológicas", es decir, que se entienden como características generales o adaptaciones casi universales a unas condiciones u otras. Entre esas reglas ecológicas pueden citarse las siguientes:
  • La "regla de Bergmann" es la tendencia al aumento de tamaño medio (o de masa corporal) de las poblaciones de una especie, o de las especies dentro de un taxón, al aumentar la altitud o la latitud.
  • La "regla de Allen" afirma que dentro de taxones pequeños de vertebrados endotermos, los de ambientes cálidos tienden a tener apéndices (patas y orejas) más largos.
Estas adaptaciones suelen aparecer juntas, dando lugar a conjuntos de características que se denominan "síndromes de adaptación".


Agua

La humedad relativa, es decir, la proporción de agua en el ambiente respecto a la máxima cantidad de agua que podría haber en esas condiciones, influye enormemente sobre la capacidad de supervivencia de los organismos: todos los organismos pierden agua a través de la superficie de su cuerpo, y esa pérdida de agua es mayor cuanto más baja es la humedad relativa.

Muchos organismos son capaces de sobrevivir con una humedad relativa del 100%, pero no hay ninguno que pueda hacerlo si el ambiente es totalmente seco. En función de su necesidad de agua los seres vivos se clasifican en acuáticos, que precisan vivir dentro del agua, higrófilos, que necesitan ambientes muy húmedos, mesófilos, que tienen necesidades moderadas de agua y xerófilos, que soportan ambientes muy secos.

Los organismos se adaptan a la falta de humedad mediante el desarrollo de cubiertas aislantes (ceras en los vegetales, cubiertas de quitina o capas de moco que rodean al cuerpo en los animales), mediante la reducción de la superficie expuesta a la evaporación (transformación de hojas en espinas). También existen adaptaciones fisiológicas, es decir, modificación de la actividad del organismo en función de las condiciones del medio, como la limitación de floración y crecimiento de las plantas a los periodos lluviosos, o las migraciones en los animales.

Luz

La luz proporciona, en último término, toda la energía que utilizan los organismos. Hay dos características variables de la luz que afectan a los seres vivos: su intensidad y sus variaciones cíclicas.

En cuanto a la intensidad, muchos animales y plantas están adaptados a vivir en condiciones de escasez de luz. En las plantas las adaptaciones fundamentales son el aumento del tamaño de las hojas y el color oscuro, debido a la elevada concentración de pigmentos en ellas. En los animales las adaptaciones a la escasez de luz incluyen ojos de gran tamaño con pupilas muy grandes para permitir la entrada de toda la luz posible y sistemas de ecolocación para poder moverse guiándose por el oído. Algunos, incluso, se adaptan a vivir en oscuridad total, produciendo su propia luz o volviéndose totalmente ciegos.


La intensidad de luz y el tiempo que dura esta en el ambiente cambian periódicamente, tanto a lo largo del día como a lo largo del año.

El cambio de día a la noche afecta en gran medida a los organismos, haciendo que cambien su actividad. No solo existen animales de hábitos diurnos o nocturnos, sino que también las plantas pueden modificar su actividad en función de la cantidad de luz, por ejemplo abriendo o cerrando sus flores.

La duración del tiempo de luz en un día recibe el nombre de fotoperiodo, y es una característica ecológica que condiciona muchas de las actividades de plantas y animales, como la producción de flores, la caída de las hojas, la entrada o salida del letargo, la muda de piel o plumas, la reproducción o las migraciones.

Los biotopos

Un biotopo es un área de condiciones ambientales uniformes que proporciona un espacio vital a un conjunto de seres vivos. Los diferentes biotopos se caracterizan porque en cada uno de ellos se da una combinación concreta de factores ambientales, que actúan conjuntamente sobre los organismos que los ocupan. Los seres vivos se adaptan globalmente al conjunto de condiciones que se presentan en el biotopo en el que viven.

Existen dos grandes grupos de biotopos: los medios acuáticos y los terrestres. En los medios acuáticos los organismos viven flotando, en el seno del agua o descansando sobre el fondo. La humedad relativa es del 100% y las temperaturas varían poco y cuando cambian lo hacen lentamente debido al elevado calor específico del agua. Los factores ecológicos que más importancia tienen sobre los seres vivos son la luz, la cantidad de oxígeno, más abundante en aguas frías, y las características químicas del agua como el pH o la salinidad. La luz es intensamente absorbida por el agua, lo que crea una estratificación fundamental en el interior de los medios acuáticos: la parte superior del agua es la zona fótica, donde pueden sobrevivir los organismos fotosintetizadores, mientras que la inferior, la zona afótica, depende ecológicamente de la superior.

En el medio terreste, en cambio, aunque hay algunos organismos que utilizan el aire como medio de desplazamiento todos los seres vivos reposan, durante la mayor parte del tiempo, sobre la superficie del suelo. Esto hace que las características ecológicas del medio terrestre dependan de la superficie del terreno, mientras que las del medio acuático dependen del volumen del agua. La cantidad de oxígeno disponible siempre es alta, y los factores ecológicos que afectan a los organismos son, fundamentalmente, la temperatura y la humedad ambiental.

En el medio terrestre la interacción de varios factores ambientales (temperatura, humedad, viento y cantidad de luz) da lugar al clima, un factor ecológico global que afecta y determina la distribución geográfica de los seres vivos, hasta el punto de que el macroclima, es decir, el conjunto de condiciones climáticas que afectan de manera homogénea a amplias regiones de nuestro planeta, es el factor que determina la distribución geográfica de los grandes ecosistemas o biomas.

Pero además el clima también afecta a una escala menor: el microclima, es decir, el conjunto de características climáticas que pueden variar de unas zonas a otras dentro del mismo ecosistema, influye en la distribución de los seres vivos dentro de cada comunidad.

Para los organismos que tienen una mayor relación con el suelo, en especial las plantas y los pequeños animales que viven en su capa superficial (edafón), los factores edáficos, es decir, las características ecológicas del suelo, también tienen un especial interés. Una de las características más influyentes es la composición del suelo, dentro de la cual son variables importantes la cantidad de agua, la concentración de calcio o de nitrógeno y el pH, que condicionan el desarrollo de ciertos tipos de plantas. La otra característica fundamental que afecta a los organismos relacionados con el suelo es su estructura, es decir, su diferenciación en capas con más o menos materia orgánica y el tamaño de las partículas que lo forman, que pueden dejar espacios para ser ocupados  por el agua o el aire.

domingo, 10 de mayo de 2015

Sistema Inmunitario III: aspectos médicos

El funcionamiento del sistema inmunitario tiene importantes implicaciones biomédicas. Por una parte, sus alteraciones dan lugar a problemas de salud que pueden ser muy importantes, e incluso producir la muerte, y por otra hemos aprendido a servirnos de él para desarrollar estrategias de prevención y tratamiento de enfermedades infecciosas, mediante lo que se conoce como "terapias inmunológicas".

Terapias inmunológicas: vacunación y seroterapia.

La primera modalidad de terapia inmunológica que se desarrolló fue la vacunación, que consiste en inducir una respuesta inmunitaria en el organismo tratado antes de que sufra la infección por el agente contra el que se vacuna. Este tipo de terapia se beneficia de la capacidad de los organismos para producir células de memoria una vez que han sido capaces de superar una infección.

El procedimiento de la vacunación consiste en provocar una "falsa infección" mediante la inoculación en el paciente de un agente infeccioso o una parte de él que no sea capaz de provocar la enfermedad, pero sí una respuesta inmunitaria en el individuo. Éste responde al falso patógeno y genera células de memoria que se mantendrán en su interior. Si posteriormente el individuo es infectado por un patógeno "auténtico" estas células de memoria provocarán una respuesta inmunitaria secundaria, es decir, específica, intensa y prolongada en el tiempo, que impedirá el desarrollo de la enfermedad.

Así pues, una vacuna es un preparado que contiene antígenos de un organismo patógeno y que se administra, con carácter preventivo, para que el individuo vacunado produzca su propia respuesta inmunitaria frente a dicho patógeno. 

La vacunación es una terapia inmunológica preventiva, porque se administra antes de que el individuo entre en contacto con el patógeno y es también activa, porque se consigue que el individuo genere sus propios mecanismos de defensa activa. Tiene carácter permanente, o al menos muy duradera, porque se producen células de memoria que permanecen durante mucho tiempo en los individuos vacunados.

El problema fundamental en la producción de una vacuna es obtener un preparado capaz de inducir la respuesta inmunitaria sin producir la enfermedad. Existen varios métodos para conseguir estos preparados, que diferencian distintos tipos de vacunas:
  • Vacunas atenuadas: el microorganismo se pasa por generaciones de cultivos celulares u organismos diferentes al ser humano, de manera que con el paso del tiempo va perdiendo su capacidad para reproducirse en el hombre. También puede utilizarse el calor o distintos agentes químicos. Tienen el inconveniente de su falta de seguridad, porque la atenuación puede revertir espontáneamente, aunque esto es muy poco probable, pero tienen la ventaja de producir una respuesta muy intensa. Hay vacunas de este tipo tanto contra enfermedades víricas (varicela, sarampión...) como contra enfermedades bacterianas, como el tifus o el cólera.
  • Vacunas inactivadas o muertas: en este caso se mata o se destruye al agente patógeno para producir la vacuna, con lo que se elimina el riesgo de reversión, aunque también se reduce la capacidad para inducir respuesta inmune. La vacuna de la polio, o las de la hepatitis son ejemplos de vacunas víricas de este tipo, mientras que las de la difteria o el tétanos son vacunas bacterianas muertas.
  • Vacunas de partes de microorganismos: en lugar de inyectar al organismo muerto entero se separan algunas de sus partes, preferentemente proteínas de la superficie de la célula. Estos componentes pueden obtenerse directamente del agente infeccioso o clonando sus genes en un vector que los expresen pero que no puede producir la enfermedad.
  • Vacunas de ADN: se inyecta directamente ADN del microorganismo en el paciente. El gen se expresa en el interior del paciente y éste desencadena una respuesta inmunitaria contra la proteína codificada. No son aún de uso clínico, aunque se sigue investigando en ellas.
A diferencia de la vacunación, la seroterapia consiste en inyectar directamente en el paciente que ya ha contraído la enfermedad un suero, es decir, un extracto sanguíneo, de un organismo que ha padecido y superado esa misma enfermedad y que, por lo tanto, posee anticuerpos contra ella. El tratamiento con sueros es de naturaleza curativa, ya que se administran anticuerpos que tratan de eliminar el patógeno que ya se encuentra en el organismo. Es también pasivo, porque no da lugar a la producción de anticuerpos propios ni de células de memoria en el organismo, y es temporal porque resulta eficaz solo mientras duran los anticuerpos inyectados. Cuando estos se degradan y eliminan la protección que proporcionan desaparece.

El método de producción de sueros consiste en inocular un animal con el agente patógeno que provoca la enfermedad que se desea tratar. El sistema inmunitario del animal produce anticuerpos contra el patógeno, que se obtienen mediante una extracción de sangre para luego purificarse. Este preparado purificado es el que se administra al paciente que se está tratando.

La seroterapia se utiliza contra algunas enfermedades para las que no existe vacuna, o para tratar de eliminar toxinas, tales como los venenos de serpiente. Cuando el suero se obtiene de animales se denomina heterólogo, pero en algunos casos, como ha ocurrido recientemente con el Ébola, también puede obtenerse de pacientes humanos que han sufrido la enfermedad de modo natural y que han conseguido superarla espontáneamente, caso en el que se habla de sueros homólogos.

La eficacia de los sueros puede incrementarse enormemente si se utilizan anticuerpos monoclonales. Para conseguirlos la sangre extraída del animal se somete a un proceso de purificación mediante cromatografía con los antígenos que provocan la enfermedad. De este modo se consigue separar las células productoras de los anticuerpos que se buscan de otros componentes de la sangre. Luego esas células se fusionan con células tumorales, con lo que se consigue que se reproduzcan de forma indefinida. El cultivo de estas células permite obtener cantidades considerables de anticuerpos, iguales entre ellos y que reaccionan contra el antígeno que produce la enfermedad. 

En ocasiones se puede utilizar una estrategia combinada de seroterapia y vacunación, que consiste en inocular el suero cuando se sospecha que ha podido existir una infección por el agente patógeno, como mecanismo preventivo para evitar la enfermedad, y utilizar después la vacuna para prevenir posibles infecciones posteriores. Este es el caso del tratamiento del tétanos cuando se sufre un corte; la primera inyección que se suministra es el suero, con el propósito de eliminar la bacteria si se ha entrado en contacto con ella, y después se usa la vacuna, para prevenir los futuros contagios, ya que esta vacuna no tiene efectos permanentes.

Alteraciones del sistema inmunitario

Los problemas de salud derivados del mal funcionamiento del sistema inmunitario incluyen tanto una actividad demasiado baja (inmunodeficiencia) como una actividad excesiva, que genera respuestas contra elementos que no suponen ningún peligro para el organismo.

La primera función del sistema inmunitario es diferenciar entre lo propio y lo ajeno, y la segunda es distinguir, de entre lo ajeno, qué puede ser peligroso y qué es inofensivo. Cuando falla alguno de esos procesos nos encontramos ante una alteración inmunitaria.

La hipersensibilidad es una reacción inmunitaria excesiva frente a sustancias que normalmente son inofensivas, como algunos alimentos, sustancias que se encuentran normalmente en el ambiente como el polen o ciertos medicamentos.

Existen cinco tipos de reacciones de hipersensibilidad, tres de los cuales se producen de forma inmediata o casi inmediata (tipos I a III), mientras que las de tipo IV constituyen la hipersensibilidad retardada. La hipersensibilidad de tipo V actúa frente a receptores hormonales, reproduciendo la actividad de tales hormonas. Las diferencias entre los tres primeros tipos de hipersensibilidad se deben al tipo de componentes que están implicados en ellas: anticuerpos en la hipersensibilidad de tipo I (alergias), procesos de citotoxicidad por el sistema del complemento en las reacciones de tipo II y complejos antígeno-anticuerpo en las de tipo III. En la hipersensibilidad retardada (tipo IV) solo participan linfocitos T.

Las alergias se producen porque cuando el individuo entra en contacto con el alérgeno produce ante él una respuesta inmunitaria primaria, pero en la que interviene la inmunoglobulina E en lugar de las IgM o de las IgG. Esta es la fase de sensibilización, y no da lugar a ningún síntoma.

Las IgE se asocian a la membrana de diferentes tipos de leucocitos, en especial mastocitos y basófilos. Cuando se produce el segundo contacto con el alérgeno se activan esos anticuerpos de tipo IgE, y los leucocitos que los presentan liberan sustancias que provocan los síntomas de la alergia, como histamina, heparina o leucotrienos. Los síntomas de la alergia incluyen fiebre, inflamación, erupciones en la piel, etc. Entre las enfermedades alérgicas más frecuentes se encuentran la rinitis, la conjuntivitis, la dermatitis alérgica o el asma, llegando en las situaciones más graves hasta el choque anafiláctico, que puede provocar la muerte.

En las reacciones de hipersensibilidad de tipo II los anticuerpos activan al complemento, y esto da lugar a la rotura de las células. Este tipo de reacciones se producen, por ejemplo, en transfusiones sanguíneas entre grupos no compatibles o en la anemia hemolítica del recién nacido, en la que existe incompatibilidad entre el factor Rh de la madre (negativo) y el del feto (positivo).

Las situaciones de inmunodeficiencia pueden ser congénitas, llamadas también primarias y adquiridas o secundarias. Las primarias suelen estar ligadas al cromosoma X, y pueden desembocar en enfermedades muy graves como los "niños burbuja", mientras que las secundarias se pueden presentar después de muchas enfermedades graves como el cáncer, enfermedades que afectan a la sangre o incluso la diabetes. El uso de inmunosupresores tras transplantes de órganos, o la malnutrición también provocan inmunodeficiencias.

Una causa bien conocida de inmunodeficiencia es la infección por el VIH, que afecta específicamente a un tipo de linfocitos T, "enmascarándolos" y haciendo que no cumplan sus funciones dentro de la respuesta inmunitaria.

Autoinmunidad

El mecanismo que hace posible que el sistema inmunitario no responda ni ante los elementos propios ni ante elementos extraños pero inofensivos recibe el nombre de tolerancia y se produce durante las primeras etapas del desarrollo, mediante eliminación por apoptosis de los linfocitos que reaccionan contra células del propio organismo. Si esos mecanismos de eliminación fallan se producen enfermedades autoinmunes, que pueden afectar solo a un órgano (diabetes juvenil autoinmune, esclerosis múltiple...) o a varios órganos (lupus eritematoso sistémico, artrititis reumatoide, vasculitis, sarcoidosis...).

Sistema inmunitario II

El sistema inmunitario de los mamíferos permite desarrollar dos tipos diferentes de respuesta inmunitaria: una respuesta inespecífica, que recibe también el nombre de respuesta innata, y que es similar ante cualquier tipo de agente infeccioso potencialmente patógeno, y una respuesta específica o adaptativa, que supone el reconocimiento del agente infeccioso y la producción de anticuerpos capaces de unirse a él de modo específico. Ambas respuestas incluyen componentes humorales, es decir, sustancias químicas que se encuentran solubilizadas en el plasma sanguíneo, y componentes celulares.

Componentes de la respuesta celular

La mayor parte de las células que intervienen en los procesos de defensa del organismo tienen su origen en la médula ósea roja, órgano situado en el interior de los huesos en el que se forman todos los elementos formes de la sangre, incluyendo los eritrocitos y las plaquetas. Todas estas células se forman a partir de un único tipo celular, las células madres hematopoyéticas, que se diferencian en dos linajes, uno de los cuales da lugar a las células que intervienen en los procesos inespecíficos de la inmunidad (precursor mieloide), mientras que el otro, llamado precursor linfoide, forma los linfocitos B y los linfocitos T, que participan en la respuesta adaptativa. Una característica peculiar de estos dos tipos celulares es que no se dividen cuando circulan por la sangre, ni siquiera en presencia de factores de crecimiento.

Las células de la línea mieloide participan en la respuesta inmunitaria fagocitando cualquier partícula extraña presente en la sangre o en los tejidos, entre las células. Esas "partículas extrañas" incluyen tanto agentes infecciosos como virus, bacterias, etc., como restos de células muertas del propio organismo o células transformadas.

La fagocitosis incluye tres fases: adsorción del elemento extraño a la célula fagocítica, endocitosis de la partícula y digestión, que se produce mediante la fusión de lisosomas con el endosoma que contiene la partícula fagocitada.

Para que se produzca la adsorción tiene que darse un cierto grado de reconocimiento entre el fagocito y el agente patógeno. El reconocimiento más simple se produce, simplemente, por atracción hidrófoba entre ambas membranas. Otro mecanismo diferente es la opsonización, que consiste en la unión de las partículas extrañas a proteínas del sistema del complemento. Finalmente, el reconocimiento más específico se produce si la célula fagocítica tiene en su superficie anticuerpos que se unan a la partícula extraña. Este proceso se da en los linfocitos T, y forma parte de la respuesta adaptativa.

Una vez digeridas las partículas extrañas, muchas células fagocíticas tienen la capacidad de "presentar" partes de las partículas extrañas a otras células del sistema inmunitario, para que sean reconocidas por ellas y poder desencadenar la respuesta adquirida. La presentación de antígenos es un proceso de exocitosis: los antígenos, que en general son proteínas o glucoproteínas presentes en la membrana de las células extrañas. Una vez digeridas las células extrañas algunos fragmentos de sus proteínas de membrana (antígenos) se incorporan a la membrana del lisosoma. La vesícula se dirige hacia el exterior de la célula y su membrana se fusiona con la membrana plasmática, de modo que los antígenos quedan expuestos al exterior, unidos a proteínas del complejo mayor de histocompatibilidad (HMC).


En los ganglios linfáticos los linfocitos, que presentan anticuerpos en su superficie, se aproximan a las células presentadoras de antígenos. Si el anticuerpo del linfocito "encaja" con el receptor situado en la superficie de las células T, similar a los anticuerpos, éstas se activan y pueden empezar a atacar a los agentes infecciosos. Los linfocitos B pueden reconocer directamente a los antígenos, y son activados por linfocitos T que han sido previamente seleccionados por el antígeno al que reconocen.

Componentes de la respuesta humoral

El componente inespecífico de la inmunidad humoral es el sistema del complemento, un conjunto de proteínas que circulan en el plasma sanguíneo en forma de proenzimas, es decir, con una estructura tridimensional inactiva, que para ser funcional debe ser cortada por otra proteína, formando una cadena de activación: un primer estímulo provoca la activación de la primera proteína de la cadena, que a su vez activa a otra o varias proteínas cortándolas por el lugar adecuado, lo que expone su centro activo.

El complemento provoca diferentes efectos durante la respuesta inmunitaria: inflamación, rotura de células agresoras y opsonización. La opsonización consiste en el "marcaje" de los agentes infecciosos mediante la unión de alguna de las proteínas del complemento a su superficie. El conjunto patógeno-proteína del complemento (opsonina) puede ser reconocido por los fagocitos, lo que facilita su eliminación del organismo.

La respuesta humoral específica corre a cargo de los anticuerpos. Los anticuerpos son un tipo de proteínas solubles (inmunoglobulinas) que pueden unirse específicamente a otras moléculas debido a que su centro activo encaja en ellas, del mismo modo que las enzimas encajan con sus sustratos.

La estructura de las inmunoglobulinas consiste en cuatro cadenas de proteína, iguales dos a dos: un par de cadenas pesadas y otras dos cadenas ligeras unidas entre sí mediante puentes disulfuro, es decir, enlaces covalentes entre cisteínas de cadenas diferentes.

El hecho de que los anticuerpos sean proteínas cuya estructura primaria está determinada por la secuencia de nucleótidos de sus genes plantea dos problemas teóricos. En primer lugar, su número es limitado, ya que las células productoras de anticuerpos tienen el mismo número de genes que las demás, y solo unos cuantos de ellos pueden dedicarse a la producción de inmunoglobulinas. Por otra parte, la estructura terciaria de los anticuerpos está determinada antes de que los antígenos lleguen hasta el organismo, porque ya está fijada en los genes de las células productoras. En consecuencia, nuestro cuerpo contaría con un número determinado de anticuerpos diferentes, cada uno de ellos con una estructura fija, en cualquier caso mucho menos variable que los posibles antígenos con los que podrían enfrentarse a lo largo de la vida del organismo.

Afortunadamente este problema no existe porque ciertas regiones de los genes que codifican las inmunoglobulinas (las regiones variables y las regiones hipervariables) sufren con gran frecuencia mutaciones somáticas cuyo resultado es que cada célula precursora linfoide produzca anticuerpos diferentes a las demás. De esta forma, los linfocitos B y los linfocitos T procedentes de esa célula llevan los mismos anticuerpos, que son únicos en el organismo. Gracias a esa variabilidad, que se va generando continuamente, el organismo tiene una diversidad de anticuerpos suficiente como para enfrentarse a muchos de los posibles antígenos que puedan llegar hasta él.

En el organismo existen cinco tipos básicos de inmunoglobulinas que se diferencian entre sí fundamentalmente por su estructura cuaternaria y por las funciones que realizan.

Las inmunoglobulinas D, E y G tienen la estructura descrita previamente de dos cadenas pesadas y dos cadenas ligeras, diferenciándose entre sí por el tipo de cadena pesada que presentan. Las inmunoglobulinas G son las más abundantes, y se encuentran en el plasma sanguíneo y en el líquido intercelular. Las inmunoglobulinas D, por su parte, están presentes en la membrana de los linfocitos B, y su función consiste en reconocer a los antígenos que les son presentados, mientras que las inmunoglobulinas E son liberadas al plasma pero luego se integran en la membrana de otras células, los mastocitos, participando en reacciones de hipersensibilidad.


Las inmunoglobulinas A están formadas por la unión de dos o tres unidades de inmunoglobulina, y se encuentran en las secreciones corporales (saliva, sangre, secreción intestinal, leche materna...) gracias a unas proteínas accesorias presentes en ellas. Las inmunoglobulinas M, por su parte, son la unión de cinco piezas de inmunoglobulina, unidas entre sí mediante otras proteínas accesorias. Se encuentran en el plasma y en el líquido intersticial, como las inmunoglobulinas G.

Reacciones antígeno-anticuerpo

Los anticuerpos se unen a los antígenos del mismo modo que las enzimas a sus sustratos, mediante enlaces débiles (puentes de hidrógeno, fuerzas de Van der Waals, enlaces hidrofóbicos) que se establecen entre ambas moléculas. La reacción entre antígeno y anticuerpo tiene diferentes consecuencias dependiendo de la forma en la que se encuentre el antígeno. Si éste es soluble, como en el caso de una toxina, la unión con en anticuerpo provoca su precipitación y su retirada del medio líquido en el que se encuentre.

Si los antígenos están unidos a un virus, una bacteria o una célula, su unión con los antígenos producen efectos diferentes. La aglutinación consiste en que los anticuerpos unen entre sí varias bacterias o células, formando una masa que impide que se muevan. Es, por ejemplo, lo que ocurre con los glóbulos rojos cuando se hace una transfusión de sangre entre grupos no compatibles. Otra posibilidad es la neutralización, proceso en el cual los anticuerpos enmascaran los antígenos del agente extraño impidiendo su actividad.

Los anticuerpos también pueden cooperar con otros elementos del sistema inmunitario como resultado de su reacción con los antígenos. Por ejemplo, la unión entre antígenos y anticuerpos puede activar el sistema de complemento, lo que conduce a la lisis de la bacteria o la célula que está unida a los anticuerpos. También produce la opsonización de los antígenos, es decir, su marcaje, que permite que sean reconocidos por fagocitos lo que hace posible su eliminación. Finalmente, las células unidas a anticuerpos también pueden ser atacadas por leucocitos que liberan contra ellas enzimas líticas, provocando su destrucción (citotoxicidad mediada por anticuerpos).

Respuesta inmune integrada

En el organismo, todos los elementos del sistema inmunitario, tanto los celulares como los humorales, trabajan conjuntamente para eliminar al patógeno del organismo por todos los medios posibles, de forma que la respuesta inmunitaria es una combinación de todos ellos. El siguiente esquema representa, de un modo simplificado, esa coordinación.


Respuesta inmune secundaria

Una vez que el sistema inmunitario ha entrado en contacto con un antígeno, algunas de las células que pueden interaccionar con él y eliminarlo se transforman en células de memoria, permaneciendo en el torrente circulatorio, ellas o sus descendientes, durante un periodo largo de tiempo, incluso el resto de la vida del organismo. Las células de memoria permiten que el organismo responda de modo distinto ante una reinfección, en lo que se conoce como respuesta inmune secundaria.
La respuesta secundaria es más rápida (en la respuesta primaria pasa un cierto tiempo hasta que el organismo empieza a producir anticuerpos), más intensa, porque se liberan las inmunoglobulinas en mucha mayor cantidad, y más duradera que la respuesta primaria. Hay, además, una cierta diferencia en el tipo de anticuerpos más abundantes, que en la respuesta secundaria son las inmunoglobulinas G mientras que en la primaria son las M.

viernes, 20 de febrero de 2015

Neodarwinismo, o la relación entre evolución y genética

Darwin consiguió explicar el mecanismo a través del cual se produce la evolución biológica, la selección natural, pero no consiguió detallar ni la base sobre la que actúa la selección (la causa de la variabilidad genética de los organismos) ni el fundamento biológico de su teoría, es decir, qué determina que unas características de los individuos se transmitan de generación en generación, y por tanto tengan influencia evolutiva, mientras que otras no lo hacen.

Estos "pequeños detalles" sin explicar hicieron que, a medida que se fue desarrollando la Genética, con el redescubrimiento de las leyes de Mendel y el desarrollo de la teoría cromosómica de la herencia, la teoría evolutiva fuera resultando cada vez más "incómoda", en el sentido de que, aunque permitiera explicar una gran cantidad de fenómenos biológicos, no encajaba bien con las nuevas explicaciones derivadas de otras teorías emergentes e igualmente explicativas.

Además, los dos detalles se explicaban bastante bien con ayuda de la teoría cromosómica de la herencia. La variabilidad genética se produce por medio de las mutaciones, que alteran la información genética almacenada en el ADN, y se extienden por la población mediante la reproducción sexual y las migraciones. Asimismo, la reordenación cromosómica y la recombinación que tienen lugar durante la meiosis contribuyen a generar nuevos fenotipos, gracias a que permiten mezclar entre sí en un número potencialmente infinito de formas las diferentes variantes producidas por mutación.

Sin embargo, estas variaciones son de naturaleza "cuántica": si una mutación da lugar a una proteína diferente a la original, los individuos de la población llevarán la primera forma de la proteína o la segunda, pero no una forma intermedia entre ellas, mientras que la teoría evolutiva de Darwin defendía el carácter continuo del cambio...

Así pues, las leyes de Mendel y la teoría cromosómica de Morgan, que demostraban el caracter "cuantizado" de las características hereditarias parecían oponerse frontalmente a la idea del cambio gradual sostenida por Darwin. El primer avance hacia la unión de las dos visiones del mundo biológico se produjo cuando Fisher consiguió establecer un modelo matemático que demostraba que la variación continua en las características de los individuos podía ser el resultado de cambios "discretos" (es decir, no continuos) en muchos genes diferentes.

El avance definitivo hacia la nueva teoría se produjo cuando se pudo relacionar la teoría evolutiva con la genética de poblaciones. La teoría de la selección natural habla de la persistencia de unos individuos frente a otros, como consecuencia de sus diferentes características, en el seno de una población. Para poder pasar de un principio a otro es necesario saber algo de la población en la que se encuentran los individuos que van a sufrir la selección natural y cuyas características genéticas van a ser transmitidas o eliminadas.

El problema de la especiación

La teoría darwiniana no plantea demasiados problemas para explicar la evolución filética (o microevolución): los cambios sufridos por una población a lo largo del tiempo, como resultado de una presión selectiva permanente. Simplemente, la acumulación de pequeñas variaciones provocadas por mutaciones da lugar a un conjunto de cambios graduales, de acuerdo con el modelo propuesto por Fisher. Los individuos de cada nueva generación podían ser ligeramente distintos a sus progenitores, con modificaciones casi imperceptibles, pero al cabo de un periodo de tiempo suficientemente largo se habrán acumulado tantas diferencias que los individuos finales y sus remotos antepasados pueden llegar a ser casi totalmente diferentes.

Sin embargo, la especiación o macroevolución, es decir, la aparición de especies distintas a partir de una sola población, resulta mucho más difícil de explicar mediante cambios graduales. Por una parte, estos cambios deberían poder observarse en el registro fósil como una serie de formas intermedias entre una especie y la otra. En realidad esto no ocurre nunca o casi nunca, en parte debido al hecho de que la fosilización es un fenómeno muy poco frecuente, y la conservación y hallazgo de los fósiles aún más. Esta falta de los "eslabones perdidos" ha sido utilizada frecuentemente como argumento en contra de la evolución bioológica.

Pero hay otro motivo que hace difícil de explicar la especiación mediante cambios graduales: si dos individuos se diferencian ligeramente, deberían poder cruzarse entre sí y tener descendencia fértil, de modo que la población estaría formada por híbridos entre ellos. De ese modo resulta complicado poder explicar cómo se acumulan suficientes diferencias como para separar las nuevas especies.

Una explicación sencilla al proceso de especiación es suponer que una población queda separada en dos partes debido a la existencia de una barrera geográfica que impide el contacto entre los dos grupos, por ejemplo un río, un brazo de mar o una cordillera montañosa. Con el paso del tiempo las dos poblaciones van sufriendo mutaciones y procesos de selección natural que pueden ser diferentes, puesto que ocupan ambientes distintos. Si el proceso continúa durante el tiempo suficiente las diferencias serán tan grandes que los dos grupos se habrán convertido en especies distintas, sin posibilidad de cruzarse entre ellas. Este modelo de especiación se denomina modelo alopátrido (de alo = otro, distinto) porque supone que la diversificación tiene lugar en espacios geográficos diferentes, y parece ser el más proceso más frecuente a lo largo de la historia evolutiva.

Se han propuesto también modelos de especiación simpátrida, es decir, que tienen lugar en un mismo ecosistema, aunque las condiciones necesarias para que se de son bastante específicas y difíciles de cumplir.

Algunas heterodoxias evolutivas

Cuando una teoría se impone dentro de una comunidad científica, es bastante habitual que sus defensores "cierren filas" en torno a ella, rechazando con fuerza las matizaciones que van descubriéndose con el paso del tiempo. Finalmente, algunas de esas matizaciones acaban por incorporarse a la teoría, enriqueciéndola, no sin que antes se haya producido un intenso debate que muchas veces ayuda al progreso y al perfeccionamiento de la teoría original.

El caso de la evolución es bastante parecido al de otros sistemas teóricos, tanto en el área de la Física como en el de la Geología, por ejemplo. Los principales debates, que aún siguen manteniéndose, tienen que ver con los mecanismos con los que opera la evolución y con su ritmo.

Los mecanismos de la evolución: ¿solo selección natural?

Cuando escribió el "Origen de las Especies" el propio Darwin se encargó de señalar su convencimiento de que la selección natural era el principal mecanismo de la evolución, pero no el único. Sin embargo, cuando se desarrolló la teoría evolutiva moderna, el Neodarwinismo, sus defensores afirmaron tajantemente que toda la evolución se produce siempre mediante selección natural, por lo que desde entonces los biólogos evolucionistas se han dedicado a buscar las presiones evolutivas que expliquen cada una de las características de los diferentes organismos.

Sin embargo, hay muchos evolucionistas que defienden la posibilidad de que, en algunos casos, la evolución no se deba exclusivamente a la selección natural, sino a la "deriva genética", es decir, a procesos aleatorios.

Se han descrito varios mecanismos que pueden ejemplificar la evolución de una población mediante deriva genética. Uno de ellos es el efecto de "cuello de botella": si una población sufre una reducción drástica en su número de individuos como consecuencia de una catástrofe accidental (una inundación, un terremoto, una erupción volcánica...) en la que no ocurre selección natural, es decir, todos los individuos tienen probabilidades parecidas de morir. La población más pequeña es una muestra aleatoria de la original, y los tipos de individuos que la forman no tienen por qué representar las proporciones que existían inicialmente, por lo que la nueva población tendrá características diferentes, que no se pueden atribuir a la selección natural.

Otro caso que puede explicar la evolución sin selección es el "efecto fundador", que se produce cuando un grupo de individuos de una población coloniza un hábitat nuevo. En este caso los individuos que migran no tienen por qué representar la proporción de los individuos presentes en la población original (en realidad, es un caso muy parecido al efecto cuello de botella). De nuevo, el "muestreo" de una población grande puede alterar la proporción de individuos de la población resultante.

El ritmo del cambio

Una cuestión más que provoca la discusión entre los evolucionistas es el ritmo con el que se produce el cambio evolutivo, y más concretamente la discusión acerca de si se produce de un modo más o menos constante (gradualismo) o de si, en determinadas circunstancias, se produce una aceleración de la tasa de cambio (equilibrio puntuado).

Los defensores de esta hipótesis sostienen que los procesos evolutivos pueden ser lentos durante largos periodos de tiempo, especialmente si durante ellos las condiciones ambientales son muy estables. En estas fases la evolución sería básicamente gradual (microevolución), pero en ciertos momentos, posiblemente relacionados con cambios ambientales bruscos, podría producirse un aumento considerable de la tasa de cambio, que daría lugar a la rápida aparición de nuevas especies.

Existen mecanismos genéticos que pueden explicar los cambios evolutivos bruscos, como las mutaciones cromosómicas (pérdida o duplicación de fragmentos de cromosoma, fusión de cromosomas) o genómicas (poliploidía, es decir, multiplicación del número de cromosomas porque no se separan durante la división celular). Todos esos procesos tienen en común que impiden de forma inmediata el apareamiento entre individuos "silvestres" y mutantes, con lo que crean una barrera reproductiva entre ellos. La poliploidía, en especial, facilita además la mutación de los genes y por lo tanto la acumulación de variedades, ya que como los individuos tienen duplicados todos los genes, una de las copias puede mutar sin provocar efectos deletéreos en el organismo, que conserva el otro gen intacto.

Genética del individuo y de la población

Desde el punto de vista de la genética describimos a los individuos por medio de su "composición alélica". Un individuo puede ser homocigoto (dominante o recesivo) o heterocigoto. Para describir en términos genéticos una población necesitamos saber el número (mejor aún, la frecuencia) de individuos de cada tipo que la forman.

Igual que ocurre en la genética individual, en la genética de poblaciones es importante conocer no solo los fenotipos, sino también los genotipos de los individuos, porque de ellos dependen las características que se transmitirán a la siguiente generación. Igual que ocurre en la segunda ley de Mendel, los alelos recesivos pueden estar "ocultos" en los heterocigotos, pero van a ser transmitidos y "aflorarán" en la siguiente generación. Esto tiene importancia desde el punto de vista evolutivo: un individuo recesivo puede tener una probabilidad de supervivencia diferente a la de sus hermanos dominantes.

Así que al analizar genéticamente una población no solo nos interesa conocer la frecuencia de los fenotipos, sino también la de los alelos. Pero, otra vez igual que lo que sucede con los individuos, tenemos el problema de que no podemos distinguir los individuos homocigóticos dominantes de los heterocigóticos. Sin embargo, sí que podemos calcular su frecuencia utilizando un modelo teórico, la ley de Hardy Weimberg.

Podemos estudiar la genética de poblaciones de un modo simple analizando un gen con dos alelos (igual que en las leyes de Mendel) en una población en equilibrio (en la que no cambian las frecuencias génicas), aplicando el cuadrado de Punnett. En este caso, introducimos en él la probabilidad de que cada individuo posea el alelo dominante (A) o el recesivo (a), y obtenemos lo siguiente:

A (p) a (q)
A (p) AA (p2) Aa (pq)
a (q) Aa (pq) aa (q2)

Es decir, si suponemos que las frecuencias de los alelos son p para el alelo dominante (A) y q para el recesivo (a), la frecuencia en la población de cada genotipo será la siguiente:
  • Frecuencia del genotipo homocigoto dominante p2
  • Frecuencia del genotipo homocigoto recesivo q2
  • Frecuencia del genotipo heterocigoto 2pq
Como podemos identificar los individuos recesivos, es fácil calcular el valor de q, la frecuencia del alelo recesivo:


Se puede calcular fácilmente la frecuencia del alelo dominante porque, como el gen solo tiene dos alelos, la suma de sus frecuencias es la unidad:

p = 1 - q. 

 El siguiente paso: la selección natural

Ahora ya tenemos descrita la población desde el punto de vista genético. Sabemos cuántos individuos son homocigotos y cuántos son heterocigotos, de modo que podemos calcular el número de individuos de cada tipo que habrá en la siguiente generación.

La selección natural actúa contra los fenotipos, contra las características que se manifiestan en la población, provocando que los individuos que poseen una característica poco adaptativa tengan más posibilidades de morir que otros. Hablando en términos genéticos, lo que hace es que la frecuencia de un determinado fenotipo se reduzca frente a la de otro u otros. Esto tiene consecuencia en las frecuencias alélicas, que también cambian, de modo que la siguiente generación va a tener un número de individuos distinto para cada fenotipo. Si esa mortalidad diferente (selección) se mantiene a lo largo del tiempo (presión selectiva), al cabo de unas cuantas generaciones las frecuencias fenotípicas, y las alélicas, habrán variado considerablemente, siguiendo una cierta tendencia. La población final será, por tanto, distinta a la original. Hemos llegado a la evolución.

La ley de Hardy Weimberg nos da una imagen de una población "congelada", en la que el número de individuos de cada tipo es el mismo a lo largo del tiempo, pero podemos utilizarla para elaborar un modelo matemático sencillo de la selección a favor o en contra de uno de los alelos. Se trata, simplemente, de introducir la mortalidad diferencial de cada genotipo y recalcular las frecuencias alélicas a partir de los individuos que sobreviven en cada generación. Repitiendo (iterando) estos datos durante un cierto periodo de tiempo se puede simular el comportamiento de la población.

Puedes encontrar un ejemplo de este tipo de modelos en este enlace. Puedes utilizarlo cambiando la frecuencia de uno de los alelos (la del segundo alelo depende de ella) o la mortalidad de los fenotipos, y te permitirá observar cómo van cambiando a lo largo del tiempo las frecuencias alélicas y las fenotípicas en los diferentes casos que se analizan: herencia con dominancia simple, codominancia y herencia ligada al sexo.

lunes, 16 de febrero de 2015

La historia evolutiva del hombre

Investigar una historia evolutiva es algo así como tratar de resolver un puzzle, pero uno del que nos faltan la mayoría de las piezas y del que, además, tampoco conocemos la imagen final que representa. Lo único que podemos hacer para completar un rompecabezas como ese es intentar situar las piezas donde creemos que deberían ir, fijándos en que se parezcan entre sí y en que nos permitan entrever una imagen coherente, e ir encajando, por grupos, las piezas que ya tenemos. Pero cada vez que se encuentra una pieza nueva puede que sea necesario reorganizar varios bloques de nuestro puzzle.

Eso es lo que está ocurriendo con nuestro conocimiento de la evolución humana. Posiblemente sea la parte de la historia evolutiva de los seres vivos de la que conocemos más piezas, pero nos faltan aún tantas por conocer que cada nuevo descubrimiento puede hacernos cambiar nuestras ideas, al menos sobre una parte de ella.

Entender bien un proceso evolutivo supone dar respuesta a un buen número de preguntas que se nos pueden ocurrir a todos. Por ejemplo, podemos preguntarnos, cómo eran nuestros antepasados, cuándo nos diferenciamos de ellos, cuáles son los cambios que nos hacen como somos o a qué se debieron esos cambios. Para responder esas y otras preguntas nos dedicamos a buscar las piezas que faltan en el rompecabezas que no son otra cosa que los restos fósiles de nuestros antepasados. Afortunadamente, esas piezas guardan un cierto orden, su antigüedad (aunque no siempre es fácil datar un fósil). Desafortunadamente, cada pieza es muy pequeña, y contribuye mínimamente a formar la imagen total. Además, tenemos la certeza de que nunca podremos encontrar todas las piezas del puzzle, por eso recurrimos a fijarnos en otros puzzles (como las reconstrucciones de los climas de la antigüedad) o en las fotos de nuestros parientes cercanos (es decir, en los estudios de primates modernos). Así, poco a poco, vamos haciéndonos una idea aproximada de "cómo hemos cambiado".

La foto de familia

Como cualquier otra especie biológica, el hombre está "emparentado" evolutivamente con los otros tipos de organismos, más próximamente con unos que con otros, claro está.

Desde siempre ha resultado patente que nuestros parientes más próximos son los primates, a los que nos parecemos realmente mucho. Y ha sido tan evidente que en la Grecia clásica se estudiaba la anatomía y la fisiología de algunos monos comoo modelo para la medicina.

Sin embargo, pariente no significa necesariamente antepasado. Todos tenemos primos, tíos, hermanos, sobrinos... de los que no "descendemos", por lo que debería ser fácil comprender el error en la famosa frase que dice que "el hombre desciende del mono". Más bien, el estudio de los primates actuales nos recuerda a una foto de familia, pero de individuos de una misma generación: hermanos, primos, primos segundos... Cuanto mayor sea nuestro grado de parentesco, cuantos más antepasados tengamos en común, más nos pareceremos.

El análisis de ADN permite a los biólogos moleculares "darle la vuelta" a este razonamiento. Al comparar las secuencias de ADN podemos medir cuánto nos parecemos, y esta medida nos permite estimar, es decir, calcular de forma aproximada nuestro grado de parentesco y, como consecuencia, la distancia que nos separa de nuestro último antepasado común.

En este momento disponemos de información suficiente para comparar nuestro ADN con el de todos los primates actuales, pero también con alguno de nuestros parientes homínidos extinguidos (el equivalente evolutivo de nuestros hermanos mayores o nuestros tíos), como son el hombre de Neandertal o el de Denisova. Los resultados de esos estudios indican que compartimos el 99% de nuestro ADN con chimpancés y bonobos (chimpancé enano), y el 98% con el gorila. Estos datos, a parte de ayudar a establecer nuestro árbol filogenético, muestra claramente la poca distancia que nos separa, en términos de historia evolutiva, de nuestros parientes.
¿En qué nos parecemos?

Todos los primates tenemos algunas características comunes, un cierto parecido de familia que nos permite reconocernos como parientes. Algunas de esas características han sido elementos importantes durante nuestra historia evolutiva, y han hecho que seamos nosotros mismos.

Todos los primates descendemos de animales que eran frugívoros y arborícolas, lo que explica alguna de esas características. Las adaptaciones al frugivorismo incluyen un aparato digestivo proporcionalmente más corto que el de otros herbívoros, gracias a que las frutas son ricas en azúcares simples, fáciles de digerir, lo que hace innecesarios intestinos largos y digestiones lentas y pesadas como las de los rumiantes.

Otra adaptación casi imprescindible para los frugívoros es la visión del color. Muchas frutas son tóxicas cuando no han madurado, lo que impide que las semillas sean separadas de la planta antes de madurar. Ver en color permite consumir solo los frutos maduros, evitando posibles envenenamientos.

Las adaptaciones a la vida arborícola han sido, incluso, más importantes para nuestra evolución. Los animales que viven en árboles tienen ventajas evolutivas si son ágiles y de pequeño tamaño (lo que evita que rompan las ramas finas), pero también si tienen los ojos en la parte delantera de la cabeza (frontalizados), lo que les permite gozar de visión estereoscópica (es decir, en tres dimensiones) y estimar bien las distancias al saltar de rama en rama. Por último, y más importante, los animales de vida arbórea se benefician de disponer de extremidades prensiles, capaces de agarrarse a las ramas, lo que supone poder oponer el pulgar al resto de los dedos. Todos esos rasgos están presentes en nosotros y algunos de ellos han sido determinantes en nuestro proceso evolutivo.

El primer ecosistema de la humanidad

Nuestros primeros antepasados aparecieron en la región del Este de África, en una zona relatvamente amplia que abarca partes de los territoris actuales de Kenia, Tanzania, Etiopía... Se trata, más o menos, de la zona que conocemos como "Valle del Rift", y que tiene una importancia fundamental en el estudio de la Tectónica de placas porque en ella se está produciendo la separación entre la placa africana y la del Índico. Esta coincidencia no es casual, y los acontecimientos geológicos que se han producido en esa región en épocas recientes (desde el punto de vista geológico) han influido en gran medida en el proceso evolutivo de los organismos que la ocupan, entre ellos en el hombre y sus antepasados.

Los acontecimientos tectónicos ocurridos en esta región de África dieron lugar al levantamiento de una zona montañosa, a veces denominada "el muro de África". La comparación entre los dos mapas permite apreciar una estrecha correlación entre esta topografía alterada y la localización de los yacimientos de homínidos fósiles.

Esto puede tener una explicación "técnica": la alteración del terreno deja al descubierto zonas en las que se pudieron depositar los fósiles, facilitando su descubrimiento. Sin embargo, tiene también una explicación ecológica y de selección natural. La aparición de esta zona elevada dio lugar, por una parte, a un cambio climático en el este de África, al impedir la llegada de los vientos húmedos del oeste, lo que se tradujo en una mayor aridez de esta región. Por otra parte, las deformaciones tectónicas originaron un mosaico de ecosistemas con alternancia de zonas húmedas y secas, llanas y accidentadas, elevadas y de escasa altitud, que pudieron beneficiar la evolución de los primeros homininos (el grupo de antepasados del hombre que ya se había separado de los chimpancés y bonobos).

Para aceptar esta hipótesis deberíamos ser capaces de identificar el modo en el que un ecosistema mosaico de este tipo pudo beneficiar la evolución del hombre, y eso supone correlacionar las características ecológicas humanas con las características ambientales de nuestro ecosistema.

Hay un acuerdo bastante general en señalar que las principales características adaptativas de los homininos incluyen el bipedismo (y, en relación con él, un incremento de la capacidad para recorrer grandes distancias y ocupar un mayor territorio vital que otros primates), una diversificación de la dieta, incluyendo en ella una elevada proporción de carne, el incremento del tamaño corporal respecto al chimpancé, y dentro de este aumento de tamaño un incremento desproporcionado del tamaño cerebral, la capacidad para adaptarnos al estrés térmico, la capacidad para manufacturar herramientas líticas y un mayor periodo de crianza y, consecuentemente, de aprendizaje.

Algunas de estas características se retroalimentan entre sí, dando lugar a un "síndrome de adaptación", es decir, a un conjunto de características biológicas que globalmente contribuyen a la adaptación de una especie a un cierto nicho ecológico. Así, por ejemplo, la adaptación al estrés térmico, la capacidad para recorrer mayores distancias y la posibilidad de cazar durante el día se refuerzan mutuamente, haciendo más eficaz a la especie que posee esas características. Lo mismo puede decirse de la relación entre el aumento de la capacidad craneal, la habilidad para elaborar herramientas líticas y el consumo de carne, de la asociación positiva entre el aumento del tamaño cerebral, el incremento de las capacidades comunicativas y la resolución de problemas o entre el aumento de capacidades cognitivas, la memoria espacial y el aprovechamiento de nichos ecológicos mayores y más complejos.


Por otra parte, otras tendencias evolutivas acaban dando lugar a nuevas presiones selectivas que la especie debe superar. En el caso de nuestros antepasados, la prolongación de la etapa de dependencia infantil provocó que las hembras tuvieran que depender de los machos durante largos periodos de tiempo en lo que se refiere a la provisión de comida y a la búsqueda de un cobijo seguro a salvo de los depredadores.

Una especie con esas características requeriría para tener éxito evolutivo un suministro regular de agua, la posibilidad de acceder a suficiente proteína de origen animal y a piedra para elaborar sus herramientas y un incremento de la cooperación parental. Se verían beneficiados, por tanto, de la existencia de nichos ecológicos abiertos, en los que las condiciones ambientales dificultaran a otros carnívoros o carroñeros el acceso a la carne, por ejemplo en condiciones de sequía o durante el calor del día. La protección de las crías dependería, en un ambiente con pocos árboles como ese, de la disponibilidad de refugios en riscos o cuevas, de la defensa social o del uso del fuego. Un ecosistema adecuado para dicha especie tendría:
  • Un entorno variado, con un amplio rango de plantas y animales diferentes, lo que ofrecería nuevas oportunidades para conseguir todo tipo de alimentos.
  • Fuentes de agua abundantes y accesibles.
  • Ubicaciones para encontrar refugios seguros para escapar del ataque de depredadores y donde llevar y mantener a salvo la comida.
  • Posibilidad de atrapar animales mediante trampas, aprovechando las irregularidades del terreno.
Todas las características descritas se dan en la actualidad en la zona del Valle del Rift como resultado de los procesos tectónicos que se producen en ella, lo que lleva a pensar que este pudo ser un entorno propicio para la aparición de los primeros homininos.
 Como se puede apreciar, el ambiente en el que aparece una nueva especie es mucho más que un "marco" o que un paisaje. Sus características determinan las presiones ambientales a las que dicha especie está sometida, y por lo tanto condicionan las características de la propia especie.

De "la cadena y los eslabones" hasta "el matorral y las ramas"

La representación de la evolución de una especie determinada como una cadena, en la que un eslabón (una especie) va unido linealmente con el anterior y con el siguiente es una mala metáfora del cambio evolutivo, que muchas veces da lugar a interpretaciones simplistas como la búsqueda desesperada del "eslabón perdido". En su lugar, es mucho más aproximado pensar en el proceso evolutivo como si fuera un matorral, del que van creciendo muchas ramas. Algunas de ellas son cortas, pero otras pueden ser más largas que las demás, es decir, representan especies que perduran durante más tiempo. Además, cada rama puede, a su vez, ramificarse, dando lugar a una estructura compleja, difícil de interpretar.

Esto es así en el caso de la evolución humana. Aunque en la actualidad el grupo de los "homininos" solo cuenta con una especie (nosotros mismos), esta es una situación excepcional, única en nuestra historia evolutiva. Durante casi todo el tiempo que ha durado ésta, ha habido varias especies coexistiendo, en ocasiones en una misma área geográfica. Algunas de esas especies son nuestros antepasados directos, mientras que otras se extinguieron sin dejar descendientes actuales. Además, para complicar más las cosas, como el proceso de especiación no es inmediato, es posible que existieran "híbridos" entre tales grupos contemporáneos, lo que dificulta aún más la interpretación de nuestro árbol evolutivo.

A pesar de eso, y de que los restos de los que disponemos son muy escasos y fragmentarios (incluso en el sentido literal de la palabra; en muchos casos no contamos más que con unos pequeños trozos de hueso de un único individuo), nos vamos pudiendo hacer una idea más o menos clara de cual ha sido la historia de nuestra familia.

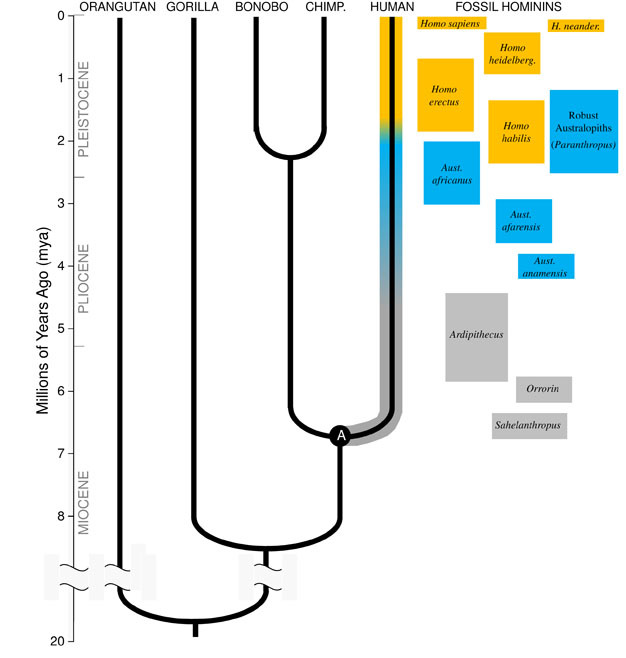
El último antepasado común del hombre y los chimpancés debió vivir hace unos siete millones de años. Sabemos eso gracias al análisis de los datos de ADN, ya que no ha podido identificarse ningún fósil que responda a las características que se supone que debería tener una especie como esa. A partir de ese momento nuestra línea evolutiva se separa de las de otros primates, surgiendo el grupo biológico que denominamos homininos, del que somos su único representante actual.

Los primeros organismos de este grupo se han atribuido a dos especies diferentes: Sahelanthopus y Orrorin. Ambos eran animales de tamaño y aspecto bastante similares a los del chimpancé, con una capacidad craneal y un grosor óseo parecidos a los del gorila, que vivieron en Chad y Kenya respectivamente hace algo más de seis millones de años. La posición del foramen magnum, el orificio a través del cual sale del cráneo la médula espinal, hace pensar en que podían mantener una postura bípeda.

Son mucho mejor conocidos los restos de Ardipithecus. Solo se han encontrado huesos correspondientes a dos individuos, pero incluyen fragmentos de brazos, piernas y pelvis. El más antiguo de esos individuos vivió hace casi seis millones de años en Kenya, mientras que los restos del segundo, de unos 4,5 millones de años de antigüedad, se han encontrado en Etiopía. A pesar de que se dispone de muy pocos fragmentos de cada uno de ellos, estos fósiles han sido catalogados como dos especies diferentes. La estructura de la pelvis indica que eran bípedos, pero la longitud de las extremidades y el pulgar del pie prensil hacen pensar que pasaban mucho tiempo en los árboles.

Hace unos 4 millones de años se produjo un nuevo cambio ambiental en el este de África, que tuvo como resultado un aumento de la aridez de la región. La consecuencia para nuestros antepasados fue la extinción de los Ardipithecus y su desplazamiento por nuevo género, los Australopithecus, que, con bastantes variaciones, habitaron una buena parte de África oriental (desde Etiopía en el norte hasta Sudáfrica).

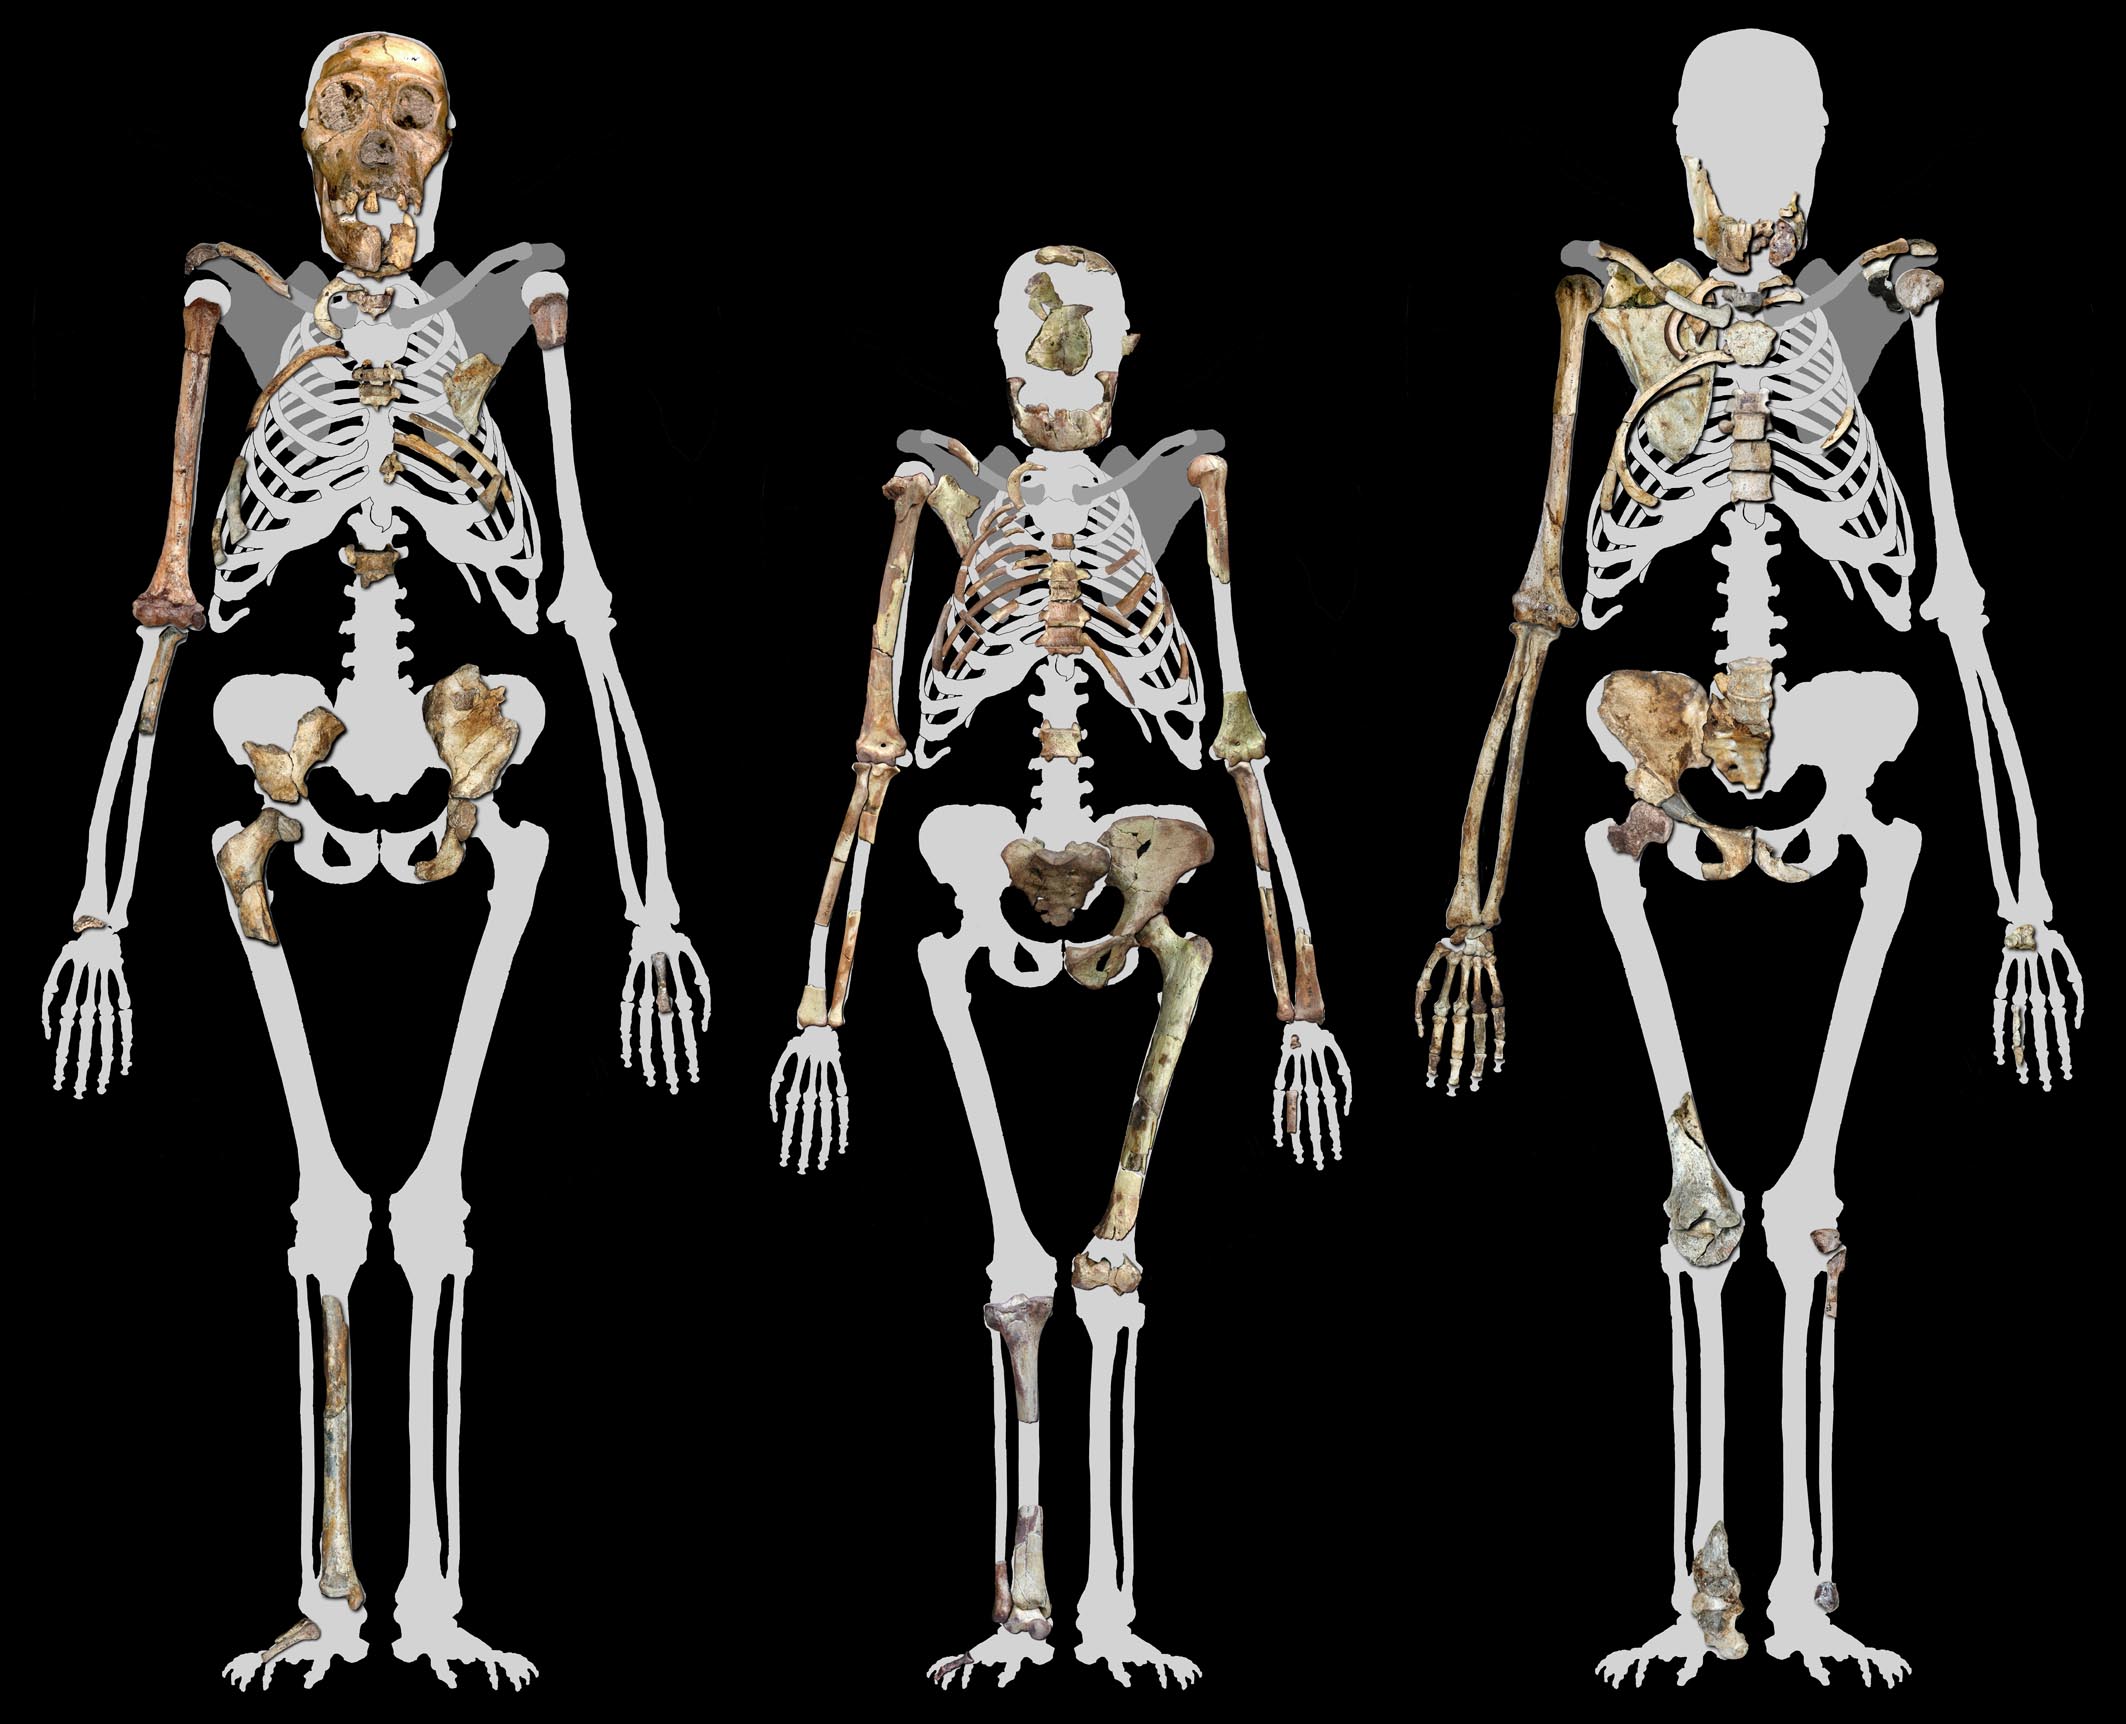
Los australopitecos sobrevivieron durante casi tres millones de años. Eran animales bípedos, como demuestran tanto sus restos óseos como el rastro de huellas fósiles encontrado en Laetoli, en el que tres individuos dejaron sus pisadas en una pista de ceniza volcánica de unos 20 metros de longitud. Sin embargo, parece ser que trepaban habitualmente a los árboles, posiblemente para conseguir alimentos o protección. Su capacidad craneal era pequeña, bastante parecida a la de los gorilas y chimpancés actuales (entre 400 y 500 centímetros cúbicos). Los machos y las hembras eran diferentes: los primeros podían alcanzar una talla aproximada de 1,20 metros y unos 50 Kg de peso, mientras que las hembras llegaban a los 80 cm de altura y podían pesar unos 30 Kg.

Se ha determinado que los australopitecos podían llegar a vivir unos 25 años, aunque la mayoría de ellos probablemente morían mucho antes, en torno a los 10 años de edad. Parece ser que las hembras alcanzaban la madurez sexual en torno a los 5-7 años, mientras que los machos maduraban más tarde, entre los 8 y los 10 años. Los individuos que alcanzaban los 20 años de edad entraban en una fase de envejecimiento (apreciable, por ejemplo, en la pérdida de dientes) que probablemente los convertía en presas fáciles de otros depredadores.

La especie más reciente de australopitecinos fue Australopithecus afarensis, a la que corresponde el esqueleto mejor conservado, el de una hembra a la que se dio el nombre de "Lucy" que vivió hace 3,2 millones de años y de la que se conservan unos 100 huesos.

Probablemente la irregularidad climática del este de África durante esta época, caracterizada por alternancia de periodos húmedos y secos, provocó la desaparición de los australopitecus que, sin embargo, dieron paso a dos grupos diferentes de homínidos. Por una parte surgieron los parántropos (género Paranthropus), animales más grandes y fuertes que los australopitecos, adaptados a zonas semiáridas de campo abierto fundamentalmente vegetarianos y capaces de consumir alimentos duros. Los parántropos vivieron en el este y en el sur de África desde hace unos 2,5 millones de años, hasta hace aproximadamente un millón de años, época en la que se extinguieron sin dar lugar a otras especies.

El otro grupo de organismos que evolucionó en esta época a partir de los australopitecos constituyen los primeros miembros conocidos del género Homo. Hay bastante discusión acerca de si estos individuos se pueden incluir en una o varias especies, o de su relación entre ellos, aunque suele aceptarse que Homo habilis, que vivió en la garganta de Olduvai (Tanzania) hace unos 2,3 millones de años pudo ser una de las primeras especies en utilizar herramientas líticas.

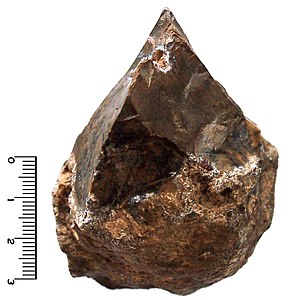
Homo habilis tenía alrededor de un metro de estatura, con 50 Kg de peso para los machos y unos 30 Kg para las hembras. Su volumen craneal era de unos 600 centímetros cúbicos, algo más grande que el de los australopitecos y los parántropos. Su dieta era rica en carne, probablemente obtenida mediante carroñeo, para lo cual utilizaba las herramientas de piedra que era capaz de constuir, como los "choppers", piedras afiladas talladas por un solo lado, probablemente mediante un único golpe (tecnología olduvayense, "modo I").

Hace algo más de 1,8 millones de años se inició una tendencia evolutiva, el aumento del tamaño corporal y especialmente del cerebro, que dio lugar a la aparición de una nueva especie, Homo erectus. Su capacidad craneal alcanzó rápidamente los 800 centímetros cúbicos, llegando hasta los 1100. Es posible que esta evolución se debiera a una mutación en la estructura de las membranas celulares de las neuronas, que proporcionó mayor resistencia a las enfermedades infecciosas.

El aumento del tamaño cerebral guarda relación con un cambio en la dieta, más rica en carne y más estable, y con cambios en el comportamiento, con la adopción de un modo de vida que incluye el cuidado cooperativo de las crías. Esto reduce el riesgo de muerte por predación. Las ventajas adaptativas de estas características permitieron un aumento de la población y una ampliación de los nichos ecológicos.
Homo erectus fue una especie con un éxito ecológico enorme, hasta el punto de que se expandió geográficamente por todo el "viejo mundo": África, Europa y Asia. En todas esas zonas se han encontrado restos de más de 1,5 millones de años de antigüedad, lo que muestra la rapidez con la que fueron capaces de ocupar y colonizar hábitats diferentes.

La historia evolutiva de Homo erectus es diferente dentro y fuera de África. En Europa evolucionaron para dar lugar a  Homo antecessor, que aparece, por ejemplo, en los yacimientos de Atapuerca (Burgos) y posteriormente a Homo neanderthalensis, que sobrevivió en el sur de la Península Ibérica hasta hace unos 40.000 años.

Entre tanto, en África Homo erectus evoluciona hasta convertirse en el hombre moderno, Homo sapiens. Hace unos 200.000 años esta nueva especie vuelve a salir de su ecosistema natal y se expande por todo el mundo, cruzando incluso el estrecho de Bering para llegar a América (hace algo menos de 20.000 años). La llegada del hombre moderno a Europa, ocupada por los neandertales, supone que durante más de 100.000 años ambas especies convivieron, incluso compartiendo el mismo espacio. Los datos de genética molecular de los que disponemos actualmente indican que, además, se cruzaron, de modo que algunos de los genes de los neandertales han llegado hasta nosotros (algunos investigadores calculan que pueden ser hasta el 20% de todos nuestros genes).

Sin embargo, los neandertales (más altos, más fuertes, incluso con mayor capacidad craneal que nosotros) terminaron por extinguirse. Se supone que la causa de su desaparición fue su falta de "flexibilidad ecológica": habían evolucionado en un clima frío, pero debieron enfrentarse a condiciones ambientales muy variables, con periodos fríos y cálidos alternos, que beneficiaron a Homo sapiens, adaptado para utilizar una gran variedad de recursos.