Mostrando entradas con la etiqueta Genética. Mostrar todas las entradas

viernes, 12 de diciembre de 2014

Mendel y la herencia genética

La descripción del modo en el que se transmiten los caracteres hereditarios en los seres vivos está íntimamente relacionada con los trabajos científicos de un monje centroeuropeo, llamado Georg Mendel, un personaje ciertamente curioso dentro de la historia de la ciencia. Sus estudios no fueron los primeros sobre el tema: el el siglo XVII Leeuwenhoek (el inventor del microscopio) y Koelreuter habían tratado de explicar el modo en que los caracteres hereditarios se transmiten en animales y plantas sin conseguirlo. Sus resultados no fueron valorados en su tiempo, pasando totalmente desapercibidos después de ser publicados en una oscura revista científica escrita en alemán, hasta el punto de que se rumorea que Darwin, que los habría conocido mediante una carta escrita por el propio autor, no supo entenderlos ni incorporarlos a su teoría evolutiva. Hubo que esperar más de una década después de su muerte hasta que fueran redescubiertos y puestos en valor independientemente por tres investigadores, Tschermak, Correns y DeVries. Sus procedimientos también se han puesto en duda, porque se sospecha que "eliminó" selectivamente los resultados que no se ajustaban a su hipótesis, y, finalmente, no fue capaz de proponer un soporte biológico para sus descubrimientos. A pesar de todo ello, Mendel ocupa el lugar que le corresponde en la historia de la Biología, como descubridor del mecanismo que permite explicar la transmisión de los caracteres genéticos de una generación a otra, y los tres únicos enunciados biológicos que reciben la consideración de "leyes" llevan su nombre.

A lo largo del siglo XX, las leyes de Mendel se complementaron con la teoría cromosómica de la herencia: la información genética está almacenada en el ADN en forma de "unidades discretas", trozos de información, que llamamos genes. Esos genes equivalen a los "factores" que describió Mendel, y se encuentran alineados, uno tras otro formando los cromosomas. La existencia de cromosomas homólogos, con información para las mismas características, permitió explicar la intuición de Mendel al suponer que esos "factores" van por parejas en cada individuo. Asimismo, el descubrimiento de la relación entre el mensaje genético escrito en los genes y la elaboración de proteínas específicas por parte de la célula hizo posible explicar cómo se plasman las características genéticas de los organismos. Hoy en día es imposible separar las leyes de Mendel de los sucesos que tienen lugar durante la meiosis, por lo que parece lógico tratar de explicar ambos procesos conjuntamente.

Antes de empezar...

La observación de que los hijos se parecen a sus padres se remonta a los principios de la historia de la humanidad, y el uso de esa propiedad también. Al menos desde el Neolítico, el hombre se ha dedicado a cruzar entre sí animales o plantas con características interesantes, para quedarse luego con aquellos descendientes que mostraran las mejores combinaciones. Aun sin una base científica que lo justifique, eso supone la noción de que las características individuales se transmiten de padres a hijos (herencia) y de que esa transmisión ocurre por separado, es decir, que cada característica pasa de padres a hijos independientemente de las demás (al menos en algunos casos).

Esta práctica del cruce selectivo constituye también la primera actividad biotecnológica del hombre, que nos ha permitido contar en la actualidad con todos nuestros alimentos, tanto animales como vegetales, espectacularmente diferentes de sus parientes "naturales" más cercanos.

Mendel trató de analizar el modo en el que se produce esta transmisión, para lo cual utilizó un "organismo modelo", herramienta que sigue siendo muy útil en la Biología actual. Usar un organismo modelo se basa en suponer que las consecuencias que se obtengan de su estudio pueden ser aplicadas a otros organismos diferentes, porque comparte características fundamentales con ellos. En el caso de Mendel ese organismo fue el guisante, que cultivaba en el huerto de su monasterio de Brnö. Al observar esta planta, se fijó en varias de sus características, que iban pasando de generación en generación.

Mendel preparó sus experimentos cruzando entre sí plantas con semilla verde hasta conseguir que todos sus descendientes fueran verdes, y plantas con semillas amarillas hasta conseguir que todos sus descendientes tuvieran semillas amarillas. A esos grupos de individuos los denominó "razas puras"

La primera ley

La primera ley de Mendel se deduce del primer cruzamiento que realizó, entre plantas con semillas amarillas (de raza pura para ese carácter) y plantas con semilla verde (de raza pura para el carácter). Al hacerlo, obtuvo un conjunto de plantas cuyos guisantes eran todos iguales, de color amarillo. Este resultado constituye la "Primera ley de Mendel":

Al cruzar entre sí individuos de dos razas puras para un carácter todos los individuos que se obtienen son iguales entre sí, e iguales a uno de los individuos parentales (uniformidad de la primera generación filial).

El carácter que se puede observar en la generación filial recibió el nombre de dominante, mientras que el que no puede observarse se denominó recesivo.

La segunda ley

¿Qué había pasado con el caracter verde? Para averiguarlo, cruzó entre sí los guisantes obtenidos en el primer experimento. Al hacerlo se obtuvo un conjunto de plantas de dos tipos: la mayoría, tres cuartas partes, correspondían al carácter dominante, mientras que el resto, una cuarta parte, presentaban el carácter recesivo.

En la segunda generación filial, los caracteres se segregan (se separan), volviendo a observarse el carácter recesivo de uno de los abuelos.

Base biológica de las dos primeras leyes de Mendel

En la actualidad sabemos que el fundamento biológico de las dos primeras leyes de Mendel está en la composición genética de los individuos y en los procesos que tienen lugar durante la meiosis y la formación de los gametos.

Cada característica "mendeliana" como el color de la semilla o el aspecto de la vaina está determinada por un único gen, es decir, por un fragmento de ADN dentro de un cromosoma concreto. Este trozo de ADN ha podido sufrir cambios en su secuencia (mutaciones), lo que da lugar a la aparición de diferentes alelos, cada uno de los cuales contiene la información para una de las modalidades de ese gen. En el caso estudiado por Mendel para formular sus dos primeras leyes, hay un solo gen, el color del guisante, que puede tener dos alelos distintos, amarillo y verde.

Los organismos con reproducción sexual son diploides, es decir, presentan una pareja de cada tipo de cromosoma. Los dos cromosomas de cada pareja son homólogos entre sí, lo que significa que tienen información para las mismas características o, dicho de otra forma, los mismos genes. Sin embargo, esto no significa que tengan la misma información. Utilizando el ejemplo de Mendel, los dos cromosomas incluirían el gen para el color de la semilla, pero uno de ellos podría tener la información para que la semilla fuera verde, y el otro para que fuera amarilla. Es decir, los dos cromosomas de cada pareja de homólogos tienen los mismos genes, pero pueden tener alelos iguales o diferentes. Si los dos alelos que posee un individuo para un determinado gen son iguales se dice que el organismo es homocigótico para ese carácter, mientras que si son diferentes se dice que es heterocigótico.

La razón de que un alelo "domine" sobre otro está en la naturaleza del producto codificado por el gen. Por ejemplo, en el caso del color del guisante el alelo amarillo determina la producción de un pigmento que se acumula en los plastos, mientras que el alelo verde supone que la semilla no puede producir ese pigmento. Así pues, basta con que las células tengan un solo alelo amarillo para que puedan producir el pigmento y, por tanto, tengan el color amarillo. Estas relaciones de dominancia entre los alelos hacen que pueda haber una diferencia entre las características que posee el individuo en su material genético y las que finalmente manifiesta. Por esta razón se habla de genotipo para indicar el conjunto de alelos que posee un individuo y de fenotipo para señalar la característica, determinada por el genotipo, que realmente se manifiesta.

Con esos conocimientos citogenéticos se puede reformular el planteamiento de los trabajos de Mendel, para relacionarlos con el funcionamiento celular.
Obtención de razas puras para un carácter: para que un individuo transmita solo una característica a sus descendientes, su genotipo debe coincidir con su fenotipo. Es decir, solo debe poseer un tipo de alelos para esa característica. Dicho de otro modo, una "raza pura" es, simplemente, un conjunto de individuos homocigóticos para el carácter o caracteres que se están considerando.
Formación de gametos en el primer cruzamiento experimental: para que los individuos que participan en el cruzamiento puedan reproducirse deben formar gametos mediante una meiosis, de modo que cada uno de esos gametos solo lleva un alelo para el carácter "color de la semilla". En el caso de la primera ley de Mendel, como los individuos que participan en el cruzamiento son homocigóticos, todos los gametos que forma cada individuo son idénticos entre sí.
Cruzamiento: en el caso de la primera ley, no hay más que una posible combinación de gametos entre los dos tipos de individuos que participan en el cruzamiento, por lo que todos los individuos resultantes serán idénticos entre sí. Aunque en este caso resulta evidente, se pueden representar todos los emparejamientos posibles de gametos, es decir, todos los posibles casos de fecundación, mediante un gráfico denominado "cuadrado de Punnett", en el que se recogen los genotipos de los gametos y de los individuos resultantes de cada emparejamiento.

Por lo tanto, el resultado del primer experimento de Mendel fue que todos los individuos de la generación filial eran heterocigotos, es decir, poseían los dos alelos para el carácter "color de la semilla", tanto el que determina que se pueda formar el pigmento (A) como el que no da lugar a la pigmentación (a). Como la presencia de un alelo A es suficiente para que se forme el pigmento amarillo, todos los guisantes de esta generación poseen el pigmento y en consecuencia son de color amarillo.

Formación de gametos en la F1: en su segundo experimento Mendel cruzó entre sí individuos obtenidos en el primer experimento. En este caso todos los individuos eran heterocigotos, por lo que durante la meiosis dan lugar a gametos diferentes: la mitad de los gametos de cada individuo llevarán el alelo para la formación del pigmento (A) mientras que la otra mitad llevarán el que no da lugar al pigmento (a).

Segundo cruzamiento: del mismo modo, ahora existen nuevas posibilidades de emparejamiento entre los diferentes gametos, como se recoge en el nuevo cuadro de Punnett:


La tercera ley de Mendel
Una vez que había entendido el modo en que se transmitía una característica hereditaria, Mendel trató de comprobar cómo se transmiten dos características simultáneamente, para lo que utilizó el color de la semilla y su textura, que puede ser lisa o rugosa. Al estudiar las dos características encontró que el color amarillo dominaba sobre el verde, y que la textura lisa lo hacía sobre la rugosa. Después empezó su siguiente experimento seleccionando razas puras (homocigotos) para los dos caracteres, de forma que obtuvo guisantes amarillos y lisos y otros verdes y rugosos.


Al cruzar entre sí estos guisantes obtuvo una primera generación filial en la que todos los individuos eran iguales entre sí y mostraban el fenotipo totalmente dominante: color amarillo y textura lisa. De nuevo, cruzó entre sí los guisantes de esta primera generación filial, con lo que en la segunda aparecieron nuevas combinaciones de características: además de los guisantes amarillos lisos y verdes rugosos, semejantes a los de la generación parental, se desarrollaron también guisantes amarillos rugosos y verdes lisos. Además, al repetir este cruzamiento observó que la proporción en la que aparecían los cuatro fenotipos era siempre la misma: 9:3:3:1, siendo el más frecuente el doble dominante (amarillo liso) y el menos abundante el doble recesivo (verde rugoso).

Los factores hereditarios (genes) se separan al formarse los gametos, de forma que se transmiten por separado a la descendencia.


Interpretación citogenética de la tercera ley

Para poder explicar los resultados que obtuvo Mendel en sus experimentos de la tercera ley debemos suponer que los dos genes que estudió, el color y la textura, se encuentran en distintos cromosomas. Si esto no es así, se dice que los genes están "ligados" y no se cumple el principio de segregación independiente, como descubrió Morgan años más tarde.

La meiosis de estos individuos da lugar a un solo tipo de gametos en cada caso, por lo que las plantas de la primera generación filial serán todas idénticas entre sí. 

Las plantas de esta nueva generación producen cuatro tipos de gametos diferentes cuando sufren la meisis, al combinarse entre sí los cromosomas de todas las formas posibles: amarillo liso y verde rugoso (combinaciones originales), pero tambien amarillo rugoso y verde liso.

Son estos cuatro tipos de gametos los que pueden unirse, de todas las formas posibles, durante la fecundación para dar lugar a una nueva generación (F2), lo que explica la aparición de combinaciones de características que no estaban presentes en la F1 ni en los individuos originales de la generación parental. Así pues, la tercera ley de Mendel es una consecuencia directa de la reordenación de los cromosomas durante la primera división de la meiosis.

Los resultados del cruzamiento entre individuos de la primera generación filial pueden observarse en el siguiente cuadrado de Punnett:


El diseño experimental y las leyes de Mendel

El experimento es el elemento central de las ciencias empíricas o naturales (Física, Química, Geología y Biología), porque es la herramienta que se utiliza para comprobar las hipótesis científicas y, por lo tanto, para desarrollar nuevo conocimiento. 

Un experimento es una reproducción controlada de un fenómeno natural. El adjetivo "controlado" es lo que diferencia al experimento de la observación, y lo que permite extraer conclusiones válidas de lo que se observa en el proceso. Controlar significa, en este contexto, eliminar cualquier aspecto que pueda influir en el desarrollo del fenómeno que estamos reproduciendo. Una vez que se ha controlado el fenómeno, el experimento trata de analizar el comportamiento de una sola característica "variable" cuando se dan ciertas condiciones o de la interacción entre diferentes variables.

En el experimento de la primera ley Mendel utilizó como característica el color de la semilla del guisante. Para empezar, se trata de una característica variable, porque puede tomar dos modalidades: verde y amarillo. Al dejar de observar el resto de las características de la planta "eliminó" esas variables de su estudio, lo que hace de su análisis un auténtico experimento.

El control se consigue mediante la selección de las razas puras. En primer lugar, esto permite establecer un aspecto previo, que damos por sentado pero que hay que comprobar: la característica se transmite de padres a hijos, lo que se demuestra al cruzar entre sí los guisantes y observar que dan lugar a otros con el mismo color de semilla. Otro aspecto que se controla al seleccionar las razas puras es el hecho de que las características no se "pierden" ni desaparecen con el paso de las generaciones.

Queda una última variable que, potencialmente, puede influir en la transmisión de caracteres genéticos en la reproducción sexual: la direccionalidad del cruzamiento. ¿Se obtienen los mismos resultados cuando los individuos que poseen un determinado carácter (por ejemplo el color amarillo) son machos que cuando son hembras? La mejor forma de "neutralizar" esa posible fuente de diferencias en las conclusiones es introduciéndola en el diseño del experimento, es decir, haciendo cruzamientos en las dos direcciones, considerando los resultados por separado y comparándolos entre sí.

Finalmente, queda la cuestión de la "validez" de los resultados obtenidos. La reproducción es un proceso aleatorio y probabilístico, en el que los gametos se encuentran al azar en la fecundación. Un ejemplo lo explicará mejor: la probabilidad de que nazca un niño o una ñina es la misma, del 50%. Sin embargo, esto no significa que cada familia con dos hijos tenga exactamente un varón y una mujer. Los resultados de este tipo se van acercando a la probabilidad teórica a medida que el número de individuos crece, es decir, tienen una validez estadística. Por ese motivo, uno de los aciertos de Mendel, que le permitió superar los problemas que en su momento tuvo Leeuwenhoek, fue utilizar un organismo que produce una gran cantidad de descendientes por generación. En la actualidad, además, habríamos utilizado pruebas de comprobación estadística de los resultados, como la prueba de χ2 ("Chi cuadrado").

martes, 11 de noviembre de 2014

La informacion genética: introducción

Informar significa dar forma o realidad a algo, proporcionar datos a alguien sobre un determinado aspecto. La característica más importante de la información es que tiene "significado", es decir, que puede ser utilizada por el destinatario de esa información para llevar a cabo algún tipo de acción, de forma ordenada, según se establece en ella. Además, la información puede ser almacenada en una "memoria" y puede ser transmitida, es decir, comunicada de un individuo a otro. Este blog es un ejemplo de información que puede ser almacenada en una memoria, utilizada para producir algún tipo de efecto (espero que un cambio en tu conocimiento de la Biología) y transmitida. Pero para que la información sea útil tiene que "expresarse". Si el contenido de esta entrada permanece almacenado en el servidor, sin que nadie lo lea, seguirá siendo información, pero no servirá para nada; no se habrá expresado.

En las células también hay información. Las células poseen un conjunto de datos que les permiten "darse forma" a sí mismas. Son datos almacenados que poseen significado, porque permiten que las células lleven a cabo todos los procesos que constituyen su funcionamiento, que se encuentran "almacenados" en una memoria y que pueden ser transmitidos de una célula a otra (a sus descendientes). Por último, también necesitan expresarse para resultar útiles. Ese conjunto de datos almacenados en una determinada estructura celular, que la célula puede utilizar como instrucciones para funcionar y que pueden ser transmitidos a las siguientes generaciones de células es la información genética. Para poder completar una definición se puede añadir que la estructura que almacena la célula es, como veremos más adelante, el ADN (ácido desoxirribonucleico). Las células utilizan esa información para todo lo que necesitan hacer: obtener recursos del exterior, fabricar sus propios componentes, organizar esos componentes para formar estructuras o controlar el funcionamiento de esas estructuras para que respondan adecuadamente a los cambios que se producen en el entorno de la célula.

La información genética tiene que expresarse para ser útil. En los seres vivos, esto significa que la información es leída y utilizada para producir "herramientas" como si se tratara de un manual de instrucciones Las herramientas que la célula construye al leer la información genética son sus proteínas.

Hipótesis sobre la naturaleza de la información genética

Todo lo que se ha dicho hasta ahora no especifica dónde se encuentra la información genética dentro de la célula; tan solo sabemos que debe haberla, que es necesaria para el funcionamiento organizado de la célula, y que debe poder ser almacenada en alguna estructura celular.

Casi desde el principio del estudio de la célula el núcleo llamó la atención de los investigadores por su posición preferente respecto al resto de los orgánulos, y enseguida se supuso que esta estructura resultaba fundamental para el funcionamiento de la célula. Cuando se descubrió que el número de cromosomas se mantiene constante después de la reproducción celular se dedujo que la información genética debía estar almacenada en ella, aunque sin saber cómo explicar su base física. Finalmente, el descubrimiento de la estructura del ADN por Watson y Crick fue lo que permitió explicar el modo en que la información genética puede ser almacenada, expresada y transmitida.


El núcleo celular

El núcleo de las células es un orgánulo muy dinámico, que presenta aspectos totalmente distintos a lo largo de la vida de la célula, dependiendo de si se está dividiendo o no.

Cuando la célula está en proceso de división el núcleo ni siquiera es visible como tal, ya que la envuelta nuclear es reabsorbida por el retículo endoplásmico rugoso, y en el espacio que ocupaba se puede observar la presencia de los cromosomas, cuerpos de gran tamaño (visibles al microscopio óptico) formados por todo el ADN de la célula y diferentes proteínas asociadas a él. Además, a lo largo de la división celular los cromosomas se mueven y cambian de forma continuamente, precisamente porque lo que está ocurriendo es su reparto entre las dos células hijas.

Durante los periodos en los que la célula no se está dividiendo, que constituyen la mayor parte de la vida de la célula (muchas veces su totalidad, porque muchas células del organismo no se dividen nunca, aunque puedan hacerlo), el núcleo presenta un aspecto diferente: sí se aprecia la envuelta nuclear, pero en su interior no son visibles los cromosomas. En su lugar, el interior del núcleo (nucleoplasma) está ocupado por un material de aspecto granuloso que recibe el nombre de cromatina. Además es claramente visible una estructura de aspecto distinto, más densa a los electrones y de forma aproximadamente esférica (circular en la imagen) llamada nucleolo.

La cromatina es la forma en la que el material genético aparece en el núcleo cuando la célula está realizando sus funciones habituales, y está formada por ADN y proteínas. Cada célula de un organismo utiliza solo una parte de toda la información genética que contiene, lo que se aprecia incluso a través del microscopio electrónico: una parte de la cromatina tiene un aspecto más claro, y recibe el nombre de eucromatina. En ella se encuentra la información utilizada por esa célula. El resto, por el contrario, tiene un aspecto más oscuro, lo que significa que es más densa. Recibe el nombre de heterocromatina.


Cuando se utilizan grandes aumentos para observar la cromatina se aprecia que se trata de una estructura en forma de hilo (ADN) que se enrolla, a intervalos regulares, en torno a unos engrosamientos formados por proteínas llamadas histonas. Los grupos de proteínas se denominan nucleosomas y el conjunto recibe el nombre de fibra nucleosómica. La diferencia entre eucromatina y heterocromatina también se aprecia a este nivel de detalle: en las regiones de eucromatina los cromosomas están más separados entre sí que en las de heterocromatina.

La fibra cromosómica tiene un grosor aproximado de 11 nm, mientras que los cromosomas que se pueden observar durante la división celular tienen un diámetro de unos 700 nm. Para pasar de una estructura a otra, el ADN se asocia a otros tipos de proteínas y, sobre todo, se enrolla sobre sí mismo formando lazos y espirales que dan lugar al cromosoma.
Los cromosomas durante la división celular

Los cromosomas son una herramienta para empaquetar y proteger el ADN durante la división celular. En el núcleo en interfase, el material genético está desenrollado, lo que permite que se "exprese", es decir, que su información pueda ser leída. Sin embargo, esta estructura hace difícil su reparto entre las células hijas durante la reproducción, porque se trata de moléculas largas y finas, que podrían enredarse y romperse con facilidad. La célula evita este problema formando "bobinas" más compactas, en las que el ADN está, además, protegido por proteínas que le sirven de soporte.

Durante la fase de división celular los cromosomas llegan a ser visibles al microscopio óptico. Además, son estructuras que absorben muy bien los colorantes que se usan para teñir las células, característica de la que procede su nombre (cromosoma significa cuerpo coloreado). La tinción de los cromosomas no es homogénea, sino que algunas regiones absorben más colorante que otras, dando lugar a un patrón de bandas claras y oscuras, propio y característico de cada cromosoma concreto, que permite distinguirlo de los demás como si se tratara de un "código de barras". Los patrones de bandas cromosómicas se utilizan para identificar los cromosomas, y para detectar alteraciones de los mismos si algunas bandas cambian de posición respecto a su ubicación normal.

Durante la división celular los cromosomas presentan una forma de "X", que es la que se utiliza habitualmente para representarlos. Sin embargo, es importante recordar que este aspecto solo se observa cuando la célula va a dividirse, después de que haya duplicado su información genética.

La forma de los cromosomas durante la división celular se debe a que están formados por dos "cromátides" (o cromátidas) iguales entre sí, unidas mediante una estructura denominada centrómero. Se puede comprobar que las cromátides que forman cada cromosoma son idénticas entre si porque presentan exactamente las mismas bandas. Cada cromátide está formada por una sola doble hélice de ADN, asociada a las proteínas correspondientes.

El centrómero también separa, en dirección transversal a las cromátides, dos brazos en cada cromosoma. Los brazos del cromosoma pueden tener el mismo tamaño o tamaños distintos. Según cual sea la posición del centrómero se distinguen cromosomas metacéntricos (los dos brazos son iguales), submetacéntricos (un brazo es ligeramente más largo que el otro), acrocéntricos (un brazo es significativamente más corto que el otro) y telocéntrico (el centrómero parece estar en uno de los extremos del cromosoma).

Los extremos de los cromosomas suelen distinguirse del resto de los brazos porque en ellos el ADN está más condensado. Esas regiones reciben el nombre de telómeros.
El hecho de que las bandas cromosómicas sean una característica constante de cada cromosoma se ha utilizado tradicionalmente para identificar los diferentes cromosomas de una especie, e incluso para localizar los genes que se encuentran en ellos. El estudio de los patrones de bandas ha permitido, de esa forma, saber si un cromosoma está alterado, y relacionar esas alteraciones con ciertas enfermedades genéticas, lo que ha permitido el diagnóstico prenatal de las mismas, mediante la técnica de la punción amniótica (durante el embarazo se extrae una pequeña cantidad de líquido amniótico, que contiene células del feto. Esta práctica no daña ni a la madre ni al niño).

Para facilitar el estudio de los cromosomas y de sus bandas se fotografían las células en división, y se ordenan los cromosomas de mayor a menor (excepto los cromosomas sexuales, que se colocan al final), alineando sus centrómeros. Esta imagen, que incluye todo el material genético de un organismo y que permite detectar algunas alteraciones genéticas (cambios en el número de cromosomas, falta de fragmentos o cambio en la posición de las bandas, por ejemplo), recibe el nombre de cariotipo. 
 
En la mayoría de los organismos se observa que cada célula posee una pareja de cada tipo de cromosoma, de modo que se dice que los dos cromosomas de la misma pareja son homólogos entre sí. Las especies, los individuos o las células que tienen parejas de cromosomas homólogos se denominan diploides, mientras que las que solo tienen un cromosoma de cada tipo son llamadas haploides. Los organismos diploides se identifican por el número de parejas de cromosomas, ya que este número es fijo para todos los individuos de una misma especie. Así, nuestra especie posee 23 pares de cromosomas (no 46 cromosomas).

El contenido de los cromosomas

Cada cromátide de cada cromosoma es una única hebra de ADN, formada por dos cadenas. Dentro de esta molécula enormemente larga solo algunas regiones, llamadas genes, contienen la información necesaria para elaborar las proteínas, mientras que el resto del ADN podría jugar algunas funciones que, en general, aún no se conocen bien. 

Asimismo, dentro de cada gen hay algunas partes que contienen la información que la célula utilizará directamente para producir las proteínas, mientras que otras permiten determinar cuándo y en qué cantidad debe elaborarse esa proteína. Así pues, el material genético dirige y controla el funcionamiento celular. La información que contiene determina la estructura de las proteínas, pero también cuáles, cuántas y cuándo se producen.

viernes, 16 de abril de 2010

¿Qué hay en un gen?

El de gen es uno de los conceptos biológicos que más ha cambiado de significado a lo largo del tiempo. De hecho, cuando se propusieron las primeras definiciones para este concepto ni siquiera se tenía una idea clara de la realidad material a la que hace referencia (como fragmento de ADN), y en principio se consideraba, simplemente, que un gen era la unidad básica de transmisión de la información genética.

Más adelante, una vez que se hubo conocido la base química de la herencia de los caracteres hereditarios, se identificó claramente un gen con un segmento de ADN que contiene la información genética suficiente para dar lugar a una proteína. La expresión "un gen, una proteína" se hizo tremendamente popular entre los biólogos moleculares.

Sin embargo, los avances en biología molecular que se han producido entre 1950 y la actualidad han provocado un cambio considerable en la idea que se tiene acerca de los genes. Uno de los factores que más ha contribuido a ese cambio de visión ha sido el conocimiento del genoma humano en su totalidad, proporcionado por el proyecto Genoma Humano: se sabía que el hombre fabrica unas 90.000 proteínas distintas, por lo que se esperaba que el número de genes fuera de unos 100.000, posiblemente más. Sin embargo, la secuencición total de nuestro genoma arrojó un resultado sorprendente: el número total de genes de la especie humana no supera los 25.000. ¿Cómo puede ser esto posible? Desde luego, no lo es si tratamos de mantener la idea tradicional, propuesta en su momento por Jacques Monod, que establecía la equivalencia entre genes y proteínas. La respuesta puede encontrarse, al parecer, en los intrones.

Los genes eucariotas no son continuos, sino que están "interrumpidos". Para explicarlo de una forma más o menos sencilla, un gen vendría a ser como un programa de televisión, con su secuencia lineal de información. En este modelo, un intrón sería, simplemente, un intermedio en el programa: un segmento intercalado que no incluye información significativa en relación con el contenido del resto del programa. Tradicionalmente, desde su descubrimiento, los intrones han sido considerados de este modo, hasta el punto de que se les consideraba "ADN basura".

Sin embargo, es difícil pensar que una cantidad semejante de ADN pueda permanecer en un organismo sin proporcionar ninguna ventaja adaptativa: por término medio, un gen humano consta de 7,8 exones y 8,8 intrones. El mantenimiento de los intrones es muy costoso para la célula, ya que supone la síntesis de los nucleótidos que los constituyen y el mantenimiento de tales elementos durante la replicación y la transcripción, en teoría solo para reciclarlos, de nuevo con gasto energético, después del splicing del ARN. La selección natural ejerce una enorme presión en contra de sistemas tan despilfarradores como este, de modo que resulta muy improbable que se mantuviera si no aportara, a cambio, algunas otras ventajas.

Más aún. Es una idea aceptada entre los biólogos que la importancia evolutiva de un fragmento de ADN es directamente proporcional a su grado de conservación a lo largo de la historia biológica. En efecto, cuanto mayor es la importancia biológica de una secuencia de ADN, más importante es que se conserve activa, por lo que las mutaciones que la afectan son eliminadas en cuanto suponen pérdida de eficacia biológica. Si esto es así, los intrones deben resultar muy importantes porque su grado de conservación es mayor, incluso, que el de las proteínas.

Si todo esto es así, hay que suponer que los intrones desempeñan funciones biológicas importantes. Los últimos datos disponibles sugieren dos de estas funciones: la reguladora y el incremento de la diversidad genética de los organismos.

Respecto a la primera de estas funciones, la regulación de la expresión génica, se dispone de pruebas que demuestran que pequeños fragmentos de ARN (microARN), procedentes del procesamiento de los intrones y de otras moléculas no traducidas de ARN, participan en procesos de regulación de la expresión génica relacionados con el desarrollo: mantenimiento de las células madre, proliferación celular y apoptosis (muerte celular programada).

En cuanto a la segunda función, la generación de diversidad genética, los intrones parecen participar en la existencia de diferentes variedades de proteínas mediante procesos alternativos de procesamiento de ARN. Dicho de otra forma, un mismo gen (o, mejor dicho, una misma unidad de transcripción), puede producir diferentes proteínas en distintos tejidos del organismo, o en distintas condiciones ambientales.

El procesamiento alternativo consiste en que un mismo transcrito primario de ARN, con varios intrones incluidos, puede ser procesado de modos diferentes, es decir, pueden formarse proteínas con estructuras primarias distintas a partir de la misma secuencia.
El procesamiento alternativo aporta una posible explicación a la diferencia entre el número de genes del genoma humano y el número de proteínas sintetizadas por él, aunque también requiere una explicación: el modo en que se ha generado. De momento, la hipótesis más plausible supone la participación de transposones, es decir, de elementos génicos que pueden insertarse en diferentes puntos del genoma. En humanos, en particular, las regiones transponibles llamadas "Alu" parecen haber jugado un papel fundamental en la diferenciación de nuestra especie de los primates más emparentados con nosotros. De hecho, una característica peculiar del genoma humano es que posee la proporción de intrones más elevada de todos los genomas estudiados hasta el momento, siendo particularmente numerosas precisamente las secuencias Alu.


martes, 16 de marzo de 2010

Mutaciones

El material genético de los organismos contiene información vital para su funcionamiento, razón por la cual es necesario garantizar su estabilidad y su inmutabilidad. Sin embargo, y a pesar de que los seres vivos poseen mecanismos para asegurarse la fidelidad de los procesos de copia de la información, de vez en cuando se producen cambios en la secuencia de nucleótidos que constituyen el genoma de los organismos. Cualquier cambio de este tipo recibe el nombre de mutación.

Las mutaciones se deben siempre a la acción de agentes, físicos o químicos, que interaccionan con el ADN celular, alterándolo. Los agentes físicos son algún tipo de energía que puede ser "absorbida" por el material genético, provocando modificaciones en él. Entre este tipo de fenómenos se encuentran las fuentes de radiación como rayos gamma, X o ultravioleta, que pueden interferir con esta molécula; las radiaciones más energéticas pueden llegar a romper físicamente los cromosomas, mientras que las de menor contenido energético, como los rayos ultravioleta, pueden ser absorbidos por algunas bases del ADN que, como resultado de ese proceso, ven cambiar su estructura química, o reaccionan con las bases vecinas.

Los agentes mutágenos también pueden ser sustancias químicas. En este caso, puede tratarse de compuestos capaces de reaccionar con alguno de los componentes del ADN (por ejemplo los agentes intercalantes, que se introducen dentro de la doble hélice y pueden formar enlaces covalentes con las bases nitrogenadas) o, incluso, pueden ser introducidos dentro de la molécula de ADN en lugar de alguna de las bases correctas (análogos de bases).

Clasificación de las mutaciones

Las mutaciones pueden clasificarse en función de diferentes criterios, todos ellos de cierta importancia a la hora de entender los efectos que producen:
  • Según las células que resultan afectadas
    • Mutaciones somáticas: no se transmiten a la descendencia, pero pueden alterar de un modo considerable su funcionamiento y el del organismo en general. El cáncer puede ser el resultado de mutaciones somáticas.
    • Mutaciones germinales: se producen en células de la línea germinal, que darán origen a gametos, por lo que pueden transmitirse a la descendencia del organismo.
  • Según la causa que las produce:
    • Naturales o espontáneas: son producidas por agentes presentes en el entorno de modo natural.
    • Inducidas: producidas por agentes mutágenos.
  • Según los efectos que producen sobre el organismo:
    • Neutras, si no afectan a la capacidad de supervivencia. Ocurren, por ejemplo, cuando cambia un codón por otro sinónimo.
    • Beneficiosas, si incrementan las posibilidades de supervivencia del organismo.
    • Perjudiciales, que a su vez pueden ser:
      • Letales, si producen la muerte de al menos el 90% de sus portadores.
      • Subletales, si provocan la muerte de menos del 10% de los portadores
      • Patológicas, si dan lugar a alguna enfermedad.
  • Según el tipo de determinación genética que suponen:
    • Dominantes
    • Recesivas
    • Condicionales: solo se manifiestan cuando se dan determinadas circunstancias ambientales.
  • Según la alteración genética producida:
    • Génicas: afectan a la secuencia de un solo gen.
    • Cromosomicas: alteran la estructura de los cromosomas.
    • Genómicas: cambian el número de cromosomas.
Las posibles consecuencias de las mutaciones para una célula o un organismo son muy variables, y pueden suponer la muerte del individuo que las porta (mutaciones deletéreas) o, en casos menos graves, cambios morfológicos o pérdida de función de uno o varios genes. Un caso particular de pérdida de función de un gen lo constituyen las mutaciones bioquímicas o nutritivas, que suponen la imposibilidad de que la célula pueda utilizar o metabolizar algún compuesto químico. A escala de individuo completo, algunas mutaciones de este tipo son la intolerancia a la lactosa, la enfermedad celiaca o la fenilcetonuria (PKU). Muchas de estas mutaciones bioquímicas son, típicamente, mutaciones en las que solo está afectado un gen.
Mucho menos frecuentes, pero de gran interés desde el punto de vista evolutivo, son las mutaciones en las que se produce la ganancia de función por parte de algún gen. En estos casos, si existen varias copias del mismo gen (lo que es bastante frecuente en los eucariotas) el organismo mantiene la función original, al tiempo que se puede beneficiar de la nueva función adquirida. Este hecho explica la importancia del "ADN basura", que en realidad representa para los organismos una importante reserva de material genético a partir de la cual desarrollar, mediante mutaciones, nuevas capacidades que pueden llegar a resultarles de utilidad.

Mutaciones génicas

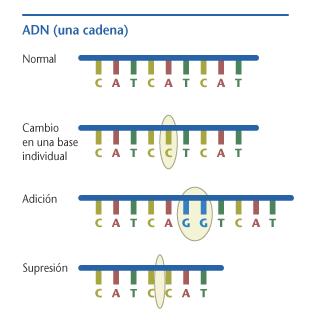
Las mutaciones génicas o puntuales son aquellas que afectan solo a un gen. En general, se deben a la ocurrencia de errores durante la replicación del ADN que escapan a la reparación por parte de alguno de los sistemas de reparación con los que cuenta la célula. Se pueden distinguir varios tipos de mutaciones génicas:
  • Sustituciones de una base por otra. Casi siempre afectan a un único triplete, y por lo tanto suponen, como mucho, el cambio de un aminoácido por otro en la proteína resultante. Excepciones a esto se produce si el triplete que resulta de la mutación da lugar a un codón stop, en cuyo caso el resultado final es una proteína "truncada", más corta que la original y, por lo tanto, muy probablemente inútil, o si se ven afectados los puntos de splicing, es decir, las zonas que determinan el inicio y el final de los exones. Además, si la mutación se produce en la última base de un codógeno, es muy probable que sea una mutación "silenciosa", porque frecuentemente dará lugar a un codón sinónimo del original. Existen dos posibles tipos de sustitución:
    • Transiciones, que suponen el cambio de una base por otra del mismo grupo (purina por purina o pirimidina por pirimidina)
    • Transversiones, que suponen el cambio de una purina por una pirimidina o viceversa.


    • Mutaciones que afectan al marco de lectura: se trata de cambios en el número de nucleótidos de la cadena. Como la lectura en el ribosoma se produce de forma "modular", es decir, el ribosoma lee los codones tomando la cadena de ARN de tres en tres nucleótidos, este tipo de mutaciones supone el cambio de la secuencia de la proteína a partir del punto en el que se ha producido la mutación. El resultado es una proteína totalmente diferente a la original, que puede ser más larga o más corta en función de dónde aparezca el nuevo codón de stop.
      • Adición o inserción: consisten en la introducción de una base de más en la cadena de ADN.
      • Supresión o deleción de una base.

    Mutaciones cromosómicas

    El término mutaciones cromosómicas hace referencia a aquellos cambios en el material genético que modifican la estructura de uno o varios cromosomas. Como estas estructuras son observables mediante microscopía óptica, y como pueden "mapearse" mediante técnicas de tinción diferencial que dan lugar a la aparición de bandas de diferente color, las mutaciones cromosómicas resultan fácilmente visibles, lo que ha hecho de ellas un objeto de estudio desde hace mucho tiempo. Básicamente se distinguen dos grandes grupos de modificaciones de este tipo: las que suponen un cambio en el número de genes (por adición o eliminación) y las que "solo" producen un cambio en la posición de los genes.
    • Deleciones: consisten en la pérdida de un fragmento cromosómico, lo que puede ocurrir tanto en uno de los extremos del cromosoma como en su parte intermedia. Cuando ocurren en ambos cromosomas homólogos suelen provocar la muerte del individuo que las porta, por la falta de genes que supone. En heterocigosis su efecto depende del tamaño del fragmento. En humanos, la deleción apreciable más significativa es la pérdida de un fragmento del brazo corto del cromosoma 5, que da lugar a una enfermedad llamada "Grito del gato", que produce la muerte de los niños al poco de su nacimiento.
    • Duplicaciones: consisten en la aparición repetida de un fragmento de cromosoma como consecuencia de un error durante la replicación. En general, las mutaciones no producen consecuencias perjudiciales. Más bien al contrario, proporcionan material genético nuevo que puede facilitar la evolución, ya que los genes originales siguen existiendo. Muchas familias de genes que dan lugar a proteínas relacionadas tienen este origen.
    • Inversiones: son reorganizaciones de fragmentos de un cromosoma que cambian su orientación respecto al resto del cromosoma, para lo cual ha tenido que producirse la rotura completa de ambas cadenas de ADN, un giro de 180º del fragmento, y su unión en la dirección incorrecta. Pueden afectar al centrómero (inversión pericéntrica) o dejarlo fuera (inversión paracéntrica). Aunque en principio podría parecer que las inversiones no afectan al contenido de la información genética del organismo, en realidad sí que tienen influencia, porque afectan a la meiosis: los fragmentos invertidos no se aparean con su cromosoma homólogo, y los genes incluidos en ellos no se recombinan.
    • Translocaciones: consisten en el desplazamiento de un fragmento de cromosoma a otro lugar del genoma. Puede tratarse de translocaciones no recíprocas, si solo se produce el movimiento de un fragmento, o de translocaciones recíprocas, si se produce el intercambio entre fragmentos de dos cromosomas no homólogos. En la especie humana, uno de los casos más frecuentes es la translocación de casi todo el cromosoma 21 al brazo corto del cromosoma 14 (imagen de la derecha), que da lugar a un individuo con 45 cromosomas pero que puede ser fértil. En este caso se produce el "Síndrome de Down familiar", única circunstancia en la que esta enfermedad puede heredarse. Las translocaciones pueden tener gran importancia evolutiva, ya que pueden dar lugar a poblaciones de la misma especie con un número diferente de cromosomas, lo que se traduce en que ambos grupos quedan aislados genéticamente entre sí lo que, finalmente, provocará que formen especies distintas.

     Mutaciones genómicas

    Se utiliza este concepto para definir los cambios en el material genético de un organismo que suponen un cambio en su número de cromosomas. Siempre producen consecuencias graves en el individuo, especialmente cuando provocan una pérdida de material genético. Las mutaciones de este tipo que tienen mayor posibilidad de dar lugar a individuos viables si los cromosomas afectados son muy pequeños o los que determinan el sexo del individuo.

    Se distinguen dos tipos de mutaciones genómicas: las que afectan a juegos de cromosomas completos, que reciben el nombre de euploidías (porque cambian la ploidía, el número de cromosomas característico de la especie) y las que provocan la variación en el número de unos pocos cromosomas, que reciben el nombre de aneuploidías:
    • Euploidías: son muy poco frecuentes en animales, pero relativamente habituales en vegetales, en los que suelen dar lugar a nuevas variedades.
      • Monoploidía o haploidia: consiste en la pérdida de un juego completo de cromosomas por parte del individuo, con lo cual todas sus células son haploides, como los gametos.  Existen algunos organismos que son haploides al menos en algunas fases de su vida, pero aparte de esos casos la haploidía es rara. Si los individuos de este tipo sobreviven, pequeño tamaño y poco vigorosos. En todo caso sus gametos son inviables. Es posible beneficiarse de la haploidia inducida, si se puede lograr duplicar los cromosomas de un individuo de este tipo, porque se obtiene un organismo totalmente homocigoto, lo que es prácticamente imposible por otros mecanismos.
      • Poliploidía: se trata del proceso por el cual un organismo aumenta su número de juegos cromosómicos completos. Cuando el organismo sobrevive, lo que ocurre mucho más frecuentemente en plantas que en animales, tiende a ser más grande y más vigoroso que el diploide normal. En vegetales, la poliploidía puede producirse por duplicación del genoma de un único individuo o por hibridación con otra especie (aloploidía). La poliploidía ha sido utilizada habitualmente como mecanismo de mejora genética en vegetales.
    • Aneuploidías: falta o sobra algún cromosoma respecto de la dotación correcta, pero no el juego completo.
      • Nulisomía: faltan los dos cromosomas del mismo par. En general tiene efectos letales, porque el individuo carece por completo de esos genes.
      • Monosomía: Falta una de las copias del cromosoma. En humanos, el único ejemplo de monosomía total (falta de todo el cromosoma) es el síndrome de Turner, consistente en que los individuos que lo presentan poseen un único cromosoma sexual (X0).
      • Trisomía: un cromosoma posee tres copias en lugar de dos. En general, los individuos que la portan son inviables o presentan graves trastornos de todo tipo. En humanos la más conocida es la trisomía del cromosoma 21, que da lugar al síndrome de Down, aunque también pueden producirse trisomías de los cromosomas sexuales (síndrome de Klinefelter, XXY, síndrome de triple X, síndrome XYY, muy relacionado con comportamientos muy violentos) o de otros autosomas, si bien mayoritariamente son inviables.
      • Tetrasomías y pentasomías: aunque son extremadamente raras, se conocen casos de individuos con cuatro o cinco cromosomas sexuales, en diversas combinaciones.
    Importancia biológica  

    Todos los seres vivos son el resultado de un proceso de evolución biológica que se ha producido como consecuencia de un ciclo de variación genética - presión selectiva - selección. Aunque existen diferentes mecanismos para que una variación de las características genéticas se extienda por una población, solo hay un mecanismo molecular posible para originar esa variación: la mutación, en cualquiera de sus formas.

    No todos los tipos de mutaciones son igualmente productivos en términos de posibilidades evolutivas. Los más interesantes desde ese punto de vista son los que permiten la aparición de nuevas características sin pérdida de las originales, porque proporcionan al organismo más posibilidades biológicas de las que tenía. En este sentido, cobran una importancia particular los mecanismos de duplicación (mutación cromosómica) y poliploidía, que proporcionan material genético nuevo, que se añade al que ya existía. Tras esos primeros procesos, las mutaciones puntuales, capaces de modificar la funcionalidad de las proteínas, explican la aparición de alelos nuevos, que pueden tener (o no) características ventajosas.

    lunes, 15 de marzo de 2010

    Concepto de gen y regulación de la expresión genética

    El material genético de una célula incluye su ADN (que en el caso de los eucariotas supone tanto el ADN nuclear como el de los orgánulos que lo poseen) y el ARN presente en la célula en un momento determinado. El conjunto de todo el ADN de la célula recibe el nombre de genoma, mientras que el conjunto del ARN presente en ella, que es una selección de este material genético, se denomina transcriptoma.

    No todo el ADN de una célula sirve de molde para producir ARN, o lo que es lo mismo: existen diferencias considerables entre el genoma y el transcriptoma de la célula. La porción de ADN que no da lugar a ARN se denomina no codificante y, aunque hace algún tiempo se denominaba "ADN basura" hoy se sabe que juega importantes papeles en el funcionamiento celular. Según el número de veces que una secuencia de ADN no codificante aparece en el genoma se distinguen los siguientes tipos:
    • ADN altamente repetitivo: está formado por secuencias cortas de nucleótidos que se repiten un elevado número de veces a lo largo de un fragmento de la molécula de ADN. Aparece especialmente en los centrómeros y los telómeros, por lo que se supone que juega un papel estructural.
      • Los telómeros se encuentran en el extremo de los cromosomas. Son particularmente ricos en C+G, lo que hace que en ellos ambas hebras de la doble hélice se mantengan estrechamente unidas, ya que estas bases forman entre sí tres enlaces por puente de hidrógeno frente a los dos que forman A y T. Parece ser que los telómeros sirven para mantener la integridad estructural de los cromosomas, como parece desprenderse del hecho de que las células que sufren más divisiones tienen telómeros más cortos.
      • Los centrómeros permiten la unión de las cromátides entre sí y con los microtúbulos del huso acromático durante la división celular.
    • ADN moderadamente repetitivo, disperso a lo largo de los cromosomas.
    • ADN de copia única. Una buena parte de este ADN tiene funciones relacionadas con la regulación de la expresión génica, es decir, con los procesos que determinan qué genes se expresan en un momento dado.
    El ADN codificante también puede encontrarse como material genético de "copia única", en cuyo caso lleva información para proteínas, o como ADN moderadamente repetitivo, que incluye los genes que codifican para las histonas o para los ARN ribosómicos y transferentes.

    En resumen, las zonas del genoma que llevan información para la síntesis de proteínas representan solo una pequeña parte del mismo, aproximadamente el 3%, lo que no significa que el resto no cumpla con importantes funciones dentro de la célula.

    Existen diferencias significativas entre la organización del genoma de procariotas y de eucariotas:
    PROCARIOTAS

    EUCARIOTAS


    • Un único cromosoma (genóforo). Pueden
      existir, además, elementos accesorios (plásmidos).


    • Existen siempre varios cromosomas en el núcleo,
      además del genoma de los orgánulos que lo poseen


    • Genes dispuestos uno a continuación del otro; existe
      poco ADN espaciador. En ocasiones, los genes pueden estar incluso
      solapados.


    • Genes separados entre sí por largas regiones de ADN
      espaciador.


    • Casi todas las secuencias del genoma codifican o son
      secuencias reguladoras.


    • Existen muchas secuencias no codificantes, gran parte de
      ellas repetitivas


    • Los genes son continuos


    • Las secuencias codificantes de los genes (exones)
      está interrumpida por secuencias que no llegan a formar parte de
      las moléculas codificadas (intrones).


    La información genética de los organismos está organizada en unidades llamadas genes. Actualmente se sabe que algunos genes (entendidos como fragmentos de ADN que son transcritos en el mismo proceso) codifican más de una macromolécula. Lo que sucede en esos casos es que la molécula inicialmente sintetizada es modificada para dar lugar a otras más pequeñas, como sucede en el caso de los genes que codifican para los ARN ribosómicos, o en muchos genes estructurales bacterianos. También se sabe que algunas proteínas constan de varias cadenas polipeptídicas (proteínas con estructura cuaternaria), por lo que son codificadas por más de un gen.

    Por último, el conocimiento a escala molecular de los procesos relacionados con la expresión genética ha permitido saber que no toda la secuencia de nucleótidos necesaria para la formación de la macromolécula funcional resultado del gen llega a "manifestarse" en esa molécula. Dicho de otra forma, cada gen incluye secuencias de nucleótidos que son necesarias para desarrollar su función, pero que no son "visibles" en el resultado final de su expresión. Esas secuencias incluyen las zonas que dirigen la transcripción (regiones promotoras) y los intrones, fragmentos de ADN que, en los genes eucariotas, se encuentran intercalados entre las regiones que sí que van a dar lugar a la macromolécula final, a modo de "intermedios" intercalados en un programa de televisión.

    La definición actual del término gen incluye una doble perspectiva:
    • Desde el punto de vista funcional, un gen es la unidad mínima de información genética que puede heredarse.
    • Desde el punto de vista estructural se trata de una secuencia lineal y organizada de nucleótidos que contiene la información necesaria para dar lugar a una macromolécula con función celular específica. En este concepto se incluyen tanto las proteínas como los ARN. 


    Regulación de la expresión génica

    Todas las células somáticas de un mismo organismo presentan, en principio, el mismo genoma. No ocurre así con las células germinales (óvulos o espermatozoides), ya que éstas son el resultado de una meiosis, de modo que solo poseen una copia de cada uno de sus genes. Sin embargo, el transcriptoma de dos células distintas puede ser diferente, en función del tejido del que forman parte y de su estado fisiológico (fase del ciclo celular en la que se encuentran, disponibilidad de nutrientes, estado del organismo que influye sobre cada una de las células...). En cada célula existe un conjunto de genes que se expresan de modo casi permanente, en las condiciones de vida habituales para ella (genes constitutivos), mientras que otros solo se expresan en ciertas condiciones, o no se expresan nunca (genes no constitutivos o facultativos). La regulación de la expresión génica incluye los mecanismos que permiten activar o detener los genes facultativos y, en ciertas condiciones, detener la expresión de los constitutivos.

    El conjunto de procesos que determinan qué genes de la célula se transcriben en un momento determinado constituye la regulación genética. Los mecanismos de regulación son de extraordinaria importancia para la célula, porque le permiten tener en cada momento todas las macromoléculas que necesitan para realizar sus funciones, y solo aquellas que utilizan en cada momento, ajustando de este modo su fisiología de un modo óptimo.

    En procariotas los principales mecanismos de regulación afectan a la transcripción de los genes, es decir, al proceso mediante el cual éstos son leídos para producir una molécula de ARN. En general, la unión de la ARN polimerasa al promotor (la secuencia que contiene la TATA box, justo junto al inicio de la transcripción) requiere, además, la participación de otras proteínas que también tienen capacidad para unirse al ADN en otras zonas de su secuencia, las regiones reguladoras del gen que se va a transcribir. Normalmente, en estos tipos de organismos los mecanismos de regulación actúan simultáneamente sobre un conjunto de genes cuyos productos están relacionados, porque intervienen en la misma ruta metabólica. El conjunto de elementos que intervienen en un proceso unitario de regulación de la expresión génica se denomina operón.

    Cada operón incluye varias secuencias genéticas, algunas de las cuales se encuentran juntas, mientras que otras pueden estar alejadas dentro del cromosoma bacteriano:
    • Los genes estructurales: se trata de la región codificante, que da lugar a las proteínas cuya síntesis se regula. Normalmente en los procariotas una única región del ADN que se transcribe de una sola vez sirve de molde para la síntesis de varias proteínas relacionadas.
    • El promotor, zona del ADN donde se une la ARN polimerasa. Incluye la TATA box, y es adyacente a la región codificante.
    • La región reguladora. Esta zona es el punto de unión de las proteínas reguladoras, las cuales permiten o impiden, según los casos, la unión de la ARN polimerasa al promotor y. por tanto, la transcripción del gen.
    • El gen que codifica la proteína reguladora está, en realidad, fuera del operón, pero guarda relación con su funcionamiento.
    La regulación de la expresión génica ocurre como respuesta a una situación fisiológica de la célula. Se desencadena como consecuencia de un estímulo, que es una molécula capaz de unirse a la proteína reguladora. Este hecho hace que dicha proteína cambie su capacidad de asociarse con el ADN, modificando en cadena la posibilidad de que la ARN polimerasa realice su trabajo.

    Existen dos tipos fundamentales de operones, en función de cómo reaccionen al estímulo. Los operones inducibles, como el operón lactosa de Escherichia coli, responden a la llegada del estímulo haciendo que se inicie la transcripción de los genes regulados. Por el contrario, los operones represibles, como el operón triptófano de la misma bacteria, responden haciendo que se detenga la transcripción de esos genes.

    Los eucariotas tienen un genoma y un proceso de expresión génica más complejo que los procariotas  (incluye, por ejemplo, la necesidad de que el ARN sea procesado después de su síntesis). Esto permite que existan más sistemas de control de la expresión:
    • Mecanismos pre-traduccionales: afectan a la integridad del propio genoma o a la estructura del ADN. Por ejemplo, los glóbulos rojos pierden todos sus genes (es un caso extremo), mientras que en ciertas células de algunos organismos el ADN de determinados genes se multiplica más de lo normal, produciéndose en múltiples copias (amplificación génica). Otro mecanismo de control es la modificación química de ciertas bases, en concreto las citosinas de la región promotora de determinados genes, que dificultan su transcripción.
    • Mecanismos transcripcionales: los eucariotas poseen también mecanismos similares a los operones de procariotas, es decir, regiones reguladoras que modifican la unión de las ARN polimerasas. En este caso, esas regiones reguladoras pueden estar lejos o cerca del promotor del gen. Además de estos mecanismos, pueden existir promotores con distintas características, o utilizarse factores de iniciación de la transcripción diferentes para distintos tipos de genes.
    • Mecanismos postranscripcionales: en los organismos eucariotas puede modificarse la maduración del ARN de algunos genes de unos tejidos a otros. También puede alterarse el punto de finalización del gen, modificando el lugar donde se añade la cola poliA, o la estabilidad del ARN sintetizado.
    • Mecanismos traduccionales y postraduccionales: finalmente, puede estar regulado el proceso de traducción o el ciclo de vida de la proteína sintetizada.

    domingo, 7 de marzo de 2010

    La traducción del ARN

    El último paso en la expresión de la información genética es la elaboración de proteínas, las moléculas que realizan la práctica totalidad de las funciones celulares. La célula tiene miles de proteínas distintas, cada una de las cuales es capaz de llevar a cabo un proceso biológico (catálisis de una reacción química, reconocimiento de señales, transporte de sustancias...) gracias a que su estructura tridimensional se adapta a dicho proceso y, a su vez, esa adaptación entre estructura y función es posible porque la estructura de cada proteína está perfectamente establecida, de modo que cuando se elabora una nueva molécula de esa sustancia existe la seguridad de que va a ser idéntica a todas las demás moléculas de ese tipo que existen en la célula.

    Para que eso sea posible es necesario contar con dos elementos que garanticen el proceso: un sistema que almacene la información y la transmita de forma segura y fiable y otro que permita utilizar esa información, "leerla", para elaborar la proteína concreta. El primer sistema es la replicación del ADN. El segundo incluye, a su vez, dos pasos: la transcripción, que transfiere la información al ARN, y la traducción, que es el proceso concreto mediante el cual la célula utiliza la información contenida en el ARN mensajero para producir una proteína determinada.

    El proceso de traducción, que "concluye" la expresión genética, resulta de importancia vital para el funcionamiento de los organismos. Cada célula necesita tener, en cada momento, un subconjunto concreto de las proteínas que es teóricamente capaz de producir, en una cantidad concreta, ni más ni menos, y cada una de esas proteínas debe poseer la secuencia precisa de aminoácidos para ser funcional. Cualquier error en ese proceso supone consecuencias negativas para la célula; en el rango más bajo, que la proteína errónea no sirva para nada, con lo que la célula habrá desperdiciado recursos y energía en la elaboración de una molécula inútil. En el peor de los casos, el mal funcionamiento de una o unas pocas proteínas puede hacer que la célula en su conjunto trabaje de forma errónea, lo que puede llevarle al suicidio celular (la apoptosis es un proceso programado mediante el cual una célula que funciona de modo incorrecto se autodestruye) o a su transformación en una célula maligna, que puede ser el inicio de un tumor.

    Traducción e información
    La síntesis de una proteína determinada necesita, como ya se ha comentado muchas veces, información. A diferencia de lo que ocurre con los homopolímeros, cada monómero que se incorpora a la cadena puede ser diferente. El proceso también es diferente a lo que ocurre en la formación de heteropolímeros "regulares", como los heteropolisacáridos, en los que existe una pauta que se repite regularmente. En su lugar, en la síntesis de proteínas es necesario que se incorpore en cada posición un aminoácido concreto, sin que exista ningún patrón regular que determine cuál debe ser para conseguir que la proteína alcance su estructura primaria correcta, de la que dependerán el resto de los niveles estructurales y, finalmente, su función. Por ello, hace falta un "modelo" cuya información seguir. Este modelo es, precisamente, el ácido ribonucleico mensajero.

    La información que contiene el ARN mensajero está codificada en un lenguaje de cuatro símbolos, las cuatro bases que varían en él, mientras que cada proteína puede necesitar hasta veinte tipos distintos de aminoácidos para formarse. Los símbolos del ARN se agrupan de tres en tres formando "palabras", con lo que existen 64 combinaciones distintas, cada una de las cuales puede dar lugar a un único aminoácido. La relación que existe entre las diferentes "palabras" de ARN, más propiamente llamadas tripletes de bases o codones, y los aminoácidos a cuya incorporación en la proteína corresponden constituye el código genético.

    Resumiendo: la célula utiliza dos lenguajes diferentes para gestionar su información: uno, el de los ácidos nucleicos, posee cuatro símbolos distintos combinados para formar "palabras" de tres unidades cada una, por lo que cuenta con un total de 64 elementos diferentes. El nombre que recibe cada uno de esos elementos es distinto en función de en qué molécula se encuentren: se denominan codógenos cuando hablamos del ADN, codones si nos referimos al ARN mensajero y sus moléculas complementarias en el ARN transferente reciben el nombre de anticodones. El otro lenguaje es el de las proteínas, que utiliza veinte "palabras" unitarias, los aminoácidos. Existe, por último, una relación, una "tabla de equivalencias" entre las palabras de los dos idiomas, que recibe el nombre de código genético.

    La diferencia en el número de elementos entre los dos lenguajes no es demasiado grave; por una parte, tres de los codones no tienen "traducción" en el lenguaje de las proteínas, y reciben el nombre de codones "sin sentido", aunque en realidad juegan un papel fundamental: el de indicar que se ha alcanzado el final del mensaje, por lo que reciben también el nombre, mucho más apropiado, de "codones stop". Por otra parte, puede darse el caso de que varios codones "signifiquen" lo mismo en el lenguaje de las proteínas, por lo que se habla de "codones sinónimos". Hay que destacar que esto no "degrada" el mensaje, porque la información necesaria para llevar a cabo los procesos celulares es la que está codificada en las proteínas, y la existencia de codones sinónimos no supone ninguna ambigüedad. La existencia de codones sinónimos, es decir, de combinaciones diferentes de bases que dan lugar al mismo aminoácido, es una de las características del código genético. Para referirse a ella se suele decir que el código genético está degenerado.

    El código tiene otras características fundamentales para comprender el funcionamiento de la expresión genética. Tales características son las siguientes:
    • Es un código lineal, lo que significa que las "palabras" en lenguaje de ácidos nucleicos son leidas secuencialmente, y traducidas también secuencialmente al lenguaje de las proteínas. Esto establece una equivalencia "uno a uno": un codón es responsable de la inclusión de un aminoácido en la proteína en formación.
    • Es continuo, lo que significa que no hay "espacios" entre palabra y palabra: todas las bases nitrogenadas de un fragmento de ARN mensajero se utilizan en la síntesis de proteínas, de modo que no queda ninguna entre la última de un codón y la primera del siguiente.
    • Es universal (o casi): todos los seres vivos utilizan el mismo código genético. Esto es una muestra de la antigüedad y de la importancia del código. De su antigüedad, porque todos los seres vivos lo comparten, lo que significa que todos ellos proceden del mismo antepasado común que ya lo utilizaba. De su importancia, porque demuestra que las mutaciones que, a lo largo del proceso evolutivo, necesariamente ha tenido que sufrir, no han podido mantenerse en los organismos, debido a que sus efectos negativos lo impedían.
    En realidad, el análisis de la degeneración del código, y de pequeñas modificaciones del mismo que se dan en bacterias, mitocondrias y cloroplastos, ha llevado a formular una hipótesis acerca de su posible evolución. Se supone que, en un pasado muy remoto, debieron existir organismos que necesitaban un menor número de aminoácidos para producir sus proteínas, por lo que el código genético podría haber sido más sencillo, concretamente de dos bases por aminoácido. Sin embargo, el incremento de la complejidad de los organismos debió forzarles a incorporar un mayor número de aminoácidos por proteína, razón por la cual el código debió pasar de tener dos bases por aminoácido a tener tres bases por aminoácidos. Esto explicaría el hecho de que prácticamente todos los codones sinónimos compartan las dos primeras bases (las que habrían servido para uno de los aminoácidos en la primera fase de la evolución) y difieran en la tercera.

    El proceso de traducción

    Como todos los procesos bioquímicos, la traducción necesita un aparataje molecular, es decir, cada uno de los pasos que ocurren durante el proceso global de síntesis de una proteína suceden gracias a la intervención física de un grupo de moléculas. En este caso, como cabe esperar de un proceso tan complejo, el aparato molecular que interviene también lo es, e incluye los precursores de la proteína que se va a sintetizar (aminoácidos, nucleótidos trifosfato para proporcionar energía), un grupo amplio de proteínas y diferentes tipos de ácidos ribonucleicos, algunos de ellos integrados en un complejo macromolecular de gran tamaño que es el que desarrolla la síntesis: el ribosoma.

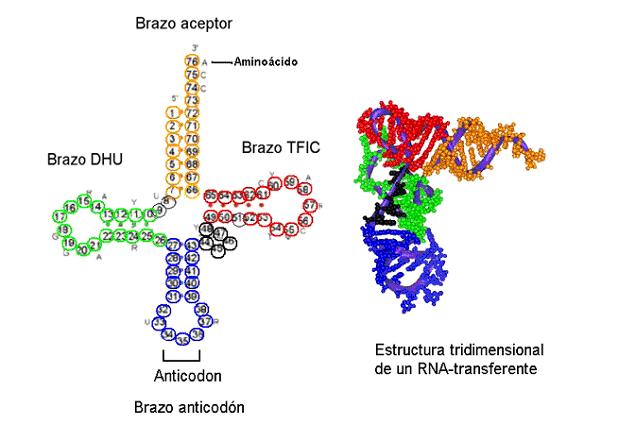
    En la síntesis de proteínas intervienen los tres tipos de ARN que se encuentran en la célula: el ARN mensajero es el que lleva la información genética a partir de la cual se copiará la proteína, el ARN ribosómico, unido a varias proteínas, constituye la "maquina" que lleva a cabo físicamente la síntesis, y el ARN transferente establece la relación entre la información del mensajero y el aminoácido que corresponde a cada codón.
    En la célula existen 61 tipos de ARNt, todos ellos con una estructura similar (aproximadamente en forma de "L") pero con secuencias de nucleótidos distintas. En particular, todos ellos se diferencian en uno de sus "lazos", zonas en las que no se da complementariedad de bases intramolecular. Ese lazo, llamado lazo anticodón, incluye tres nucleótidos que van a ser complementarios de los codones del ARN mensajero. En el extremo 3' del ARNt puede unirse un aminoácido, que será distinto según sea la secuencia del brazo anticodón.
    Para que los aminoácidos puedan incorporarse a la proteína deben estar unidos al ARN transferente que le corresponde. La unión se lleva a cabo por la acción de enzimas llamadas aminoacil-ARNt transferasas, que son específicas para el aminoácido y para el ARNt, y requiere energía que es proporcionada por el ATP.

    El proceso de traducción ocurre en el ribosoma, un complejo nucleoproteico formado por ARN ribosómico y proteínas. Estructuralmente, consta de dos subunidades que están separadas cuando el ribosoma está inactivo. Para que se inicie la síntesis de la proteína el ARN mensajero debe unirse a la subunidad pequeña, y una vez formado este complejo ambos elementos se unen a la subunidad grande.

    Cuando el ribosoma está ensamblado se forman en él tres "sitios", en los que se van a producir los diferentes procesos que permiten la formación de la proteína:
    • El Sitio P es el lugar por donde la proteína en formación permanece unida al ribosoma.
    • El Sitio A es la parte del ribosoma por donde se incorpora el nuevo aminoácido que se va a unir a la proteína.
    • El Sitio E es el lugar por donde el ARNt abandona el ribosoma una vez que ha liberado el aminoácido y que éste se ha unido a la cadena creciente.
    A medida que la proteína va creciendo, el ribosoma avanza a lo largo de la molécula de ARN mensajero. Es muy frecuente que cada molécula de ARN mensajero sea leida sucesivamente por varios ribosomas, de modo que se sintetizan casi simultáneamente varias copias de la misma proteína.
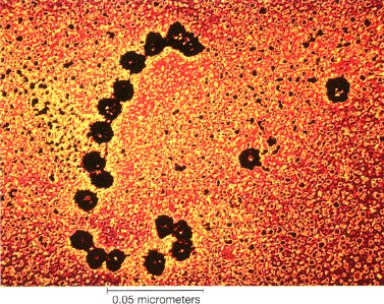
    El conjunto formado por un ARN mensajero y varios ribosomas que lo leen simultáneamente se denomina polirribosoma, y puede observarse con frecuencia en micrografías electrónicas. Esta es una estrategia que permite la obtención de una gran cantidad de una proteína antes de que el ARN mensajero sea degradado, lo que ocurre con mucha rapidez.

    Las fases de la traducción
    1. Iniciación: Incluye la unión entre el ARN mensajero y el ribosoma, la unión de las dos subunidades y la incorporación del primer aminoácido.
    2. Elongación: Consiste en la incorporación sucesiva de los aminoácidos.
    3. Terminación: Se produce cuando el ribosoma lee un codón de stop. En ese momento, la proteína formada abandona el ribosoma y sus subunidades se separan.
     Iniciación

     En procariotas en esta fase intervienen tres proteínas llamadas factores de iniciación (IF 1, 2 y 3) que deben unirse a los otros elementos para que el proceso tenga lugar. Antes de empezar la traducción las subunidades del ribosoma se encuentran separadas entre sí. El primer paso de la traducción es la unión de la subunidad pequeña (30S) del ribosoma con dos de los factores de iniciación, IF1 e IF3. Este grupo de moléculas se une al ARN mensajero en una secuencia específica, que se localiza antes (más cerca del extremo 5' de la molécula) del codón de iniciación.

    En los organismos procariotas el primer aminoácido que se introduce en la cadena es siempre la metionina, que corresponde al codón AUG (codón de iniciación), aunque cuando la proteína está terminada este aminoácido se elimina. La metionina, unida a su ARNt correspondiente, debe unirse al otro factor de iniciación (IF2) y las tres moléculas se asocian al complejo formado por los otros factores de iniciación, el ARNm y la subunidad pequeña del ribosoma.

    Finalmente, la subunidad grande se une a todas estas moléculas, dejando al ARNt+metionina en el sitio P del ribosoma recién formado, y forzando la salida de los factores de iniciación. La estructura formada, compuesta por el ribosoma, el ARN mensajero y el ARNt con la metionina en el sitio P recibe el nombre de complejo de iniciación.

    El desarrollo de este proceso requiere energía, que es aportada por la hidrólisis de GTP.
    Elongación

    La elongación es un proceso que se repite tantas veces como aminoácidos tenga la proteína (menos el de iniciación). Globalmente consiste en añadir un aminoácido a la cadena que se está formando, y dejar el ARNt junto con la cadena creciente en el sitio P del ribosoma, para permitir la entrada del siguiente aminoácido.

    El proceso se inicia con un ARNt unido químicamente a un aminoácido o a una cadena, y situado en el sitio P. El siguiente ARNt en incorporarse se acerca al sitio A, que está libre; si su brazo anticodón es complementario del codón situado frente al sitio A, y si lleva el aminoácido correspondiente en su extremo 3', el ARNt se queda fijado en el ribosoma. La cadena de aminoácidos del sitio P se libera de su ARNt y forma un enlace con el nuevo aminoácido, con lo que el ARNt "descargado" puede abandonar el ribosoma. Por último, el ribosoma en su conjunto avanza la distancia de un codón sobre el ARN mensajero, dejando en el sitio P al ARNt "cargado" con la cadena de proteína creciente.

    La energía consumida en este proceso es aportada, de nuevo, por el GTP.

    La elongación de la proteína ocurre desde el extremo N-terminal (primer aminoácido que se incorpora) hacia el C-terminal.

    Terminación

    El proceso de elongación se produce repetidamente hasta que el sitio A del ribosoma queda situado frente a un codón stop (UGA, UAG o UAA). La célula no posee ningún ARNt con un brazo anticodón complementario de estos codones, por lo que el sitio A queda vacío hasta que se une a él una proteína, el factor de liberación. El grupo carboxilo del último aminoácido reacciona con el agua, con lo que la proteína, ya completa, se separa del ARNt y abandona el ribosoma.

    Cuando la proteína abandona el ribosoma, éste se descompone en sus partes constituyentes, separándose sus subunidades, que pueden volver a ser utilizadas. El ARN mensajero, por su parte, es degradado y sus nucleótidos son reciclados en la elaboración de otras moléculas.
    Esta fase también obtiene la energía que necesita de la hidrólisis del GTP.

    Diferencias en la traducción entre procariotas y eucariotas

    El proceso de traducción es relativamente diferente en los eucariotas,  empezando por las características de las propias moléculas de ARN: en eucariotas, cada molécula de ARN mensajero codifica para una sola proteínas (son monocistrónicos), mientras que en procariotas es frecuente que una única molécula de ARNm lleve información correspondiente a varias proteínas (genes policistrónicos). También es diferente la estabilidad de la molécula, mayor en los eucariotas que en los procariotas.

    El primer aminoácido que se incorpora a la proteína también cambia entre procariotas y eucariotas: en los procariotas se incorpora inicialmente una molécula de metionina, pero está modificada químicamente (es, en realidad, formil-metionina), mientras que en eucariotas se incorpora como primer aminoácido una metionina no modificada.

    Por último, también son distintos los elementos que constituyen el complejo de iniciación, y hasta el orden en el que se forma dicho complejo.