Mostrando entradas con la etiqueta botánica. Mostrar todas las entradas

lunes, 24 de enero de 2011

La flor

El grupo taxonómico predominante entre las plantas terrestes es el de las Angiospermas, caracterizado por poseer auténticas flores. La flor es el órgano reproductor de este tipo de plantas; se especializa en la producción y protección de los gametofitos y de las semillas, pero también interviene activamente en otras fases del proceso reproductivo, entendido en sentido amplio: juega un importante papel en la polinización, gracias a la relación cooperativa que se ha desarrollado entre plantas e insectos, y su transformación en fruto mejora la eficacia de la distribución de las semillas, de nuevo gracias a la relación colaborativa con los animales, que aprovechan los nutrientes que almacena el fruto y, a cambio, alejan las semillas del lugar de origen de la planta madre.

Desde el punto de vista de la ontogenia, las flores se desarrollan a partir de los brotes de crecimiento situados en vástagos vegetativos (tallos o ramas). En general, la floración es estacional y requiere, además, un cierto grado de desarrollo vegetativo, de modo que la planta ha tenido que alcanzar un grado de "maduración" suficiente para que se produzca. El inicio de la floración se produce cuando se dan, simultáneamente, un conjunto de factores endógenos (mecanismos hormonales) y ambientales (condiciones determinadas de luz y temperatura).

 Cuando se inicia la floración el meristemo apical vegetativo se transforma en un meristemo reproductivo. A partir de él se van a formar varios verticilos (conjuntos de tres o más hojas) modificados en mayor o menor grado, cada uno de ellos en un nudo del vástago correspondiente, pero separados entre sí por entrenudos extremadamente cortos, hasta el punto de parecer contiguos los unos a los otros.

Estructura floral

La flor se une al tallo a través de un eje llamado pedicelo, que en su parte superior se ensancha para formar un receptáculo, en el que se insertan los verticilos florales. En los casos de mayor complejidad, la flor presenta cuatro verticilos. Dos de ellos son estériles, mientras que los otros dos producen gametos. De fuera a dentro, dichos verticilos son los siguientes:

  • El cáliz, formado por hojas apenas modificadas, que conservan su color verde, llamadas sépalos. Su función es básicamente protectora.
  • La corola, formada por pétalos. En este caso, la estructura sigue siendo plana, aunque la forma suele alejarse bastante de la típica de las hojas. Lo más significativo es que los pétalos pierden el color verde, adquiriendo otro distinto y característico de cada especie.
  • El androceo es el primero de los verticilos esporófilos (llamados así porque producen esporas, diferenciándose de las estructuras trofófilas, que se dedican a la nutrición de la planta). Se trata de la estructura que da lugar a los gametos masculinos. Los elementos que forman el androceo son los estambres, cuya estructura característica consiste en un filamento rematado por dos sacos unidos entre sí.
  • El gineceo es el verticilo productor de los gametos femeninos. Consta de uno o varios carpelos que pueden estar separados o unidos entre sí, en cuyo interior se encuentran los gametofitos femeninos. Los carpelos presentan, típicamente, una estructura en forma de jarrón, con la parte baja ensanchada y un cuello alargado.
Este plan general de la flor se puede ver considerablemente alterado, en función de las adaptaciones particulares de cada planta a su ambiente. Entre las modificaciones más frecuentes que se pueden encontrar tenemos las siguientes:
Flores que carecen de algún verticilo
  • Puede faltar algún verticilo floral. En particular, existen muchas plantas que poseen flores unisexuales, debido a que en ellas solo está presente uno de los dos verticilos esporófilos. También es habitual, en especial en las plantas cuya polinización tiene lugar con ayuda del aire, que estén ausentes la corola o los dos verticilos estériles (periantio)
Flor del género Calochortus, periantio formado por tépalos
  • En ocasiones, algunas flores no presentan pétalos y sépalos diferenciados, sino un único verticilo estéril formado por tépalos, que suelen tener un aspecto más parecido al de los pétalos (no suelen ser verdes).

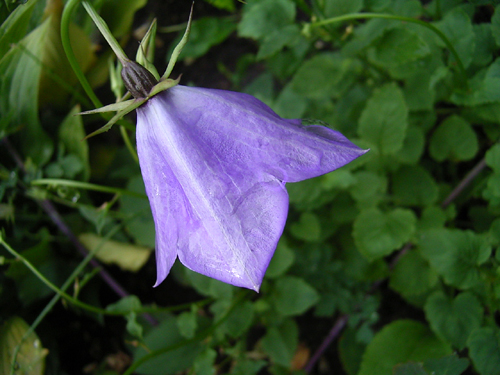
Campanula, flor con los pétalos soldados
  •  En muchos casos, los elementos de un mismo verticilo pueden estar fusionados entre sí. Este fenómeno se da muy habitualmente en el gineceo, de modo que muchas flores presentan un único carpelo. Sin embargo, también son frecuentes las flores que presentan sépalos o pétalos fusionados entre sí, formando estructuras tubiformes.

Flores con elevado número de elementos
  • Multiplicación del número de elementos de un verticilo. El número de piezas que forman cada verticilo floral es uno de los caracteres diagnósticos más importantes entre las plantas. En general, las monocotiledóneas tienen verticilos cuyo número de piezas es múltiplo de 3, mientras que las dicotiledóneas tienen verticilos cuyo número de elementos es múltiplo de 4 o de 5., siendo lo más frecuente que las flores tengan 3, 6, 4, 8, 5 ó 10 elementos por verticilo. Sin embargo, en algunos casos puede ocurrir que un verticilo floral tenga un elevado número de elementos. Esto es frecuente en las plantas más antiguas, pero también en otras más evolucionadas, como el género Rosa.
Flores irregulares (arriba Jengibre, abajo una orquídea)
  • Desarrollo de corolas irregulares. Si, en general, las flores suelen presentar simetría radial, algunos grupos han evolucionado hacia el desarrollo de flores muy irregulares, tendencia que llega a su extremo en las orquídeas, cuyas flores llegan a imitar de modo casi perfecto el aspecto de los insectos que las polinizan.

  • Formación de inflorescencias. Las inflorescencias son grupos de flores que se encuentran próximas entre sí y que se forman a partir de un mismo vástago. Cuando la planta posee inflorescencias, las flores se disponen siempre siguiendo un mismo esquema, la misma posición relativa, que es característica de cada grupo. En ocasiones, las inflorescencias se agrupan, a su vez, formando un nivel mayor de integración. Este es el caso del Edelweiss, cuya flor es una inflorescencia de inflorescencias, concretamente un capítulo de capítulos.

Tipos de inflorescencias
Las funciones de la flor

Una de las mayores dificultades que se encuentran las plantas en su adaptación al medio terrestre es el proceso de encuentro de sus gametos durante la reproducción sexual. Las briofitas y las pteridofitas (musgos y helechos) dependen de un medio acuoso para el encuentro de sus gametos, y la independización total no se consigue hasta la aparición de las espermafitas, es decir, hasta el desarrollo de la semilla característico de gimnospermas y angiospermas.
En ambos grupos de plantas, la adaptación al medio terrestre se logra reduciendo al máximo la generación haploide (los gametofitos masculino y femenino son totalmente dependientes del esporofito), manteniendo inmóvil sobre la planta madre el gameto femenino y proporcionándole una reserva nutricional para facilitar el desarrollo de la nueva planta, además de un mecanismo que controla el inicio de la germinación en función de las condiciones ambientales, mientras que el gametofito masculino se reduce a dos únicas células protegidas por una cubierta que impide su desecación (grano de polen).

En todo caso, este conjunto de adaptaciones deja pendiente el problema del encuentro entre los gametos. Los animales lo resuelven mediante la aproximación de los individuos que van a reproducirse, estrategia (la movilidad de los individuos) que no se ha desarrollado en las plantas. En cambio, la evolución de las plantas terrestres ha permitido el desarrollo de sistemas de dispersión del polen que maximizan la posibilidad de que éste alcance los óvulos de otra planta de la misma especie. La flor es un elemento absolutamente fundamental tanto en el desarrollo de la semilla como en la dispersión y encuentro de los gametos.

Flores y polinización

Las dos estrategias más habituales para la dispersión de los gametos masculinos y la optimización de su probabilidad de encuentro con los femeninos son la anemofilia (polinización con la ayuda del viento) y la entomofilia (polinización con ayuda de los insectos), además de otras adaptaciones menos frecuentes como la hidrofilia (polinización con ayuda del agua, que se da en algunas plantas acuáticas) o con ayuda de otros animales (aves, murciélagos). Las diferentes estrategias de dispersión se traducen en conjuntos de características que se presentan en los respectivos tipos de flores, conjuntos de características que reciben el nombre de síndromes florales.

La anemofilia fue, sin ninguna duda, la estrategia de polinización más primitiva de las plantas con flores. Se basa en la producción de una gran cantidad de gametos masculinos que son dispersados al azar por el viento. La baja probabilidad de que uno de estos gametos alcance un óvulo apropiado se compensa, en cierta medida, con el bajo coste energético que supone la producción de un número muy elevado de granos de polen.
Las flores que son polinizadas por el viento presentan, en mayor o menor grado, el "síndrome de anemofilia": se trata, en general, de flores poco vistosas, en las que en muchos casos ha desaparecido el periantio (cáliz y corola). Normalmente suelen aparecer muy pronto, antes del desarrollo de las hojas, lo que facilita la dispersión del polen. También es habitual que las flores masculinas y femeninas estén separadas, con las masculinas agrupadas en inflorescencias péndulas (colgantes), que pueden ser fácilmente agitadas por el viento. Las flores masculinas (o al menos los estambres) son muy numerosas y producen polen en grandes cantidades. Las flores femeninas, por su parte, suelen poseer estilos y estigmas alargados, con estructuras que facilitan la captura del polen. Éste, por último, suele ser de pequeño tamaño, liso (evitando que los granos se agrueguen entre sí) y seco.

Flor con marcas ultravioleta (derecha) que atraen insectos
La entomofilia se desarrolla como resultado de la coevolución entre las angiospermas y los insectos, dos grupos biológicos que aparecieron de forma prácticamente simultánea. Frente a la estrategia anemófila, la entomofilia se caracteriza porque los granos de polen son transportados de forma directa entre una planta y otra de la misma especie, lo que garantiza el encuentro entre los gametos. Esto permite que la planta pueda producir un número más bajo de granos de polen. A cambio, es necesario desarrollar mecanismos que atraigan a los insectos polinizadores hacia la flor. Esto incluye colores llamativos y/o la presencia de marcas ultravioletas que los insectos son capaces de percibir y formas que recuerdan a insectos de la misma especie y de sexo opuesto, con lo que se ofrece a los polinizadores el estímulo de la cópula.

Sin embargo, el mayor atractivo para que los insectos acudan a las flores es la presencia en ellos de nectarios, estructuras productoras de un jugo azucarado muy concentrado (el néctar) que supone la principal fuente de alimento de estos organismos.

Existen, por último, flores adaptadas a la polinización por otros animales como los murciélagos (quiropterofilia: flores alejadas de las hojas, color blanco o crema, gran producción nocturna de néctar con olor a fermentación y anteras largas) o algunos pájaros (ornitofilia: flores de color de la gama del rojo, tubulares, sin guías ultravioletas, que producen grandes cantidades de néctar poco concentrado en el que predomina la sacarosa).
La formación de semillas

Estructura del estambre
Los gametofitos masculino y femenino de las angiospermas se desarrollan en el interior de los verticilos fértiles de la flor. En los estambres, las células madre de las microsporas sufren meiosis y dan lugar a las esporas haploides, que se desarrollan sin abandonar la propia antera para formar el gametofito masculino, reducido al grano de polen. Éste consta de dos cubiertas (exina e intina, ésta celulósica) con diseños y aperturas características, y en su interior dos núcleos procedentes de una mitosis de la microspora: el núcleo vegetativo y el generativo que, a su vez, volverá a dividirse durante la fecundación.

El gametofito femenino se desarrolla dentro del carpelo. Se denomina carpelo al conjunto de elementos florales femeninos. Incluye el ovario, que es la parte fértil en la que se desarrollan los óvulos, el estigma, región receptora del polen, y el estilo, zona alargada que debe ser recorrida por el polen para alcanzar el óvulo. Dentro del ovario, la macrospora se desarrolla a partir de un tejido llamado nucela. Las células madres de las macrosporas sufren una meiosis, dando lugar a cuatro células haploides tres de las cuales degeneran. La cuarta forma el saco embrionario como resultado de tres mitosis consecutivas. El saco embrionario consta de ocho núcleos, pero solo de siete células ya que la célula central, de tamaño mucho mayor que las otras, posee dos núcleos (núcleos polares). El resto de las células se dispone en los dos polos del saco embrionario, agrupadas de tres en tres: en uno de los polos se sitúa el óvulo, flanqueado por dos células llamadas sinérgidas. Las tres células del otro polo reciben el nombre de antípodas.
El óvulo y las sinérgidas se sitúan junto al micrópilo, una abertura en las cubiertas que rodean al saco embrionario a través de la cual llega el tubo polínico y se produce la fecundación.


Origen y evolución de la flor

La aparición de la flor tuvo lugar durante el Mesozoico, en un grupo de plantas emparentado con los modernos nenúfares. Los elementos de la flor evolucionaron a partir de hojas, mediante procesos de diferenciación y de plegamiento sobre sí mismas que dieron lugar a las estructuras más modificadas (estambres y carpelos), aunque aún pueden verse estructuras con aspectos bastante primitivos, como en las flores de las Magnólidas.

El ancestro común de todas las plantas con flores debió tener un eje floral alargado, con las piezas florales dispuestas en espiral, como aún ocurre en las magnolias. Cada verticilo debió poseer un elevado número de piezas grandes y más parecidas a las hojas que sus homólogas en las flores modernas. Los estambres, en lugar de tener aspecto filamentoso, debieron presentar un aspecto laminar, como el de algunas ninfáceas. Seguramente el ovario estaba insertado por encima del resto de las partes de la flor (súpero), y la flor sería polinizada por escarabajos, de modo que tendría que producir polen y néctar en grandes cantidades, para satisfacer a estos animales.

    lunes, 17 de enero de 2011

    La semilla y su germinación

    El concepto de espermatofitas, sin categoría taxonómica, incluye dos grandes grupos de plantas (gimnospermas y angiospermas) que normalmente son consideradas como "plantas superiores" y que tienen en común la presencia de semillas, una estructura relacionada con la reproducción que les permite proteger y nutrir al embrión, con lo que se consigue la independencia casi total del medio acuático. La semilla sustituye ventajosamente a las esporas como medio de dispersión, además, porque contiene una importante reserva de nutrientes que el esporofito embrionario puede utilizar para acelerar su desarrollo hasta alcanzar el momento en que es capaz de autoabastecerse.
    La semilla es, básicamente, una estructura que incluye el esporofito desarrollado hasta el grado de embrión pluricelular, envuelto en tejidos protectores y nutricios. Las primeras plantas que presentaron estructuras relacionadas con la semilla fueron las progimnospermas, que aparecieron en el Devónico tardío. En el desarrollo de esta estructura confluyen tres tendencias evolutivas que se habían manifestado en las plantas terrestres:
    1. La transición desde la homosporia hacia la heterosporia, es decir, la diferenciación entre las esporas masculinas, que reducen su tamaño y se hacen móviles, y las femeninas, que aumentan su tamaño, acumulando sustancias de reserva, y se hacen inmóviles.
    2. La evolución del tegumento, un tejido procedente de la planta madre que protege el óvulo, dando lugar a la cubierta de la semilla.
    3. La evolución de estructuras que reciben el polen, lo que permite la independización del proceso de polinización y fecundación.
    Las gimnospermas presentan semillas desnudas, característica a la que hace referencia el nombre del grupo. Esto significa que ni el óvulo ni la semilla están totalmente rodeados por una estructura específica de la planta madre, lo que sí ocurre en las angiospermas. El gametofito femenino (haploide) se desarrolla en el interior de la nucela (diploide). Finalmente, una vez fecundado el ovocito, la semilla consta del embrión, resultado de la fecundación, que dará origen a la nueva planta (esporofito, 2n), nucela o endospermo (n), procedente del gametofito, y tegumento, que es la cubierta protectora de la semilla, procedente de la planta madre (2n).

    Semillas de gimnospermas: pino (izquierda) y cicas (derecha)
    Las dos diferencias fundamentales entre las semillas de gimnospermas y la de las angiospermas son, en primer lugar, que la semilla de las angiospermas se encuentra totalmente rodeada por las estructuras de la planta madre (los carpelos), lo que da nombre al grupo (angiosperma significa "de semilla cubierta"), y en segundo lugar, la naturaleza del endospermo, que en este grupo no se desarrolla directamente desde el gametofito, sino que es el resultado de la segunda fecundación: los núcleos polares del saco embrionario se fusionan entre sí y con el  segundo núcleo espermático del grano de polen para dar lugar a un tejido triploide (3n).
    Estructura de la semilla de las angiospermas
      Dentro de la semilla, el embrión se desarrolla hasta formar prácticamente una planta en miniatura, en la que se distinguen la radícula, que formará la raíz de la planta, el hipocótilo, que dará lugar al tallo, los cotiledones, que son las primeras hojas de la planta, y la plúmula o gémula, que es la yema de crecimiento a partir de la cual se producirá el crecimiento de la planta.
      Este modelo de organización es mucho más complejo en las Gramíneas, en las que el embrión tiene varios órganos diferenciados, y el cotiledón se ha transformado en un órgano absorbente adherido al endospermo.
      El número de cotiledones de la semilla es un carácter diagnóstico fundamental, ya que distingue, dentro de las angiospermas, entre dos grandes grupos: las dicotiledóneas presentan dos cotiledones en su semilla, mientras que las monocotiledóneas solo presentan un cotiledón. En cuanto a las gimnospermas, presentan en general varios cotiledones en la semilla, desde dos hasta unos ocho, como en el pino.

      Los tejidos embrionarios son meristemáticos, pero presentan ya características diferenciadas: la capa exterior (protodermis o dermatógeno) dará lugar a la epidermis. Bajo ella se encuentra un meristemo fundamental que dará lugar a la futura corteza, y en la zona más profunda, finalmente, el procámbium, a partir del cual se formarán los tejidos conductores.

      Sustancias de reserva en la semilla

      Las sustancias de reserva de las que se alimentará el embrión durante su desarrollo no siempre se acumulan en el endospermo. En gimnospermas, no hay endospermo verdadero, porque no se forma como resultado de una doble fecundación. La parte de la semilla que almacena las reservas se llama endospermo primario, y acumula grasas, aceites y proteínas. Las orquídeas carecen por completo de sustancias de reserva. En su lugar, los tegumentos de la semilla son verdes y pueden realizar la fotosíntesis. En el resto de las angiospermas las sustancias de reserva pueden acumularse en el endospermo, en el perispermo (derivado de la planta madre) o en los cotiledones, situación frecuente en las dicotiledóneas.

      Las sustancias que sirven de nutrientes al embrión son:
      • Almidón: es la sustancia más abundante. Se acumula en gránulos dentro de plastos incoloros (amiloplastos).
      • Proteínas: en algunos casos se depositan formando una capa que rodea al endospermo propiamente dicho, llamada capa de aleurona o gluten. La presencia de estas proteínas es lo que diferencia los cereales panificables (con capa de aleurona) de los que no lo son. Por otra parte, el gluten es un potente alergeno que puede provocar importantes intolerancias alimenticias.
      • Grasas y aceites: en general, se acumulan en los cotiledones de las semillas oleaginosas.
      • Hemicelulosas: se acumulan en las paredes celulares de las células del endospermo, lo que las hace extremadamente gruesas y resistentes.
      Germinación

      Una de las características adaptativas de las semillas es su capacidad de permanecer durante cierto tiempo en un estado de "dormición", es decir, de permanecer en un estado fisiológicamente pasivo hasta el momento en el que se dan las condiciones apropiadas para que se produzca el desarrollo de la planta. El  conjunto de procesos metabólicos y fisiológicos que conducen a la activación de la semilla y al inicio del crecimiento de la planta se denomina germinación.
      Las semillas pueden mantenerse en estado de dormición durante un periodo variable de tiempo. Las semillas microbiónticas solo pueden sobrevivir algunos días, hasta meses, mientras que las macrobiónticas pueden llegar a ser viables incluso varios centenares de años (la mayor longevidad registrada corresponde a semillas de hace unos 400 años; la germinación de semillas encontradas en las pirámides es solo una leyenda). Sin embargo, las semillas más comunes (mesobiónticas) pueden mantenerse viables entre 3 y 15 años.
      Germinación hipogea
      La salida de dormición, es decir, el inicio de la germinación, se produce como resultado de la acción de diferentes factores: la escasez de oxígeno, la alternancia entre temperaturas diurnas altas y nocturnas bajas, el aumento en la duración de los días y, sobre todo, la presencia de agua en el medio, son factores que activan la germinación.

      Cuando la semilla se encuentra en presencia de agua, ésta atraviesa las cubiertas protectoras gracias a la diferencia de concentración entre el interior y el exterior de la semilla, fenómeno denominado imbibición. Gracias a la entrada de agua, la semilla sufre una serie de modificaciones internas que permiten su desarrollo: dispersión de los coloides celulares, rehidratación de las reservas y activación de las enzimas necesarias para la germinación. Como resultado, se activan varias rutas metabólicas que permiten al embrión producir energía (glucolisis) y movilizar las reservas acumuladas en la semilla: los polisacáridos se transforman en monosacáridos, las proteínas en aminoácidos disponibles para la síntesis de nuevas proteínas y los lípidos son degradados para producir energía, lo que permite el rápido desarrollo de la plántula.
      Germinación epígea

      La germinación puede producirse de dos modos diferentes. En la germinación hipogea los cotiledones, es decir, las primeras hojas de la plántula, permanecen bajo tierra, desarrollándose primero la radícula, mientras que en la germinación epigea son los cotiledones la primera parte de la planta en desarrollarse, hasta asomar por encima del nivel del suelo, produciéndose más adelante el crecimiento de la radícula.

      El crecimiento primario de la planta es el que se debe al desarrollo de los meristemos apicales. Tras la germinación, el meristemo apical del vástago (en el hipocótilo) da lugar a las hojas, nudos y entrenudos de la planta. Los meristemos axilares de las hojas pueden formar vástagos axilares (ramas) que, a su vez, dan lugar a otros vástagos axilares, aunque hay plantas en las que la ramificación no se produce, debido a la inactividad de estos tejidos.
      En muchas plantas la raíz principal, formada a partir del meristemo radicular, se ramifica para formar raíces secundarias que también pueden ramificarse, aunque en otros casos (monocotiledóneas) el sistema radicular de la planta se desarrolla a partir de raíces adventicias formadas por el tallo.
      Cuando se dan condiciones adecuadas (endógenas y ambientales) el meristemo apical de los vástagos se transforma en un meristemo reproductivo, que da lugar a la formación de los órganos reproductores que, en el caso de las angiospermas, son las flores.

      Las gimnospermas y la mayoría de las dicotiledóneas poseen, además, un crecimiento secundario que  se produce gracias a la actividad de tejidos meristemáticos no situados en el ápice de crecimiento: el cambium es el meristemo que permite a las plantas añadir tejidos conductores, lo que hace que aumente el espesor del tallo, y el felógeno permite la sustitución de la epidermis por un nuevo tejido protector: la peridermis.

      viernes, 7 de enero de 2011

      Ciclos de vida II: las plantas con semilla

      El término espermafitas, carente de valor sistemático, se utiliza con frecuencia para incluir a las Gimnospermas (coníferas, etc.) y a las Angiospermas, es decir, a los dos grupos vegetales que realmente han conseguido adaptarse completamente al medio terrestre, al independizar su reproducción del medio acuático. Este proceso se dio gracias a la aparición de una importante innovación evolutiva, la semilla, estructura que da nombre al grupo.

      Respecto a su ciclo de vida, todas las espermafitas se caracterizan, al igual que las pteridofitas, por presentar una fase diploide (espermafito) bien desarrollada y de vida larga, frente a una fase haploide (gametofito) muy reducida. En este grupo la reducción del gametofito se lleva al límite, hasta el punto de queel gametofito femenino no vive como generación independiente, sino que se mantiene dentro de la planta diploide, mientras que el gametofito masculino está reducido a unas pocas células (grano de polen). De esta forma, las plantas terrestres consiguieron esquivar uno de los principales problemas para la adaptación al medio terrestre: la necesidad de que el gameto masculino sea una estructura desnuda, para favorecer la fecundación.

      Los órganos del esporofito donde se producen las esporas reciben el nombre de esporangios. Cuando los esporangios masculinos y femeninos son diferentes se dice que la planta es heterospórica. En el caso de las plantas con semilla, el esporangio masculino es de pequeño tamaño (microsporangio) y se abre (es dehiscente), mientras que el esporangio femenino es de tamaño grande (macrosporangio) y no se abre (es indehiscente).
      El gametofito masculino está reducido al grano de polen. Éste consta de una pared engrosada en cuyo interior aparecen dos núcleos que comparten un mismo citoplasma. El núcleo vegetativo dará lugar a la formación del tubo polínico, mientras que el núcleo germinativo sufrirá, en las Angiospermas, una mitosis para dar lugar a dos gametos masculinos, que intervendrán en un proceso de doble fecundación. Por su parte, el gametofito femenino está formado por un total de siete células: el óvulo, rodeado por dos células llamadas sinérgidas, en un extremo de la estructura, otras tres células en el extremo opuesto, llamadas antípodas, y dos núcleos polares, que forman una gran célula central. Estos dos núcleos se fusionan entre sí para dar lugar a un único núcleo diploide denominado núcleo secundario.
      El gametofito femenino permanece siempre dentro del megasporangio (es decir, del ovario), mientras que el gametofito masculino, el grano de polen, es dispersado mediante el viento, los insectos o, en otros casos, el agua. Dado que el grano de polen está protegido por un par de cubiertas gruesas, que lo hacen impermeable, la reproducción de las espermafitas es totalmente independiente del agua, ya que no poseen una fase de espora libre, sin cubierta, que deba moverse en un medio hídrico.
      Una vez que el polen alcanza el ovario de otra planta una de sus células, la célula del tubo polínico, crece a lo largo del estilo hasta alcanzar el saco embrionario. Al alcanzarlo, el núcleo de esta célula degenera y muere, pero deja un camino abierto para que ocurra la fecundación.
      En las gimnospermas este proceso consiste, simplemente, en que el núcleo espermático (único) del grano de polen se une al núcleo del óvulo, mientras que la célula polar del saco embrionario prolifera para originar una capa celular haploide, el endospermo, de la que se nutrirá el embrión durante su desarrollo.
      En cambio, en las Angiospermas el proceso es levemente distinto: el núcleo espermático del grano de polen se divide mediante mitosis. Uno de los resultados de esta mitosis fecunda al óvulo, dando lugar a un cigoto diploide, mientras que el otro se une a los dos núcleos polares, de modo que el endospermo es, en este caso, triploide.
      El saco embrionario fecundado se transforma en semilla, constituyendo el primer estadio de la vida del esporofito. La semilla puede permanecer en estado latente durante un tiempo prácticamente indefinido, hasta que se den las condiciones apropiadas para germinar. Los nutrientes necesarios para este proceso están almacenados en el endospermo.
      Cuando la planta alcanza la madurez se forman los órganos reproductivos, los conos en el caso de las Gimnospermas y las flores en las Angiospermas. En estas estructuras se desarrollan los microsporangios (estambres) y los macrosporangios (ovario), donde ocurre la meiosis que da lugar a la formación directa de los gametofitos.

      lunes, 3 de enero de 2011

      Reproducción sexual y ciclos de vida I: briofitos y pteridofitos

      Evolutivamente, la aparición de la reproducción sexual en sentido estricto está ligada a la adquisición del carácter eucariota: aunque existen procesos que permiten el intercambio de material genético entre bacterias (por ejemplo la conjugación) no se pueden considerar propiamente procesos sexuales, ya que faltan los elementos característicos de este tipo de reproducción: la unión de dos dotaciones genéticas distintas o singamia, que se produce durante la fecundación, y la meiosis que restaura el número haploide de cromosomas.

      Con la aparición de la sexualidad surge también la alternancia de fases nucleares; el concepto de fases nucleares se refiere a los tipos de núcleos que aparecen en los organismos de una especie determinada: puede darse una fase haploide, cuando el núcleo tiene una única copia de cada cromosoma, y una fase diploide. La sexualidad implica, necesariamente, que ambas fases nucleares se alternen en el mismo individuo.

      Sin embargo, el tiempo que cada organismo pasa en su fase haploide o en su fase diploide puede ser muy variable. En protistas y hongos, por ejemplo, es característico el predominio de la fase haploide; los individuos presentan n cromosomas a lo largo de la práctica totalidad de su vida, y se reproducen sexualmente mediante esporas haploides, generadas por mitosis, que se unen entre sí (singamia) formando un cigoto que inmediatamente sufre meiosis para volver a producir un organismo haploide. Se dice entonces que el ciclo de vida de estos organismos es haplonte. En los animales, por el contrario, la situación es la inversa: el organismo pasa la práctica totalidad de su vida en su fase diploide, y para reproducirse sexualmente algunas de sus células sufren un proceso de meiosis, que da lugar a gametos haploides. Éstos se unen casi inmediatamente, para volver a formar un cigoto diploide a partir del cual se produce el individuo adulto. Este es un ciclo de vida diplonte.
      Puede existir también una situación intermedia: tanto los individuos haploides como los diploides pueden tener una vida prolongada, formando ambos estructuras complejas. En muchos casos, además, las dos formas (haploide y diploide) son morfológicamente diferentes. En estos ciclos de vida, denominados haplodiplontes, los dos tipos de organismos pueden reproducirse asexualmente, dando lugar a otros individuos con el mismo número de cromosomas que ellos, pero también pueden reproducirse sexualmente:
      • Los individuos haploides producen, mediante mitosis, esporas haploides que actúan como gametos, fusionándose entre sí y dando lugar a organismos diploides.
      • Los individuos diploides, al cabo de su desarrollo, sufren meiosis en algunas de sus células, produciendo gametos, cada uno de los cuales se desarrolla de forma asexual para formar individuos haploides adultos.
      En el caso de las plantas, es posible encontrar ciclos de vida de los tres tipos: haplontes, haplodiplontes y diplontes. Además, es posible identificar una tendencia evolutiva permanente que va desde los ciclos de vida haplontes o haplodiplontes característicos de los grupos más antiguos a los ciclos diplontes, típicos de las plantas más modernas.

      En las plantas, las dos fases nucleares reciben nombres diferentes: las formas haploides, desarrolladas a partir de los gametos, se denominan gametofitos, mientras que las formas diploides se denominan esporofitos.

      Para comprender la variedad de ciclos de vida que se produce en las plantas es conveniente analizarlos desde el punto de vista evolutivo, y teniendo en cuenta las condiciones ambientales que determinaron el curso de dicha evolución.

      La constante evolutiva en la evolución de las plantas terrestres ha sido la necesidad de adaptarse a un entorno con muy poca humedad. Esta condición ha sido determinante, porque las esporas necesitan más agua que las semillas para propagarse, de modo que con el paso del tiempo se ha producido una tendencia hacia la reducción del gametofito, hasta el punto de que en las angiospermas actuales éste se reduce a un grupo de células que solo pueden vivir como parásitas del esporofito.

      Los primeros tipos vegetales desarrollaron ciclos de vida en los que únicamente el cigoto era diploide, produciéndose la meiosis inmediatamente después de la fecundación. A partir de ese momento, han predominado dos tendencias evolutivas: el alargamiento de la generación diploide y la diferenciación de las formas haploides y diploides.

      Las briófitas son un grupo de plantas que, aunque son parecidas entre sí, no tienen un origen filogenético común, sino que agrupan a tres clases de plantas de origen diferente: Antoceros (Anthocerophyta), Hepáticas (Hepatophyta) y Musgos (Bryophyta). Los tres grupos ocupan hábitats muy ligados al agua, de la que dependen tanto para su reproducción como para su propagación. Su ciclo de vida es heteromorfo, es decir, el gametofito y el esporofito se diferencian claramente entre sí, predominando la fase haploide (gametofito) sobre la diploide, hasta el punto de que ésta, aunque es capaz de realizar la fotosíntesis, no produce suficientes nutrientes como para automantenerse, y vive dependiendo del gametofito.


      Los gametofitos de este grupo son las formas habitualmente visibles. Tienen una estructura típica, con estructuras de fijación al sustrato (rizoides), un eje que hace las veces de tallo (cauloide o caulidio) y hojas o filidios. Se trata de organismos dioicos, es decir, las plantas femeninas y masculinas están separadas entre sí. Los órganos reproductores se encuentran en el ápice de la planta, y se denominan anteridios (masculinos) y arquegonios (femeninos).
      Los anteridios producen gametos masculinos biflagelados. La fecundación ocurre en el interior del arquegonio. Para alcanzarlo, los espermatozoides necesitan nadar en una película de agua, lo que hace que los briófitos estén limitados a medios muy húmedos.
      Tras la fecundación se forma el esporofito, que crece sobre el mismo gametofito femenino. En el caso más complejo, los esporofitos poseen un pie alargado (seta) y una cápsula, en cuyo interior ocurre la meiosis, que da como resultado la formación de esporas haploides.
      La germinación de las meiosporas produce el desarrollo de nuevos gametofitos masculinos o femeninos, con lo que se cierra el ciclo vital.

      Los pteridofitos, grupo en el que se encuadran, como plantas más representativas, los helechos, no son en realidad un grupo monofilético. En el Devónico Inferior las plantas vasculares primitivas se diferenciaron en dos grupos: por una parte, un grupo de pteridófitos caracterizados, entre otras cosas, por poseer micrófilos que fueron el grupo vegetal predominante durante el Carbonífero (licopodios, isoetes y selaginelas) y por otra parte el grupo que dio origen al resto de las plantas terrestres: equisetos, helechos, gimnospermas y angiospermas. El primero de estos grupos es casi relíctico en el presente, ya que representa menos del 1% de las plantas terrestres actuales.

      En cuanto a su ciclo de vida, los pteridófitos se caracterizan por tener dos generaciones distintas entre sí, con predominio del esporofito aunque en este caso ambos tipos de plantas son capaces de vivir independientemente. Sin embargo, el gametofito necesita vivir en un medio muy húmedo, tanto porque se trata de una estructura sencilla, sin raíces ni tejidos conductores diferenciados, como porque los espermatozoides que produce son flagelados, y necesitan la presencia de agua para diseminarse.
      El gametofito  (prótalo) posee órganos masculinos (anteridios) que producen espermatozoides flagelados y arquegonios, que dan lugar a los óvulos. Los espermatozoides se dispersan a través del agua, hasta alcanzar los arquegonios. La fecundación da lugar al embrión diploide, que crece hasta formar el esporofito, que es la planta más conspicua y que presenta estructuras radiculares, tallo, hojas y tejidos conductores.
      En la parte inferior de los frondes se desarrollan unas estructuras llamadas soros, que contienen los gametangios. En ellas se produce la meiosis, que da lugar a la formación de esporas haploides, que se pueden diseminar por vía aérea. La germinación de estas esporas da lugar a la formación de un nuevo gametofito.

      martes, 21 de diciembre de 2010

      Reproducción asexual y sexual en vegetales

      La función de reproducción de los seres vivos permite el mantenimiento, a lo largo del tiempo, de sus características genéticas individuales. En un entorno cambiante, la permanencia de esas características no supone solo la repetición de esas características, sino que es preciso que los organismos consigan adaptarse a las condiciones de su ambiente. La consecuencia de ambas exigencias es que los procesos reproductivos tienen, por una parte, que mantener las características básicas del organismo, y por otra tienen que permitir una cierta variabilidad que permita que los individuos se adapten a su ambiente.

      Evolutivamente, los seres vivos han encontrado dos soluciones diferentes para afrontar ese problema. La reproducción asexual, basada en procesos de división celular mediante mitosis, garantiza la repetición exacta de las características genéticas de un individuo, mientras que la reproducción sexual, que tiene lugar mediante los mecanismos de meiosis y fecundación, permite generar variabilidad genética y, por lo tanto, el surgimiento de individuos con características, o combinaciones de características, mejor adaptadas a un entorno distinto.

      Ambos mecanismos reproductivos tienen ventajas e inconvenientes. La reproducción asexual es ventajosa cuando los entornos son estables y los organismos están bien adaptados, porque garantiza que los descendientes de esos individuos van a seguir adaptados a ese ambiente. En esas condiciones, la reproducción sexual puede dar lugar a organismos menos adaptados que sus predecesores.  También permite el desarrollo rápido de gran número de individuos. En cambio, cuando los ambientes son variables, predominan las ventajas de la reproducción sexual. Una consecuencia negativa, a largo plazo, de la reproducción asexual es el denominado "trinquete de Muller": como la mayor parte de las mutaciones que se producen en los organismos son perjudiciales, y como la reproducción asexual transmite necesariamente dichas mutaciones, una población que se reproduzca exclusivamente de modo asexual irá acumulando mutaciones negativas y, por lo tanto, verá reducida su eficacia biológica conforme va pasando el tiempo.

      Prácticamente todos los seres vivos han desarrollado algún tipo de sexualidad que les permita afrontar cambios ambientales, circunstancia que ha sido la norma a lo largo de la historia de la vida sobre la Tierra. Sin embargo, algunos grupos biológicos han mantenido también, en ocasiones como sistema preferente (bacterias, hongos), mecanismos de reproducción asexual, que les permiten mantener cierta estabilidad en circunstancias poco variables. En el caso de las plantas, todas poseen mecanismos de reproducción sexual, pero también prácticamente todas conservan algún sistema de reproducción asexual, que pueden variar de unos grupos de plantas a otros.

       Los rizomas son tallos subterráneos de crecimiento horizontal, que emiten raíces y brotes herbáceos desde sus nudos. Los rizomas pueden crecer indefinidamente, generando periódicamente nuevos brotes. Son habituales en plantas de perennes de climas fríos, que pierden las partes aéreas y conservan solo la parte subterránea, que almacena nutrientes para la siguiente temporada benigna. Los rizomas se utilizan en agricultura como mecanismo de propagación vegetativa, para lo cual es necesario utilizar un trozo de rizoma que contenga, como mínimo, un brote.

      Los tubérculos son tallos subterráneos modificados y engrosados (de hecho, están relacionados con los rizomas), que acumulan nutrientes de reserva de la planta. El crecimiento del tubérculo se produce a partir de una única yema central, de forma circular y plana. Muchas plantas con tubérculos son utilizadas como alimento, gracias a la considerable cantidad de nutrientes que acumulan.

      Los estolones son tallos rastreros, pero superficiales, sin apenas hojas. Los nudos pueden desarrollar raíces adventicias y tallos verticales, a partir de los cuales crecen nuevas plantas. Las fresas son un ejemplo de plantas con estolones.

      Los bulbos son también engrosamientos subterráneos del tallo, en este caso rodeados de hojas carnosas. La estructura del bulbo incluye yemas a partir de las cuales puede desarrollarse una nueva planta. Los bulbos también son utilizados frecuentemente como alimento, por ejemplo en el caso de cebollas y ajos.

      Los cormos apenas se distinguen de los bulbos. La diferencia fundamental es el modo en que se almacenan los nutrientes en unos y otros: mientras en los bulbos se acumulan en las hojas escamosas, en los cormos se almacenan en la placa basal, que se encuentra agrandada.

      Existen otros mecanismos de propagación vegetativa, como los propágalos, estructuras aproximadamente esféricas que se propagan gracias a la acción del viento y del agua, y que se presentan en musgos y hepáticas, o las más extrañas plántulas que se desarrollan en el margen de las hojas de las plantas del género Kalanchoe.

      lunes, 20 de diciembre de 2010

      Crecimiento y desarrollo vegetal I: Meristemos y Cambium

      A medida que las células de la planta se van diferenciando van perdiendo capacidad de reproducción. El crecimiento y la división celular son funciones que, en condiciones normales, son realizadas por un tipo particular de tejidos vegetales que reciben el nombre de meristemos.
      Célula meristemática

      Las células meristemáticas están poco diferenciadas, y presentan características que las distinguen de las demás. Son células pequeñas, isodiamétricas, y que presentan solo una pared primaria delgada. Su citoplasma posee abundantes proplastidios (plastos aún no desarrollados) y vacuolas pequeñas y abundantes. No se observan inclusiones citoplasmáticas. El retículo endoplásmico está poco desarrollado, mientras que poseen un gran número de ribosomas y un aparato de Golgi grande, ya que en las células vegetales este orgánulo está relacionado con la síntesis de la pared vegetal. El núcleo es grande, se encuentra en posición central, y presenta abundante cromatina condensada. En resumen, se trata de células poco especializadas, que están dividiéndose continuamente mediante mitosis para dar lugar a diferentes tipos de tejidos dentro de la planta.

      Según su origen se distinguen dos tipos de meristemos: los primarios aparecen ya en el embrión, y son capaces de originar todos los tejidos primarios, y los secundarios, que se generan por desdiferenciación de células maduras, y que originan los tejidos secundarios.
      Los meristemos primarios pueden aparecer en el ápice de crecimiento (meristemos apicales) o en los entrenudos del tallo (meristemos intercalares). Estos últimos son los responsables del crecimiento en longitud del tallo. En cuanto a los apicales, en ellos se distinguen células que dan origen a la epidermis (protodermis), a los tejidos vasculares primarios (procambium) y al resto de los tejidos primarios de la planta (meristemo fundamental).

      Los meristemos intercalares se encuentran entre otros tejidos. Concretamente, los que se encuentran en los entrenudos del tallo son los que permiten el crecimiento en longitud cuando éste no ocurre solo por crecimiento apical.

      Los principales meristemos secundarios son el felógeno y el cambium vascular. El felógeno es el responsable de la formación de los tejidos secundarios protectores de la planta, es decir, de la peridermis. Inicialmente se situa formando un anillo contínuo por debajo de la epidermis. Cuando empieza su proliferación, las células que lo forman sufren divisiones periclinales (es decir, el eje de división de cada célula se sitúa en disposición radial), dando lugar a dos células que evolucionan de modo diferente: hacia el exterior forman una capa de súber, caracterizada porque la pared celular de sus células presenta una sustancia grasa impermeable, la suberina, mientras que hacia el interior dan lugar a la felodermis, un tejido formado por células isodiamétricas.

      El cambium es un tejido meristemático que da lugar a la formación de los tejidos vasculares. El procambium es un meristemo primario, que se forma en el ápice de crecimiento a partir del meristemo apical, y que da lugar al floema y al xilema primarios. En las plantas con crecimiento secundario, el cambium vascular forma una vaina continua alrededor del tallo y la raíz, y de sus respectivas ramificaciones. En el caso de que las hojas presenten crecimiento secundario también se extiende por ellas en forma de bandas.

      Las células del cambium vascular tienen un aspecto diferente a las células meristemáticas típicas. Cuando están en reposo tienen relativamente pocas vacuolas, pero cuando empiezan a dividirse se transforman en células muy vacuoladas. Hay dos tipos de células cambiales: las iniciales fusiformes, alargadas y terminadas en cuña, que dan lugar al sistema vascular axial, y las células iniciales radiales, que pueden tener desde forma isodiamétrica a alargada, y que dan lugar al sistema vascular radial.

      sábado, 18 de diciembre de 2010

      Anatomía y fisiología vegetal III: estructuras implicadas en el transporte

      Las plantas terrestres, como resultado de su adaptación a este medio, han necesitado desarrollar sistemas de transporte vertical de nutrientes en dos sentidos distintos: el agua y los nutrientes minerales deben subir desde el suelo hasta todos los órganos aéreos, en algunos casos situados a una altura considerable, mientras que los nutrientes elaborados como resultado de la fotosíntesis deben ser transportados desde las hojas, donde se producen, hasta el resto de la planta, siguiendo un camino básicamente descendente. Las plantas han desarrollado un doble sistema de conducción de fluidos: el xilema, que se ocupa del transporte ascendente, y el floema, que se encarga de transportar los compuestos orgánicos en sentido descendente. Ambos tejidos están asociados entre sí, formando cordones longitudinales a lo largo de la planta, que reciben el nombre de haces conductores.
      El ascenso del agua y los minerales, en particular, supone un problema de dificultad considerable para las plantas. Hay que tener en cuenta que, en algunos casos, supone vencer distancias de decenas de metros sin que existan mecanismos activos de bombeo que lo hagan posible.
      Un primer elemento que podría contribuir al ascenso del agua a lo largo de la planta sería la presión radicular, es decir, suponer que el agua absorbida por las raíces empuja hacia arriba al contenido del xilema. Sin embargo, medidas de presión en el interior de esos vasos muestran que más bien están sometidos a una presión negativa. Otra solución que podría contribuir a la subida del agua es la capilarización de los vasos del xilema, es decir, la reducción de su diámetro que se compensa con el aumento del número de vasos. En todo caso, el ascenso capilar no permite explicar el ascenso más allá de unos cuantos decímetros.
      La subida de la savia desde las raíces hasta los órganos situados a mayor altura se explica, finalmente, mediante la teoría de la tensión-cohesión. De acuerdo con ella, el agua forma una columna continua desde la raíz hasta las hojas, a lo largo del xilema. Cuando las moléculas de agua se evaporan en las hojas, la tensión necesaria para arrancarlas de esta columna "tira" del resto de las moléculas de agua, arrastrándolas hacia arriba. Las fuerzas de cohesión entre las moléculas son suficientes como para mantener su integridad, de forma que por cada molécula que se evapora en la hoja, hay una molécula que pasa desde las células de la raíz al xilema y que puede ser transportada hacia las partes altas de la planta.

      Tejidos implicados en el transporte

      El transporte de sustancias a lo largo de la planta es realizado por dos tipos de tejidos complejos, el xilema y el floema. El primero se encarga del transporte ascendente del agua y los minerales desde las raíces hacia los órganos superiores de la planta, mientras que el floema se ocupa del transporte de compuestos orgánicos desde las hojas hacia el resto de los órganos de la planta. 
      Ambos tejidos presentan varios tipos de células, algunas de ellas especializadas en la conducción, y otras de soporte o que realizan funciones complementarias pero necesarias para el funcionamiento del tejido correspondiente. Xilema y floema se forman a partir del mismo tejido meristemático, el cámbium vascular, y aparecen asociados formando los haces vasculares, cordones especializados en la conducción que recorren la totalidad de la planta.


      Las células más especializadas del xilema son los elementos traqueales, de los que se distinguen dos tipos: las traqueidas y los elementos de vaso. Los dos son células alargadas, con pared celular lignificada y muertas en su madurez. Ambos tipos celulares participan en el transporte. Además, el xilema presenta también células no transportadoras que reciben el nombre de fibras.
      En el floema, los tipos celulares presentes incluyen elementos cribosos, que a su vez pueden ser células cribosas y elementos de tubo criboso, que tienen función conductora, células de esclerénquima (fibras y esclereidas), con función de sostén, y a veces de almacenamiento, y células parenquimáticas, que tienen como función el almacenamiento y el transporte radial de los nutrientes. Una característica diferencial de los elementos conductores del floema es que sus células mantienen entre sí paredes celulares, sin llegar a formar un tubo abierto. Las paredes celulares que se encuentran entre los elementos de tubo poseen, sin embargo, perforaciones que forman una estructura llamada placa cribosa, por su parecido con estas herramientas. Por último, las células del floema están vivas en su madurez, y su pared no está lignificada.

      A diferencia de lo que ocurre en el xilema, el transporte en el floema es bidireccional: se produce tanto en sentido ascendente como descendente. El reparto horizontal de los nutrientes les corresponde a las células parenquimáticas que actúan como acompañantes de los elementos especializados en la conducción vertical.
      Órganos implicados en el transporte

      Los dos órganos vegetales que participan en el transporte de sustancias en la planta son la raíz y el tallo. La estructura de la raíz es más sencilla que la del tallo. Es una estructura axial, sin diferenciación en nudos y entrenudos ni relación con órganos especiales como las hojas.
      Longitudinalmente, en la raíz se distinguen varias zonas diferenciadas: el ápice está recubierto por una zona protectora llamada caliptra o cofia, formada por células parenquimáticas,  que protege al meristemo apical y que determina la dirección de crecimiento de la raiz (geotropismo). Bajo la cofia se dispone el meristemo apical, un tejido no diferenciado que está en continuo crecimiento. Las células que quedan en posición superior dan lugar a la zona de elongación, una zona no absorbente en la que la raíz conserva su capacidad de crecimiento en tamaño.
      Por encima de la zona de elongación aparece la zona pilífera, donde se encuentran los pelos radiculares. Se trata de estructuras tubulares, formadas a partir de la epidermis o de células situadas bajo dicha capa. Los pelos radiculares no son más que prolongaciones de estas células, que contienen en su interior una parte de la vacuola. Su papel principal dentro de la planta es aumentar la superficie a través de la cual se produce la absorción del agua.
      Más cerca de la superficie del suelo, si la planta tiene crecimiento secundario, puede producirse la ramificación de las raíces, lo que incrementa aún más la superficie de absorción. La estructura de las raíces secundarias es idéntica a la de las raíces primarias.

      Además de hacer posible la absorción de agua y minerales la raíz proporciona sujección al sustrato a la planta, lo que es particularmente importante en el caso de plantas de tamaño considerable.
      En un corte transversal de la raíz se diferencian los tres sistemas fundamentales de tejidos vegetales, ordenados de modo concéntrico: el sistema dérmico, formado por la epidermis, el sistema fundamental, constituído por tejido parenquimático y denominado corteza, y el sistema conductor. En algunos casos puede aparecer también un tejido medular en posición central, con lo que los haces conductores se disponen formando un cilindro hueco, pero si no es así el haz conductor ocupa el centro geométrico de la raíz, formando un cilindro macizo con el xilema rodeando al floema.

      La epidermis está especializada en la absorción, y la presencia de pelos radiculares permite incrementar la superficie apta para tal función incluso muy por encima de las necesidades de la planta.

      La corteza es un parénquima en el que, típicamente, aparecen espacios rellenos de aire. Se considera que ese aire es necesario para que las células de la raíz puedan realizar la respiración celular, y también para que se produzcan ciertos procesos de detoxificación. Las células de la corteza presentan grandes vacuolas y plastos, aunque sin clorofila, que acumulan sustancias de reserva.

      La endodermis es una capa especializada, cuyas células presentan una zona suberificada en algunas de sus paredes, formando un cinturón cerrado que recibe el nombre de banda de Caspary. La suberización de la pared la hace impermeable, de modo que los nutrientes absorbidos en la raíz y que se mueven hacia el centro de la misma, no pueden atravesar la endodermis más que a través del citoplasma de sus células, no a través de su pared.
      Esto supone que estas sustancias deben atravesar la membrana plasmática lo que, dado que su permeabilidad es selectiva, permite que la planta controle qué sustancias alcanzan los tejidos conductores.

      El centro de la raíz está ocupado por el haz conductor, que incluye los tejidos conductores (xilema y floema) y una capa celular que los rodea, el periciclo. En el haz conductor, el xilema ocupa la parte central del cilindro, y presenta forma de "estrella", emitiendo radios de células de xilema hacia la parte externa del cilindro. El número de radios es característico de cada tipo de plantas. Entre los radios de xilema se disponen las células del floema.

      El tallo presenta los mismos tipos de tejidos que la raíz: epidérmicos, fundamentales (parénquima) y vasculares (xilema y floema), aunque dispuestos de modo diferente. De fuera hacia adentro, la primera capa que aparece es la epidermis, impermeabilizada por su cutícula. Bajo ella aparece la corteza, formada por varias capas de células de tejidos fundamentales: colénquima y parénquima clorofílico. Más hacia el interior aparece el tejido conductor, que deja en el centro un cilindro macizo de tejido parenquimático.

      La principal característica distintiva de los diferentes tipos de tallos es, precisamente, el modo en que se dispone el tejido vascular respecto al tejido fundamental. En las coníferas y en las dicotiledóneas el tejido vascular suele aparecer formando un cilindro hueco que deja hacia el interior una médula de células parenquimáticas. El cilindro conductor no es continuo, sino que está formado por cordones separados entre sí por parénquima que conecta la médula con la corteza. Cada cordón de tejidos conductores constituye un haz conductor, mientras que los elementos de parénquima que se sitúan entre ellos suelen recibir el nombre de radios.
      La disposición de xilema y floema es variable según los grupos de plantas, aunque una bastante típica es la que sitúa al floema hacia la médula con el xilema orientado hacia el exterior del haz vascular. En cualquier caso, entre ambos tejidos se dispone una fina capa de tejido meristemático, el procámbium, a partir del cual se producen tanto xilema como floema.

      El crecimiento secundario de raíz y tallo

      El concepto de crecimiento secundario en los vegetales se refiere a un desarrollo que supone el aumento de grosor de la planta pero, sobre todo, la aparición de nuevos tejidos y estructuras que proporcionan una mayor resistencia al vegetal que lo presenta. Muchos de los nuevos tejidos que aparecen como resultado de este proceso están lignificados, es decir, presentan modificaciones químicas de su pared celular, la más significativa de las cuales es el depósito de lignina, un polímero sin estructura bien definida constituido por la unión de distintos alcoholes fenólicos previamente deshidrogenados. La polimerización de esta sustancia no está controlada enzimáticamente, por lo que su estructura varía de una molécula a otra.

      El crecimiento secundario es típico de las gimnospermas y de muchas dicotiledóneas (las no herbáceas), mientras que es bastante excepcional en las monocotiledóneas.

      Una característica común en el desarrollo secundario de tallo y raíz es la sustitución de la epidermis por una estructura más compleja, provista de varias capas celulares, llamada peridermis. La peridermis se forma a partir de un meristemo llamado felógeno, que produce dos tipos de células: hacia el exterior, células con la pared suberficada, que constituyen el felema o capa de súber (lo que habitualmente se conoce como "corteza" del árbol) y hacia el interior la felodermis.

      Los tejidos conductores también experimentan crecimiento secundario, lo que permite a la planta reemplazar la parte del xilema que haya podido dañarse con el tiempo. Los nuevos tejidos crecen a partir del cámbium vascular, y dan lugar a la formación de anillos de xilema que forman el leño del tronco.