Mostrando entradas con la etiqueta citología. Mostrar todas las entradas

miércoles, 5 de noviembre de 2014

Estructura y función celular: los orgánulos II

La capacidad que tienen las células eucariotas de cambiar la forma de su membrana no solo les permite formar vesículas simples, sino también sistemas complejos de bolsas de membrana distribuidas por el citoplasma que crean compartimentos celulares diferenciados y, por lo tanto, que pueden especializarse en diferentes funciones y dan lugar a los orgánulos que caracterizan este nivel de organización celular. El conjunto de orgánulos membranosos que forman parte de una célua eucariota recibe el nombre de sistema endomembranoso.
Probablemente el sistema endomembranoso de los eucariotas se originó por invaginación de la membrana plasmática: una zona de ésta debió hundirse hacia el interior de la célula, dando lugar a una bolsa, en principio comunicada con el exterior. Este compartimento distinto, separado tanto del citoplasma como del exterior de la célula, seguramente proporcionó ventajas a la célula, como la de acumular sustancias necesarias para ella sin que se perdieran en el medio externo por difusión, pero también sin que se mezclaran con los componentes del citoplasma, con los que podrían reaccionar de un modo no deseado.
El sistema endomembranoso de las células es un componente celular dinámico. Esto significa que pueden desprenderse vesículas de membrana de algunos de sus elementos y moverse a través de la célula hasta fusionarse con otros orgánulos distintos. Gracias a esta característica el sistema endomembranoso desarrolla un mecanismo de "tráfico vesicular", que permite tanto el intercambio de sustancias y partículas entre la célula y el entorno que la rodea como el movimiento de sustancias entre orgánulos, sin que lleguen a mezclarse con el citoplasma.

 
 El tráfico vesicular interviene en la endocitosis, es decir, en la introducción a la célula de moléculas de gran tamaño para que sean recicladas (por ejemplo los receptores hormonales), la fagocitosis que llevan a cabo algunas células del sistema inmunitario como los macrófagos o la exportación de sustacias por la célula hacia el medio extracelular.

Orgánulos del sistema endomembranoso

Aunque están relacionados por su origen y por su dinámica, los orgánulos del sistema endomembranoso se distinguen entre sí por su estructura y por las funciones específicas que realizan en el seno de la célula.

Retículo endoplásmico

El retículo endoplásmico o endoplasmático es una red de tubos y bolsas de membrana que se encuentra distribuido a lo largo de la célula. En general, sus bolsas están comunicadas entre sí, dando lugar a un compartimento intracelular separado del resto del citoplasma. El retículo juega un importante papel en la síntesis de moléculas complejas que son necesarias para la célula o para otros elementos del organismo.

Cuando se observan células con el microscopio electrónico se aprecia que hay dos tipos diferentes de retículo endoplásmico, cada uno de los cuales tiene un aspecto y una función característicos. El retículo endoplásmico liso, constituido simplemente por tubos y bolsas de membrana, interviene en la regulación de la concentración de calcio en el citoplasma, lo que a su vez tiene gran importancia para el funcionamiento celular (por ejemplo, el cambio en la concentración de calcio provoca la contracción muscular), pero también interviene en la síntesis de lípidos, entre otros de los que forman la membrana celular y la del resto de los orgánulos. Por su parte, el retículo endoplásmico rugoso se caracteriza porque su membrana presenta, en la cara que da hacia el citoplasma de la célula, engrosamientos en forma de puntos que se han identificado como ribosomas. Esto relaciona la función de este orgánulo con la síntesis de proteínas, concretamente con las que van a formar parte de la membrana celular o van a ser exportadas hacia el resto del organismo.
Aparato de Golgi

Los aparatos o complejos de Golgi son conjuntos de bolsas aplanadas de membrana junto a las cuales aparecen grupos de vesículas de membrana libres, que se encuentran cerca del retículo endoplásmico. Cada célula puede tener  uno o varios aparatos de Golgi, lo que es más típico de las células vegetales.

En cuanto a su función, el aparato de Golgi es el centro de procesamiento y distribución de sustancias de la célula. Las sustancias elaboradas en el retículo endoplásmico rugoso salen de él dentro de vesículas que viajan hasta el Golgi. Una vez allí sufren una serie de cambios químicos que podrían describirse como "etiquetado": se añaden a las moléculas ya formadas una serie de fragmentos que van a permitir que sean reconocidas por otras células o que las van a dirigir hacia puntos específicos de la propia célula. Una vez etiquetadas, las moléculas salen del Golgi hacia tres destinos principales: la formación de lisosomas (el Golgi produce el contenido de estas vesículas, que van a permitir romper y reciclar otras moléculas que ya no sean útiles a la célula), la membrana plasmática (toda la membrana celular se renueva a partir del aparato de Golgi) o el exterior de la célula (los productos de secreción de la célula, incluyendo los componentes de la pared celular de los vegetales, proceden del aparato de Golgi).

Núcleo celular

El núcleo de la célula eucariota es una estructura aproximadamente esférica rodeada por bolsas aplanadas de membrana, similares a las del retículo endoplásmico. El interior del núcleo (nucleoplasma) contiene el material  genético de la célula. Durante la mayor parte del tiempo, mientras la célula realiza sus actividades normales, ese material genético apenas resulta visible, apreciándose en las micrografías de mayor resolución como un hilo fino con engrosamientos distribuidos a intervalos regulares ("collar de perlas"). Eso se debe a que el ADN está totalmente estirado, permitiendo su lectura por las proteínas que interactúan con él. Además, es posible observar, en la mayoría de los casos, una zona más densa a los electrones: el nucleolo. Actualmente sabemos que se trata de una región del núcleo en la que se está sintetizando activamente el ARN que formará parte de los ribosomas. El material genético poco visible, no condensado, recibe el nombre de cromatina.

La envuelta nuclear es, en realidad, continuación del retículo endoplásmico rugoso, y presenta ribosomas adheridos en su cara externa, orientada hacia el citoplasma. En algunos puntos la membrana se dobla sobre sí misma, dejando un orifico que comunica el nucleoplasma con el citoplasma, llamado poro nuclear. Es importante señalar que la membrana es continua en todo el perímetro de los poros, no se interrumpe en ningún punto. Los poros permitirían el paso entre el nucleoplasma y el citoplasma, pero están ocupados por un grupo de proteínas que actúan como diafragma: se cierran o se abren para dejar salir el ARN hacia el citoplasma, donde se encuentran los ribosomas.

Orgánulos complejos: mitocondrias y plastos

Todas las células eucariotas poseen mitocondrias, y las células vegetales presentan, además, plastos (este es el nombre correcto del orgánulo; son cloroplastos cuando tienen color verde, pero también pueden ser transparentes -leucoplastos- o de otros colores -cromoplastos-).

A pesar de ser muy diferentes entre sí, estos dos tipos de orgánulos comparten muchas características, lo que refleja una intensa relación entre ellos: estructura parecida, funciones relacionadas e incluso un origen común.
Desde el punto de vista de la estructura, estos dos orgánulos tienen muchas características comunes: los dos están formados por dos membranas totalmente separadas entre sí, que dan lugar a dos compartimentos distintos: uno interno, similar al citoplasma de una célula, y otro situado entre las dos membranas (espacio intermembranoso) que está ocupado por un medio líquido de composición distinta al compartimento interno. En los dos casos la membrana interior crece hacia adentro, aumentando su superficie todo lo posible sin que el propio orgánulo incremente su tamaño. En el compartimento interno de los dos orgánulos se pueden encontrar ADN propio, con información distinta a la contenida en el núcleo celular, y ribosomas del mismo tipo que está presente en los procariotas.

En cuanto a su función, los dos orgánulos participan en procesos de producción de energía que va a ser aprovechada por la célula: la respiración celular en el caso de la mitocondria y la fotosíntesis en los plastos. Esa producción de energía tiene lugar aprovechando la membrana interna de los dos orgánulos. Además de la energía, ambos orgánulos utilizan y producen sustancias importantes para el resto de la célula, de modos distintos a como ocurren en el citoplasma. La mitocondria quema y produce lípidos, mientras que los cloroplastos utilizan la energía que producen para sintetizar glúcidos.

Tantos elementos estructurales y funcionales en común han llevado a suponer que los dos orgánulos poseen también un origen evolutivo común, que estaría explicado por la hipótesis endosimbionte. Esta teoría busca el origen de este tipo de orgánulos hace unos 3.000 millones de años, cuando la atmósfera terrestre no tenía oxígeno. En esa época debieron aparecer los primeros antepasados de los eucariotas, diferentes de los procariotas, entre otras cosas, por su capacidad para crear vesículas de membrana.

Las células de ese periodo de la historia de la Tierra eran anaerobias: no solo eran incapaces de utilizar el oxígeno, sino que además resultaba tóxico para ellas. Los organismos heterótrofos utilizarían compuestos orgánicos que transformarían en otros más sencillos, pero no en CO2, ya que no los oxidaban por completo, mientras que los autótrofos realizarían un tipo de fotosíntesis que no libera oxígeno.

En este contexto debieron aparecer los antepasados de las actuales cianobacterias, organismos procariotas que desarrollaron un tipo de fotosíntesis más eficaz: produce más energía, rompiendo moléculas de agua y formando oxígeno. La liberación de este gas a la atmósfera dio lugar a uno de los cambios ambientales más importantes de la evolución geológica de nuestro planeta: la formación de una atmósfera oxidante, tóxica para la mayor parte de los organismos que existían en esa época. Algunas bacterias pudieron evolucionar, desarrollando mecanismos bioquímicos que les permitieron aprovechar el oxígeno, mejorando incluso su capacidad de producir energía al emplearlo para oxidar por completo los compuestos orgánicos que usaban como nutrientes.

Los antepasados de los eucariotas, por el contrario, no desarrollaron nuevas formas de utilizar el oxígeno, sino que gracias a su capacidad para formar vesículas de membrana pudieron fagocitar una de estas bacterias aerobias, manteniéndola viva dentro de una bolsa de membrana, en el interior de su citoplasma. Esto debió dar lugar a las primeras mitocondrias que serían, entonces, organismos simbiontes de los eucariotas. Más adelante, algunos de estos organismos pudieron hacer lo mismo con una cianobacteria, es decir, englobarla dentro de una bolsa de membrana y mantenerla viva en su interior. Así se habrían formado los primeros cloroplastos, y habrían evolucionado también los antepasados de las plantas actuales.

Esta teoría que explica el origen de mitocondrias y plastos por simbiosis con otros organismos se conoce como hipótesis endosimbionte, y tiene sus puntos fuertes en los parecidos de ambos orgánulos entre sí y con los grupos de procariotas de los que se supone que proceden.

Estructura y función de las mitocondrias

Las mitocondrias tienen forma de píldora y el tamaño aproximado de una bacteria. Su membrana interna se proyecta hacia el interior de su compartimento central, llamado matriz mitocondrial, formando las "crestas mitocondriales", algo así como unos tabiques que no dividen por completo la matriz. En su interior aparecen, como se ha dicho, una molécula de ADN y ribosomas, además de algunos gránulos de reserva.

Las mitocondrias guardan relación con la síntesis y utilización de los lípidos pero, sobre todo, son los orgánulos responsables de la respiración celular, que es el proceso mediante el cual la célula obtiene la mayor parte de la energía que necesita.

La célula utiliza energía química, que acumula en los enlaces de algunos de sus componentes, en particular de una sustancia llamada ATP. Una parte de esta energía se consigue en el citoplasma, oxidando los nutrientes como la glucosa. Sin embargo, el citoplasma de la célula es anaerobio, es decir, el oxígeno resulta tóxico en él, por lo que los nutrientes no se oxidan por completo en ese compartimento celular. Los nutrientes llegan, por lo tanto, al citoplasma, donde son aprovechados parcialmente. Los productos resultantes pasan a la mitocondria, donde terminan de oxidarse para producir más energía y dar lugar, como residuo final, a dióxido de carbono.

La mitocondria posee ADN y ribosomas propios, que utiliza para producir algunas de sus propias proteínas, aunque no todas, ya que depende parcialmente de la información genética del núcleo celular. También tiene capacidad para reproducirse por sí misma.

Estructura y función de los cloroplastos

La estructura de los cloroplastos es algo más compleja que la de las mitocondrias, aunque responde al mismo patrón básico. En este caso el compartimento interno se denomina estroma, y está ocupado por una cantidad considerable de bolsas de membrana en forma de moneda que reciben el nombre de "tilacoides". La membrana de los tilacoides se comunica con la membrana interna del cloroplasto a través de una red de tubos y canales.

Los tilacoides suelen aparecer apilados, formando montones que pueden llegar a apreciarse en el microscopio óptico y que reciben el nombre de "granum" (plural grana).

La función de los cloroplastos es llevar a cabo la fotosíntesis, proceso mediante el cual la planta transforma la energía solar en energía química y luego utiliza esa energía para producir sustancias nutritivas que puede exportar al citoplasma y a otras células no verdes.

Las células que no realizan la fotosíntesis también tienen plastos, pero en este caso no tienen color, y su función es la de acumular almidón, por lo que se denominan amiloplastos.

Los plastos, igual que ocurre con las mitocondrias, se reproducen autónomamente dentro de la célula.

Pared celular

Las células vegetales, las de los hongos y las procariotas están protegidas exteriormente por una estructura gruesa llamada pared celular.

En realidad, las paredes celulares de los tres grupos citados tienen diferente composición y estructura, pero en los tres casos tienen en común que son estructuras de un gran espesor que se sitúan por fuera de la célula y que tienen una furnción de sostén y protectora.

La pared celular de los vegetales está formada por fibras de varias sustancias, entre las que destaca la celulosa, una sustancia formada por decenas de miles de moléculas de glucosa unidas entre sí formando cadenas ramificadas. Estas moléculas se sitúan paralelas entre sí, formando capas en direcciones cruzadas, y entre ellas se sitúan otras sustancias que las enlazan, proporcionándoles resistencia.


jueves, 30 de octubre de 2014

Los orgánulos celulares: estructura y función I

Una de las características particulares de los seres vivos es que en ellos se da una relación muy estrecha entre su estructura, es decir, el modo en el que están organizadas las partes que los forman, y su función, o sea, las actividades que son capaces de realizar. Dicho con otras palabras, esto significa que cada parte de un ser vivo parece estar diseñada para realizar un trabajo específico. En realidad, no existe ese diseño intencional, sino que la idoneidad de las estructuras es el resultado de un largo proceso de ensayo y error, pero ese no es el tema en esta ocasión, sino analizar cómo esa relación entre estructura y función se da también en la propia estructura celular.
El estudio de la célula
Las células tienen un tamaño muy reducido, lo que hace muy difícil su estudio directo. Históricamente, el procedimiento más utilizado para su análisis ha sido de tipo visual, utilizando como herramienta el microscopio. Pero el estudio microscópico de las células presenta varios problemas: en primer lugar, las estructuras celulares son prácticamente transparentes, por lo que es necesario teñirlas con algún tipo de colorante para poder observarlas.

El segundo problema es, evidentemente, el tamaño de las estructuras subcelulares. La capacidad de aumento de un microscopio se sitúa en torno a los 1000x, lo que significa que una mitocondria, con una longitud de 3 μm y una anchura en torno a los 0,5 μm se observaría como una línea de unos 3mm de longitud y 0,5 mm de anchura (el trazo de un bolígrafo de punta fina). Además, esa imagen, aunque la ampliáramos por otros medios, no nos permitiría observar detalles porque le falta resolución.

El contexto en el que más se habla de la resolución de una imagen es en la fotografía digital. Cuando se dice que una imagen tiene gran resolución se quiere decir que, al aumentarla, se pueden observar detalles cada vez más pequeños, distinguiendo entre ellos. Desde un punto de vista un poco más riguroso, el poder de resolución es la capacidad para distinguir como elementos diferentes puntos que estén próximos entre sí.

El poder de resolución de un microscopio depende de sus lentes, claro está, pero depende también de algunas características de la "luz" que utilizamos para formar la imagen, concretamente de su longitud de onda. Cuanto mayor es la longitud de la onda, menor es el poder de resolución. La luz visible, que emplea el microscopio óptico para formar las imágenes, tiene una longitud de onda entre 0,4 y 0,7 μm, lo que hace que el poder de resolución del microscopio sea, como máximo, de unos 0,2μm (200 nm). Es decir, cuando dos puntos distintos están separados entre sí menos de 200 nm, nosotros los apreciamos como uno solo con un microscopio óptico, por bueno que sea.
La solución técnica al problema se basa en que cualquier partícula posee una onda asociada con unas características propias (principio de dualidad onda-corpúsculo). En el caso concreto de la microscopía, se encontró que la longitud de onda asociada a los electrones es mucho menor que la longitud de onda de la luz visible, lo que permite que el poder de resolución de un microscopio que "bombardee" la muestra con electrones en vez de con luz visible sea mucho mayor, en torno a unos 2 nm. Evidentemente, nuestros ojos no pueden percibir los electrones, a diferencia de lo que ocurre con la luz visible, pero es posible utilizar un detector que los reciba y los convierta en una imagen que nosotros podamos ver. En realidad, esto es lo que ocurría en las antiguas televisiones "de tubo": los tubos de rayos catódicos son aceleradores de electrones que los lanzan contra una pantalla detectora. Cuando chocan contra ellos, los electrones provocan un destello de luz en el detector, que es lo que nosotros vemos en realidad.

Así pues, un microscopio electrónico no es más que un sistema que lanza electrones contra la muestra que queremos observar. Utilizando sistemas de enfoque (no son realmente lentes) conseguimos amplificar la imagen, y gracias a que la longitud de onda de los electrones es más pequeña que la de los fotones obtenemos una mayor resolución. Finalmente, los electrones son captados por un detector dejando un punto brillante que podemos observar.

Hay dos tipos fundamentales de microscopios electrónicos que se usan en biología: en los de transmisión los electrones se lanzan a través de una muestra fina. Si no encuentran ningún obstáculo, dan lugar a un punto blanco en la imagen, mientras que si lo encuentran dejan un punto negro. En los microscopios electrónicos de barrido, por el contrario, los electrones son lanzados contra una muestra recubierta por metales pesados, por lo que, en lugar de atravesarla, son reflejados por ella. Esto produce una imagen que reproduce el aspecto tridimensional de la muestra.

Lo que podemos observar, en cualquier caso, en las micrografías electrónicas de transmisión es fundamentalmente un conjunto de puntos, líneas y manchas oscuras, entre grises y negros, sobre un fondo más claro. Las zonas oscuras corresponden a elementos que impiden el paso a los electrones, lo que indica la presencia de materia más densa que lo que les rodea. Las líneas suelen ser membranas, mientras que los puntos aislados suelen corresponder a ribosomas. Las zonas oscuras se interpretan como áreas ocupadas por algún material diferente al que las rodea, y por lo tanto con distinta composición a su entorno.


Las estructuras internas de la célula

Gracias a los avances en microscopía electrónica ha sido posible estudiar los diferentes elementos que forman parte de las células, observando su estructura. Al mismo tiempo, los avances en bioquímica han permitido conocer su composición, con lo que actualmente tenemos una idea bastante buena de cómo son y de para qué sirven.

Membranas biológicas

Las membranas biológicas constituyen el límite exterior de todos los tipos de células y forman también los orgánulos de su interior. A través del microscopio electrónico se observan como líneas oscuras. De los estudios de composición y de sus características físico-químicas se deduce que su estructura corresponde a una doble capa formada por lípidos, en la que se integran diferentes tipos de proteínas. Tanto los lípidos como las proteínas que forman una membrana pueden ser distintos en diferentes partes de su superficie, motivo por el que suele describirse a las membranas como "mosaicos".

En cuanto a su estado físico, la membrana no se comporta como un sólido clásico, sino más bien como una gelatina o unas natillas: las moléculas que la forman pueden desplazarse lateralmente, cambiando de posición dentro de ella. También es posible que algunas partes de la membrana formen vesículas, parecidas a "burbujas", que puedan desprenderse de ella hacia el interior o hacia el exterior de la célula, o que vesículas procedentes del interior de la célula puedan fundirse con la membrana celular pasando a formar parte de ella. Debido a este comportamiento dinámico, se dice que las membranas biológicas se comportan como "mosaicos fluidos".

Las membranas biológicas tienen importantes papeles en la nutrición, en la relación y en la reproducción celular.

Por lo que se refiere a la nutrición, las membranas actúan como un sistema que controla la entrada y la salida de diferentes sustancias a y desde la célula. Debido a su composición química (los lípidos son poco solubles en agua) las membranas biológicas impiden el paso de la mayor parte de las moléculas presentes en el citoplasma, que se disuelven bien en agua y, por supuesto, de las moléculas de gran tamaño que realizan funciones importantes en la célula, como las proteínas. Sí que pueden atravesar la membrana otros lípidos y algunas moléculas pequeñas. Todas las demás moléculas, incluyendo los nutrientes que la célula necesita para funcionar, entran o salen de forma regulada: algunas de las proteínas que están en la membrana son transportadores específicos, cada uno de los cuales permite el paso de un único tipo de sustancia y que, además, pueden ser "abiertos" o "cerrados" en función de las necesidades de la célula. De este modo, la membrana contribuye a regular la composición del interior celular y a proporcionar a la célula los elementos del exterior que ésta necesita. Todos los transportadores que forman parte de la membrana son proteínas.

Las membranas también participan en las funciones de relación. Por una parte, algunas de las moléculas que hay en su parte externa actúan como "identificadores", permitiendo que el sistema inmunitario del organismo las reconozcan como parte del mismo y no las destruyan como si fueran elementos peligrosos. Estas moléculas son las que permiten explicar los problemas de incompatibilidad en las transfusiones de sangre y los trasplantes: cuando dos personas son de diferente grupo sanguíneo, o cuando no son compatibles para un trasplante, es porque las moléculas de su superficie que permiten su reconocimiento por el sistema inmunitario (llamadas antígenos de histocompatibilidad) son diferentes.

Pero además, para relacionarse con el resto del organismo cada célula debe recibir información desde el exterior. En general, esta información llega a la célula en forma de diferentes sustancias químicas que interactúan con su parte más externa, es decir, con la membrana. Estos "mensajeros químicos" (básicamente son las hormonas, pero también pueden ser neurotransmisores si se encuentran en el sistema nervioso o mensajeros paracrinos si proceden de otras células próximas) pueden ser de diferentes tipos. Algunos, que son lípidos (como las hormonas sexuales y otras parecidas) pueden atravesar la membrana, pero en la mayoría de los casos esto no ocurre así: el mensajero químico no penetra en la célula, sino que solo llega a la membrana.

En estos casos, el efecto que el mensajero produce en el interior de la célula se produce gracias a algunas proteínas llamadas "receptores". Cada mensajero químico puede unirse a un tipo específico de receptor. Cuando lo hace, éste cambia de forma y provoca cambios en el interior de la célula, pero sin que el mensajero atraviese la membrana.

Un ejemplo bien conocido de cómo ocurren estos procesos puede ser el modo en que las células actúan cuando hay glucosa en su entorno, para poder utilizarla. La glucosa es un ejemplo característico de molécula que la célula necesita para funcionar, pero que no puede atravesar la membrana libremente. Además, la cantidad de glucosa en la sangre suele ser bastante baja, y solo aumenta cuando las células del organismo la necesitan. Para que una célula pueda absorber glucosa desde el exterior deben ocurrir los siguientes procesos y acontecimientos:
  1. Debe aumentar la concentración de glucosa en el plasma sanguíneo, lo que ocurre después de haber ingerido alimentos o cuando el hígado la libera en respuesta a la necesidad de las células.
  2. El páncreas debe liberar insulina, y ésta debe llegar a la célula para indicar la presencia de glucosa en la sangre.
  3. La insulina tiene que unirse a su receptor, situado en la superfice de la célula, provocando un efecto en el interior de esta.
  4. El transportador de glucosa no se encuentra en la superficie de la célula, sino en vesículas del retículo endoplásmico liso. El efecto intracelular de la insulina consiste en provocar que estas vesículas se desplacen hasta fusionarse con la membrana, con lo que el transportador puede dejar pasar la glucosa.
El citoplasma

El interior de la célula está formado por un medio de consistencia más o menos gelatinosa, denominado citosol, y un conjunto de orgánulos que realizan las diferentes funciones celulares. El conjunto del medio interno y orgánulos celulares recibe el nombre de citoplasma, aunque generalmente este término se utiliza más que el primero.

El citoplasma no es, ni mucho menos, un medio homogéneo. Aunque el componente más abundante es el agua, contiene también una gran variedad de sustancias disueltas: minerales, glúcidos y otras moléculas orgánicas pequeñas... además de otras que, debido a su gran tamaño (macromoléculas), no forman una disolución verdadera, sino que están "en suspensión", haciendo que el conjunto sea un coloide parecido, por ejemplo, a la clara de un huevo. Algunas de esas macromoléculas, concretamente varios tipos diferentes de proteínas que se agrupan entre sí formando fibras y tubos, constituyen el citoesqueleto, un "andamiaje" interno de la célula, que le permite mantener o cambiar su forma, pero también trasladar de un lugar a otro de la célula los orgánulos o las vesículas de membrana.

En el citoplasma celular tienen lugar multitud de procesos químicos que permiten el funcionamiento de la célula. Para que eso sea posible, el citoplasma contiene una multitud de enzimas diferentes, cada una de las cuales se encarga de hacer posible una reacción química distinta. El conjunto de todas esas reacciones recibe el nombre de metabolismo.

Ribosomas

El citoplasma de todas las células presenta, cuando se observa con el microscopio electrónico, un número considerable de puntos oscuros que se conocen como ribosomas. Gracias a otras técnicas de estudio sabemos que los ribosomas son orgánulos celulares formados por dos tipos de sustancias químicas, proteínas y ácidos ribonucleicos ribosómicos y que su papel en el funcionamiento de la célula es sintetizar todas las proteínas que ésta necesita a partir de sus elementos, los aminoácidos, siguiendo para hacerlo la información contenida en los ácidos ribonucleicos mensajeros procedentes del núcleo de la célula.

Los ribosomas están formados por dos subunidades de diferente tamaño, la subunidad grande y la pequeña, cada una de las cuales contiene tanto proteínas como ácidos ribonucleicos. Cuando ambas subunidades están separadas el ribosoma está inactivo. Cuando llega un ácido ribonucleico mensajero (ARNm) desde el núcleo, las dos subunidades se asocian a él formando un ribosoma activo que "lee" la información del ARNm y va uniendo aminoácidos para formar una proteína.

La importancia de los ribosomas para la célula puede apreciarse si se considera que son los responsables de sintetizar todas las proteínas que ésta utiliza, y a su vez las proteínas son las moléculas que realizan casi todas las actividades que ocurren en los seres vivos: sirven de mensajeros químicos, reciben estímulos, permiten las reacciones químicas, forman estructuras celulares, transportan sustancias, producen y permiten el movimiento, controlan el funcionamiento de los genes, almacenan materiales de reserva...

Vesículas membranosas

Las células procariotas no tienen compartimentos diferenciados en su interior, pero todas las células eucariotas presentan orgánulos formados por membranas. Los más sencillos son simplemente bolsas cerradas, que contienen en su interior sustancias diferentes a las que hay en el citoplasma. La existencia de estas bolsas permite que las células tengan "ambientes" separados dentro de ellas, pudiendo mantener aisladas algunas moléculas que, por una razón o por otra, necesitan tener separadas del citoplasma.

Las células pueden tener un gran número de vesículas de membrana en su interior, y en algunos casos pueden distinguirse unas de otras porque tienen distinto aspecto cuando se observan al microscopio. Ejemplos de estas vesículas especializadas son los siguientes:
  • Los peroxisomas son bolsas de membrana que contienen una gran cantidad de enzimas en su interior, y en los que van a realizarse diferentes procesos metabólicos, especialmente de oxidación de algunas sustancias químicas. A veces, la concentración de enzimas es tan alta que pueden observarse formaciones cristalinas en el interior del peroxisoma.
  • Los lisosomas son bolsas de membrana, de tamaños diferentes, en las que ocurre la digestión de las moléculas que han sido absorbidas por la célula. Por este motivo los lisosomas tienen siempre un pH ácido, y suelen diferenciarse de otras vesículas membranosas presentes en la célula por su aspecto oscuro, en muchas ocasiones totalmente negro, en las micrografías electrónicas.

Un caso particular de vesículas membranosas son las vacuolas, características de las células vegetales. En realidad no son más que bolsas de membrana con una sustancia líquida, poco densa, en su interior (vacuola procede de vacuo, vacío, porque aparentemente no contienen nada destacable). La mayor parte de las células vegetales jóvenes no tienen una vacuola, sino muchas de pequeño tamaño que se van uniendo hasta formar una sola, que ocupa la mayor parte de la célula y que suele estar en el centro de la misma. Las vacuolas realizan diferentes funciones en la célula vegetal, como regular el volumen de líquido contenido en ellas, almacenar algunas sustancias o digerir otras.

sábado, 13 de septiembre de 2014

La célula: introducción (nivel básico)


El problema de las cosas sencillas es que hay que comprenderlas muy bien.


Posiblemente el tema de la estructura y el funcionamiento de las células sea el más estudiado de toda la Biología. Y seguramente parece sencillo, así que tanta repetición puede resultar hasta aburrida, pero el estudio de la célula es realmente fundamental para la Biología, lo que justifica toda esta insistencia.
¿Por qué resulta tan importante la célula en Biología? Una primera respuesta podría ser que hay un gran número de organismos que existen como células individuales, y por tanto conocer la célula es equivalente a comprender a estos organismos. Sin embargo, pueden encontrarse otras razones, que tienen aún más peso.
Para empezar, no solo los organismos unicelulares, sino todos los organismos, incluyendo desde los más sencillos hasta los más complejos, estamos formados por células, por lo que decimos que los organismos tenemos siempre estructura celular, o que la célula es la unidad estructural de los seres vivos.
Por otra parte, todas las células que existen tienen todas las características funcionales que identifican a los seres vivos (capacidad de nutrirse, de relacionarse con su entorno, de funcionar coordinadamente, de reproducirse), lo que nos lleva a decir que la célula es la unidad funcional de los seres vivos.
Por último, las células que conocemos presentan, a pesar de sus diferencias, características comunes que nos indican que todas ellas han evolucionado a partir de antepasados comunes, por lo que las células nos muestran también las relaciones evolutivas entre todos los organismos vivos en la actualidad o que han vivido a lo largo de la historia de la Tierra..

La célula como unidad estructural de los seres vivos

La citología, el estudio de la célula, es una larga tradición en la historia de la Biología. La primera observación (indirecta) de estas estructuras se debe a Robert Hooke durante el siglo XVI. Este investigador estaba observando, a través del recientemente inventado microscopio, un trozo de corcho, y descubrió que este material tiene una estructura "reticular", que deja en su interior un conjunto de pequeños espacios a los que Hooke denominó "celdillas" pero utilizando el término latino cellullae. De ahí procede el nombre que todos conocemos. 
En realidad, el corcho no está vivo y lo que Hooke observó fue el espacio dejado al morir por las células de la planta. Los tabiques que separaban esas células son la pared celular, tan resistente que permanece intacta muchos años después de la muerte del propio organismo.
El avance en el conocimiento de las células está muy relacionado con los avances tecnológicos, especialmente con la microscopía. Los primeros microscopios eran instrumentos toscos, con muy poca capacidad de aumento pero, lo que era aún peor, con graves defectos en las lentes que provocaban efectos visuales no controlables (como la aberración esférica) que hacían muy difícil percibir los detalles de la estructura celular. Además, las células son prácticamente transparentes, a excepción de los cloroplastos y algunas otras estructuras menos frecuentes, por lo que para ver su interior fue necesario también desarrollar técnicas de "tinción". Así, lentamente, se fue acumulando la evidencia de que las células aparecían por todas partes cuando se observaban los organismos vivos, hasta que en el siglo XIX los alemanes Matthias Schleiden y Theodor Schwann llegaron a la conclusión de que las plantas y los animales están formados por células. Esta afirmación es lo que se conoce como Teoría Celular.
Sin embargo, la teoría celular parecía tener una excepción: el sistema nervioso. Los elementos del sistema nervioso no parecían tener estructura celular. En vez de cuerpos más o menos redondeados el microscopio mostraba que tenían aspecto de hilos (todavía hoy las llamamos "fibras" nerviosas) y parecía que se trataba de estructuras continuas, que se extendían desde los órganos de coordinación como el encéfalo hasta todos los puntos del cuerpo sin ningún tipo de interrupción.
El problema se debía a que resultaba prácticamente imposible, con las técnicas conocidas en la época, teñir la membrana o las estructuras internas de las células nerviosas. Camilo Golgi, muy conocido actualmente por el orgánulo celular que lleva su nombre, tuvo una idea brillante: en vez de teñir las estructuras internas, trató de "recubrir" con un material que se pudiera ver bien al microscopio (sales de plata o de oro) la parte externa de la célula. Sin embargo, no logró tener éxito con esa estrategia y fue Santiago Ramón y Cajal quien observó por primera vez que el sistema nervioso también está formado por células separadas entre sí, con lo que completó la teoría celular expuesta antes por Schleiden y Schwann.
El resultado final de estos tres siglos de investigación fue, por lo tanto, la afirmación de que todos los organismos están formados por células, y que la célula es la unidad estructural (el elemento más sencillo) de todos los seres vivos.
¿Y los virus? Etimológicamente, la palabra virus significa "veneno" y hace referencia a que los virus son capaces de atravesar los filtros que impiden el paso de bacterias, como si se tratara de sustancias disueltas. En realidad, los virus son mucho más pequeños que cualquier célula, y no comparten ninguna de sus caracteristicas. De hecho, son incapaces de realizar por si mismos los procesos de nutrición, relación y reproducción que conocemos normalmente como "funciones vitales". Esa es la razón por la cual los virus no se consideran seres vivos, al menos en un sentido estricto, sino entidades o estructuras "acelulares".

La célula como unidad funcional de los seres vivos

Todos los seres vivos se caracterizan por su capacidad para mantenerse en el tiempo y dar lugar a otros organismos similares a ellos. Para lograrlo, los seres vivos necesitan llevar a cabo un conjunto de procesos que conocemos como "funciones vitales":
  1. Conseguir la materia y la energía necesarias para mantener y reparar sus estructuras, realizar los procesos que necesitan llevar a cabo, crecer y dar lugar a otros organismos. Es lo que conocemos como funciones de nutrición.
  2. Obtener información de su entorno y de su propio interior para ajustar su funcionamiento a las condiciones existentes en cada momento. Son las funciones de relación.
  3. Generar organismos semejantes a ellos, que conserven sus características básicas y sus capacidades. Funciones de reproducción.
En cuanto a la nutrición, todas las células  necesitan tomar nutrientes de su entorno y eliminar los residuos que producen como consecuencia de su funcionamiento, que en muchas ocasiones pueden resultar tóxicos para ellas. Los organismos unicelulares lo hacen intercambiando esas sustancias directametne con el exterior, a través de sus membranas. En los organismos pluricelulares, en cambio, la situación es un poco más compleja: las células no están en contacto con el exterior, sino con un líquido que las baña y que, a su vez, se mezcla con la savia en los vegetales o con la sangre en los animales. Ese líquido que rodea las células recibe el nombre de medio interno, y es el entorno inmediato de las células de organismos pluricelulares. Es con él con quien se producen los intercambios, es decir, las células obtienen sus nutrientes del medio interno del organismo y expulsan hacia él los residuos que producen.


Estos procesos de intercambio, y la utilización de todos los nutrientes y de la energía química que emplean los seres vivos, tienen lugar en todas y cada una de las células de un ser vivo, por lo que podemos afirmar que son las células las que se nutren, o dicho de otra forma, que las células son la unidad de nutrición de los seres vivos.

Las células también constituyen la unidad de relación de los seres vivos. Los organismos unicelulares reciben información del exterior captando diferentes tipos de estímulos, que pueden ser sustancias químicas, luz o campos electromagnéticos, por poner algunos ejemplos. En los organismos pluricelulares la información del exterior de la célula procede, en general, de otras células del propio organismo, que pueden estar cerca de ellas o en zonas alejadas del cuerpo. Los estímulos captados por las células son prácticamente siempre (incluso cuando el impulso nervioso pasa de una neurona a otra) ciertas sustancias químicas que tienen "significados" específicos y que las células pueden captar. Asimismo, cada una de las células de un organismo tiene capacidad para producir sustancias químicas que sirven para transmitir mensajes al resto del organismo.

Las funciones de relación, además, también incluyen la coordinación entre los distintos componentes que forman cada una de las células. En este caso, la información también se transmite mediante algunas sustancias químicas cuya presencia o ausencia influye sobre el funcionamiento de otras partes de la célula.

La tercera de las "funciones vitales" es la capacidad de reproducción. Los organismos unicelulares son capaces de reproducirse mediante la división de la propia célula. Eso necesita, por una parte, que su "material genético", las moléculas de ADN que contienen toda la información que la célula utiliza a lo largo de su vida, se hayan duplicado para posteriormente repartirse. Los elementos que forman parte de la célula, sus orgánulos y sus moléculas grandes o pequeñas, también se distribuyen entre las dos nuevas células que surgen de la división.
En los organismos pluricelulares la situación es un tanto más compleja. En general, las células tienen la capacidad de dividirse, lo que ocurre para regenerar otras células que han muerto o en el caso de los organismos que presentan reproducción asexual. Sin embargo, esta capacidad suele estar muy controlada por el organismo en su conjunto, de modo que, a lo largo de la vida del individuo, solo unas cuantas células se dividen, y lo hacen solo como respuesta a una "orden" dada por el organismo. En realidad, la reproducción no controlada de una o varias células puede llegar a suponer graves problemas para el organismo: se trata de un "tumor".
Los organismos que presentan reproducción sexual poseen un tipo de células especializadas en esta función. Son los gametos.
Como todas las células de un organismo son potencialmente capaces de dividirse, aunque en general no lo hagan salvo excepciones, se dice también que la célula es la unidad reproductiva de los seres vivos.

Las células y la información genética

Para que una célula pueda vivir debe desarrollar una serie de actividades de modo organizado y regulado: conseguir nutrientes cuando los necesita, eliminar los residuos antes de que le causen problemas, construir estructuras cuando tiene que crecer... Para que todas esas actividades ocurran de modo correcto es necesario que estén controladas, que respondan a una "programación" y que "sigan unas instrucciones". En las células, que son sistemas químicos altamente complejos, esas instrucciones están "escritas" en un tipo muy especial de molécula: el ADN.
Evidentemente, los organismos unicelulares contienen en su ADN toda la información necesaria para su funcionamiento, ya sea en una sola molécula (procariotas) o en varias (eucariotas). Todos los organismos pluricelulares son eucariotas, y poseen varias moléculas de ADN en cada célula. Aunque parezca extraño, todas las células de un organismo pluricelular poseen en su núcleo una copia de toda la información genética que necesita todo el organismo, aunque no la utilicen a lo largo de su vida. Por lo tanto, las células son también la unidad de información de los seres vivos.

Diversidad de células y organismos

A pesar de todas las características comunes que presentan las células de todos los organismos, existen también grandes diferencias entre ellas. Esto permite clasificar a los seres vivos utilizando como criterio los tipos de células que poseen.
En primer lugar se pueden distinguir dos grandes tipos celulares, muy diferentes entre sí en cuanto a complejidad y tamaño. Las células más sencillas se denominan "procariotas" y se caracterizan porque apenas contienen estructuras complejas (orgánulos) en su interior. En particular, su nombre se debe a que no poseen núcleo rodeado por membrana. Este tipo celular incluye dos "dominios" de seres vivos, que se diferencian entre sí por características químicas poco visibles pero muy importantes: las arqueas y las bacterias.
El segundo tipo de organización celular se denomina "eucariota" y presenta un grado de complejidad mucho mayor, que se aprecia por la presencia en el interior de las células de estructuras bien diferenciadas que se denominan orgánulos. El núcleo, que da nombre al tipo celular (eucariota significa verdadero núcleo), es una estructura esférica que contiene el ADN. Las células eucariotas también son muy diferentes entre sí, a pesar de sus características comunes, y esto da lugar a distinguir entre distintos tipos: los protistas, los hongos, las plantas y los animales. Cada uno de estos grupos posee un tipo celular característico.


En realidad, los dos criterios de clasificación biológica no se utilizan conjuntamente, sino que constituyen dos sistemas de referencia. La clasificación de los "tres dominios" distingue bacterias, arqueas y eucariotas, y dentro de ellos protistas, hongos, plantas y animales, es decir, seis grandes grupos. La clasificación de los "cinco reinos" sigue agrupando bacterias y arqueas en el reino Moneras, distinguiendo solo cinco grandes grupos. Este sistema es un tanto más antiguo, anterior al descubrimiento, en los años 80 del siglo XX, de las características peculiares de las arqueas, y probablemente irá dejando de usarse con el paso del tiempo.

martes, 9 de febrero de 2010

Tipos celulares en eucariotas

Si el nivel de organización celular de los procariotas coincide plenamente con una categoría taxonómica, el reino Moneras, no ocurre lo mismo con los eucariotas. En este caso, el mismo tipo general de organización es compartido por los cuatro reinos restantes, aunque entre ellos se presenten grandes diferencias morfológicas y estructurales. A grandes rasgos, el Reino Animales, el Reino Vegetales y el Reino Hongos poseen tipos celulares característicos, mientras que el Reino Protistas presenta una considerable variedad de tipos celulares.

Las células animales

La animal es el tipo celular que menos se diferencia del presunto tipo de célula "generalizado" con los orgánulos comunes a todos los eucariotas. En realidad, hay solo unos pocos orgánulos característicos de las células animales y que no se presentan, por ejemplo, en las vegetales:
  • Componentes del citoesqueleto
    • Centriolos
    • Cilios y flagelos (en algunas)
  • Especializaciones de membrana: 
    • Invaginaciones, microvellosidades
    • Estructuras de unión entre células.

    Especializaciones de membrana de la célula animal

    Las invaginaciones son repliegues de la membrana plasmática hacia el interior de la célula. En muchos casos, son zonas por las que se produce la endocitosis activa de diferentes elementos.

    Las microvellosidades son prolongaciones de la membrana plasmática con forma de dedo. En su interior hay filamentos de actina que les proporcionan soporte, para mantenerlos más o menos rígidos. La función de las microvellosidades es aumentar la superficie de la célula, con lo que se facilitan los procesos que tienen lugar a través de la membrana, en particular la absorción de sustancias.
    Las microvellosidades son características de las células intestinales.

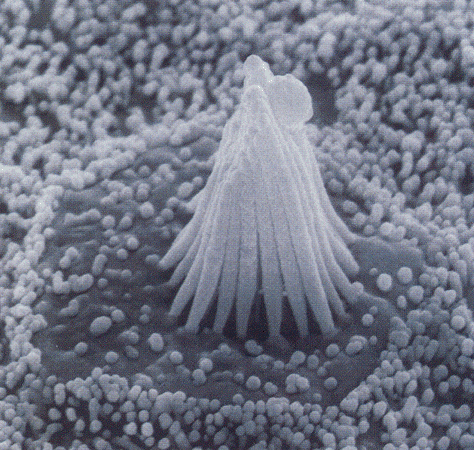
    Los estereocilios son también prolongaciones membranosas en forma de dedo, característicos en este caso del oido interno. Su función es sensorial: son capaces de detectar el movimiento del fluido en el que están inmersos, transmitiendo al cerebro una señal que permite identificar la dirección del movimiento del cuerpo.

    Uniones intercelulares: las células animales necesitan unirse a otras células adyacentes a ellas en el organismo. Estas uniones pueden ser de diferente naturaleza, en función de las necesidades de cada tejido; en algunos casos, es necesario que las células se unan estrechamente para formar una capa totalmente impermeable, por ejemplo para separar el exterior y el interior del cuerpo; en otros casos puede ocurrir que, a pesar de que la unión intercelular deba ser muy firme deba permitir la circulación de sustancias de una zona a otra del tejido. Por último en otros casos puede ser necesario que ciertas sustancias pasen de una célula a otra sin salir al medio extracelular. Los organismos animales tienen estructuras de unión entre células que permiten realizar todas esas funciones.
    • Las uniones adherentes forman un "cinturón" completo en torno a cada célula, uniéndola con las que la rodean. de esta forma se crea una banda impermeable, que impide la entrada o la salida de sustancias. Este tipo de uniones crea un tejido "impermeable", lo que las hace particularmente útiles en epitelios, tejidos que tapizan órganos separándolos de su entorno.
    • Las uniones estrechas son placas de unión que mantienen firmemente unidas a dos entre sí. Aunque la unión en sí misma es impermeable, el resto de la superficie en contacto no está tan íntimamente unidas, por lo que las sustancias pueden rodearlas. Un tipo particular de unión estrecha son los desmosomas y los hemidesmosomas, en los que juegan un importante papel los filamentos intermedios.
    • Las uniones comunicantes están formadas por canales iónicos de las dos membranas adyacentes enfrentados entre sí, de modo que se crea un conducto de comunicación entre ambas células, permitiendo el paso de iones de una a la otra. Hay que tener claro que los canales iónicos que forman estas uniones pueden estar abiertos o cerrados.
    Procesos dinámicos en la membrana

    La membrana de las células animales es su envoltura más externa, a través de la cual tienen lugar todos los procesos de relación de la célula con el exterior. Muchos de estos procesos tienen lugar a nivel molecular (intercambio de sustancias, reconocimiento celular, recepción de señales químicas) pero otros involucran a porciones de la membrana. Es el caso de la endocitosis y la exocitosis. El término endocitosis se utiliza, en general, para referirse a los procesos en los que la célula capta del medio extracelular diferentes tipos de elementos, aunque en sentido estricto se utiliza tan solo para la ingestión de partículas por parte de una célula, utilizando el término pinocitosis para la ingestión de líquidos y fagocitosis para el proceso mediante el cual una célula "se traga" a otra entera. Los elementos atrapados por la célula son envueltos por una porción de la membrana plasmática, que da lugar a una vesícula que se separa del resto de la superficie celular y se introduce en el citoplasma. Su destino suele ser la fusión con lisosomas para digerir las partículas ingeridas.

    En cuanto a la exocitosis, se refiere a la salida de la célula de sustancias que se encontraban en su interior englobadas en vesículas de membrana, procedentes en general del aparato de Golgi.

    Especializaciones del citoesqueleto

    Las células animales presentan siempre, como mínimo, un par de estructuras cilíndricas formadas por microtúbulos que reciben el nombre de centriolos. En todas las células animales aparece siempre un par de centriolos cerca de la envoltura nuclear, aunque en algunos casos pueden aparecer también en la base de cilios o flagelos.

    Estructuralmente los centriolos están formados por nueve tripletes de microtúbulos, distribuidos formando un cilindro sin ninguna otra estructura aparente en su interior. Los centriolos aparecen siempre de dos en dos, dispuestos uno perpendicularmente respecto al otro. Su función está relacionada con la dinámica de los microtúbulos, ya que el crecimiento de estas estructuras se produce a partir de estas estructuras. Debido a esta función, los centriolos se incluyen en un grupo de estructuras que reciben el nombre de "organizadores de microtúbulos".

    Los cilios y flagelos son estructuras básicamente iguales entre sí, hasta el punto de que solo se diferencian en su longitud y, en general, en el número en el que aparecen en la célula (los cilios suelen ser más numerosos que los flagelos, aunque puede haber excepciones; los flagelos son mucho más largos que los cilios).
    En ambas estructuras se aprecian las mismas partes: el axonema o tallo, que es la parte que sobresale del citoplasma celular, una zona de transición, que aparece al microscopio electrónico como una estructura densa que atraviesa la membrana plasmática y un cuerpo basal, cuya estructura es igual que la de los centriolos. La estructura interna de cilios y flagelos es idéntica: en su periferia, justo por debajo de la membrana plasmática, aparecen nueve pares (dobletes) de microtúbulos, unidos entre sí por otro tipo de proteínas. En el centro del tallo aparecen, además, dos microtúbulos separados entre sí. Por último, entre los dobletes de microtúbulos periféricos y el par de microtúbulos central pueden apreciarse estructuras radiales, también constituidas por proteína.

    La función fundamental de cilios y flagelos es la de proporcionar movilidad a la célula, si bien dentro de los organismos pluricelulares las células ciliadas pueden desempeñar otras funciones. Por ejemplo, las células ciliadas del epitelio respiratorio se ocupan de crear corrientes en el medio extracelular para eliminar las pequeñas partículas que hayan podido penetrar a través de las fosas nasales e impedir que lleguen hasta los alveolos.

    Finalmente, las células animales se encuentran inmersas en un medio extracelular, pero interno al organismo del que forman parte, que normalmente ha sido producido por ellas mismas. Desde el punto de vista de su composición, suele tratarse de un gel hidratado formado por polisacáridos y otras sustancias, aunque varía mucho de unos tejidos a otros. Las funciones que realiza son:
    • Rellenar los espacios que quedan entre las células.
    • Conferir resistencia mecánica (frente a la compresión, al estiramiento, etc.) a los tejidos.
    • Constituir el medio homeostático, que proporciona estabilidad química, nutricional y metabólico para las células.
    • Proporcionar fijación para el anclaje celular.
    • Constituir el medio por el que se produce el tránsito de las células.
    • Formar el medio por el cual se transmiten las diferentes señales que viajan entre las células.
    Las células vegetales


    Pared celular

    La característica distintiva más aparente de las células vegetales es la presencia de pared celular, la estructura más externa presente en este tipo de células. Se trata de una cubierta mucho más gruesa que la membrana plasmática, compuesta básicamente por una mezcla de polisacáridos:
    • Celulosa: es el componente mayoritario de la pared. Se trata de un homopolisacárido de glucosa con enlaces (β1→4) con ramificaciones (β1→6).
    • Hemicelulosas: una mezca de diferentes heteropolisacáridos.
    • Pectinas: grupo de heteropolímeros formados por derivados de monosacáridos.
    • Lignina: se encuentra en las células lignificadas (las que forman parte de la madera).

      La pared celular de todas las células vegetales tiene, al menos, dos capas: la lámina media, una capa rica en pectinas, que separa entre sí dos células adyacentes y la pared primaria, formada inmediatamente después de la división celular, que está formada por varias capas de microfibrillas de celulosa. Además, algunas células especializadas presentan también capas adicionales de pared celular que, en conjunto, reciben el nombre de pared secundaria. La pared secundaria se deposita entre la primaria y la membrana plasmática. Puede incluir varias capas, que se van formando a ritmo de una por año.
      En algunos casos, la pared celular presenta perforaciones llamadas plasmodesmos, a través de las cuales se produce el contacto directo entre los citoplasmas de células adyacentes.
      Vacuola

      La mayor parte del citoplasma de las células vegetales suele estar ocupada por una gran vacuola, que desplaza al resto de los orgánulos a la periferia celular. Esta característica no se da en las células inmaduras, en las que, en cambio, aparece un gran número de pequeñas vacuolas. A lo largo del desarrollo, estas vesículas se van fusionando entre sí hasta formar la estructura característica de las células maduras. En el interior de la vacuola vegetal se acumulan diferentes tipos de sustancias químicas, según la planta o incluso el tipo de célula de que se trate. Entre esas sustancias suelen aparecer agua, sales minerales, azúcares, proteínas e incluso sustancias tóxicas que la planta utiliza como defensa contra predadores. La vacuola vegetal, a pesar de su sencillez, realiza diferentes funciones de importancia para la célula:
      • Contribuye al mantenimiento de la presión osmótica celular.
      • Almacena diferentes tipos de sustancias.
      • Participa en procesos de detoxificación
      • Mantiene separados en compartimentos distintos sustancias que no deben mezclarse.
       Plastos

      Los plastos son un tipo de orgánulo exclusivo de las células vegetales, de forma ovalada y gran tamaño (de hecho, son mayores que la mayor parte de las bacterias). Tienen una estructura compleja, bastante relacionada con la de las mitocondrias, ya que presentan dos membranas separadas entre sí por un espacio, e incluyen en su interior una molécula de ADN circular y cerrada y ribosomas 70S.

      El interior de los plastos recibe el nombre de estroma, y en él aparece un gran número de vesículas de membrana aplanadas, con forma de moneda, llamadas tilacoides. Suelen estar apiladas formando conjuntos llamados grana (en singular granum), y su membrana es estructural y funcionalmente continua con la membrana interna del plasto.
      Aunque los más conocidos son los cloroplastos, existen también otros tipos de plastos en la célula: los hay incoloros (leucoplastos), bien porque son inmaduros, bien porque tienen como función principal el almacenamiento de almidón (amiloplastos). Los cloroplastos reciben su nombre de su color (cloro significa verde en griego) que, a su vez, se debe a la abundancia en ellos de clorofila, pero también los hay de otros colores (como amarillo o rojo) debido a la presencia en ellos de otros pigmentos. Los plastos coloreados reciben el nombre genérico de cromoplastos, y tienen como función transformar la energía electromagnética de la luz en energía química.
       

      La célula fúngica, otro modelo de organización eucariota
      Los hongos son organismos totalmente diferentes tanto de las plantas como de los animales. Sus células son muy sencillas, con unos pocos orgánulos; se parecen básicamente a las células vegetales (poseen pared celular, aunque sin celulosa, y presentan una gran vacuola central), aunque carecen de cloroplastos. La organización de su núcleo también es muy sencilla.


      miércoles, 3 de febrero de 2010

      Estructura celular: células eucariotas

      El segundo gran modelo de organización celular es el característico de los organismos eucariotas, que incluyen a los protistas, los hongos, las plantas y los animales. Aunque existen diferencias significativas entre ellos, todos comparten la misma organización básica, caracterizada por la compartimentalización interna, posible gracias a la presencia de un sistema de membranas intracelular.

      La compartimentalización ofrece a la célula nuevas posibilidades; por una parte, los diferentes compartimentos pueden especializarse en funciones distintas, lo que facilita la coordinación entre distintas funciones celulares y la realización de varias al mismo tiempo. Por otra parte, las membranas intracelulares son utilizadas como mecanismo de producción de energía mediante la creación de gradientes quimiosmóticos en el interior de la célula (mitocondria, cloroplasto). Por último, los diferentes compartimentos pueden tener ambientes químicos distintos, incluso totalmente diferentes. Por ejemplo, el citoplasma de las células eucariotas es anaerobio, hasta el punto de que el oxígeno resulta tóxico en esa zona de la célula, mientras que la matriz mitocondrial es aerobia, y permite la utilización del oxígeno en procesos metabólicos.

      De hecho, se supone que el origen de las células eucariotas es el resultado de la necesidad de adaptarse a un ambiente químico diferente al que existía previamente. Según la hipótesis endosimibionte, antes de la revolución del oxígeno (la aparición de la fotosíntesis oxigénica que dio lugar a que la atmósfera acumulara oxígeno) solo existían células procariotas. La acumulación de oxígeno en la atmósfera propició la aparición de algunas células también procariotas capaces de utilizarlo en sus procesos metabólicos (las proto-mitocondrias), mientras que otras habrían evolucionado "englobando" con su membrana este tipo celular (y dando lugar a los eucariotas heterótrofos) o también a las células fotosintéticas (proto-cloroplastos), originando los eucariotas autótrofos. El sistema endomembranoso (los orgánulos como el retículo endoplásmico, el aparato de Golgi, las vacuolas o la membrana nuclear) habría evolucionado previamente a partir de invaginaciones de la membrana plasmática de la célula.


      Aunque no existe una "célula eucariota generalizada" es posible hacer un listado de todos los orgánulos y estructuras comunes a todas las células con este grado de organización, si bien hay que tener en cuenta que las células reales difieren siempre de este modelo simplificado.


      Las características generales de este tipo de células son las siguientes:
      • Nucleoplasma:
        • El material genético de la célula siempre está formado por varias moléculas.
        • Los cromosomas son moléculas de ADN de cadena doble, lineal y terminadas en secuencias de ADN especiales llamadas "telómeros"
        • El ADN está asociado a histonas.
        • El conjunto del material genético está rodeado de una doble membrana (membrana nuclear) formando un compartimento separado, el núcleo.
      • El material genético se replica mediante mitosis.
      • Organización del citoplasma:
        • Los ribosomas tienen un coeficiente de sedimentación de 80S (son algo más grandes que los bacterianos).
        • Poseen citoesqueleto y corrientes citoplasmáticas.
        • Existen orgánulos diferenciados, constituidos por membrana, con funciones especializadas.
      Aspectos generales de la organización eucariota

      El material genético de los procariotas es mucho más complejo que el de los procariotas. Consta siempre de varias moléculas, lo que supone una cantidad de información considerablemente mayor. Además, el ADN está organizado en forma de cromosomas, estructuras en las que un conjunto de proteínas (entre ellas las histonas) empaquetan y protegen el material genético propiamente dicho. Por último, el material genético y todos los compuestos relacionados directamente con su replicación y expresión están separados del resto del citoplasma por un sistema membranoso.

      La organización del citoplasma también es mucho más compleja: tiene una estructura de sostén, constituida por varios tipos de proteínas, que recibe el nombre de citoesqueleto. Además posee varios sistemas de membrana, diferenciados en estructura y función (orgánulos membranosos).

      Orgánulos comunes a todas las células eucariotas

      Las células eucariotas incluyen dos tipos diferentes de ribosomas: los de su citoplasma tienen un coeficiente de sedimentación (parámetro relacionado con su masa y con su forma) de 80S. Su subunidad mayor tiene un coeficiente de sedimentación de 60S y la pequeña de 40S. Este tipo de ribosomas se encuentran tanto libres en el citoplasma como adheridos a algunos sistemas de membrana del citoplasma, concretamente a una parte de su retículo endoplásmico. Los ribosomas libres se encargan de sintetizar las proteínas que la célula necesita en su citoplasma, mientras que los que están unidos al retículo se encargan de sintetizar proteínas que van a quedar en el interior del sistema endomembranoso (en el aparato de Golgi, en el retículo endoplásmico o en algunas vesículas especializadas, como los lisosomas) o que van a ser secretadas al exterior de la célula para que cumplan su función allí.

      Pero, por otra parte, las células eucariotas cuentan también con ribosomas 70S, idénticos a los que se encuentran en los procariotas, en el interior de sus orgánulos más complejos: mitocondrias y plastos. Este hecho, junto a la presencia de ADN circular y cerrado y la doble membrana de estos orgánulos, apoya la hipótesis endosimbionte para explicar su origen.

      Todas las células eucariotas poseen también vesículas o bolsas de membrana, de estructura sencilla (básicamente esféricas, o deformadas), que se diferencian entre sí fundamentalmente por su función. Entre esas estructuras se encuentran las vacuolas de las células vegetales (su nombre procede de vacuum, vacío, porque al microscopio no se aprecia su contenido; en realidad contienen líquido de composición diferente al citoplasma), las vesículas de transporte que se mueven entre diferentes orgánulos celulares llevando sustancias que no se mezclan con el citoplasma, o cuerpos más o menos especializados como los lisosomas, que contienen enzimas capaces de romper otras proteínas, y que no pueden mezclarse con otros componentes celulares sin riesgo de destruirlos. Los peroxisomas se ocupan de eliminar sustancias tóxicas de la célula mediante su oxidación.

      El siguiente nivel de complejidad en las estructuras intracelulares está constituido por los sistemas membranosos complejos (retículo endoplásmico liso y rugoso, aparato de Golgi y membrana celular), que pueden diferenciarse entre sí tanto por su morfología como por su función.

      El retículo endoplásmico liso es un conjunto de cisternas de membrana, típicamente en forma de tubo, que en su conjunto forman un sistema de tuberías interconectadas que recorren buena parte de la célula, aunque puede tener distintos aspectos en células diferentes. Su principal característica distintiva es que no presenta ribosomas adheridos. Las funciones que realiza son las siguientes:
      • Participa en la síntesis de lípidos (ácidos grasos, triacilglicéridos y fosfolípidos) y en el transporte de estas sustancias a través de la célula.
      • Posee enzimas detoxificantes, que metabolizan y eliminan el alcohol y otras sustancias químicas.
       El retículo endoplásmico rugoso es un conjunto de cisternas y conductos que se distribuye por toda la célula, aunque su aspecto más típico es el de un conjunto de sacos aplanados. El término "rugoso" que se utiliza para designarlo se refiere a su aspecto en las micrografías electrónicas, en las que se observa que su membrana presenta, hacia su cara citoplasmática, puntos oscuros que sobresalen de la línea de membrana. Se trata de ribosomas que se encuentran adheridos a la superficie de la membrana y que vierten las proteínas que sintetizan directamente al interior de las vesículas manteniendolas, por tanto, separadas del citoplasma. Las funciones que realiza son:
      • Síntesis de proteínas destinadas al interior de las vesículas de membrana (lisosomas), que se incorporan a las membranas (proteínas integrales de membrana) o destinadas a la secreción.
      • Glucosilación de proteínas.
      • Circulación intracelular de sustancias que no deben mezclarse con el contenido citoplasmático.
      El aparato de Golgi es un conjunto de sacos aplanados, que reciben el nombre de dictiosomas. Se encuentran apilados unos sobre otros, y típicamente tienen un aspecto curvado, en general con la cara convexa orientada hacia el núcleo. Sus funciones son, fundamentalmente:
      • Modificación química de diversas sustancias producidas en la célula, para que puedan adquirir su forma activa (glucosilación, fosforilación) o para identificar su destino final, dentro o fuera de la célula (se unen sustancias que actúan como señal, en particular oligosacáridos).
      • Secreción celular: todas las sustancias secretadas por la célula pasan por el aparato de Golgi.
      • Producción de membrana para otros sistemas celulares, como los lisosomas o la membrana externa de la célula.

      El núcleo celular es una estructura que contiene el material genético celular en el interior de un sistema membranoso. Los elementos que lo forman son:

      • La envoltura nuclear, una doble membrana que lo separa del citoplasma y que se continúa con el retículo endoplásmico rugoso. Al igual que éste, la cara externa de la membrana presenta ribosomas adosados. El sistema de doble membrana está atravesado por "poros", estructuras proteicas complejas que desempeñan una función de "diafragma", ya que tienen la posibilidad de cerrarse o abrirse, permitiendo la salida de moléculas de ARN.
      • La lámina nuclear, una zona situada inmediatamente por debajo de la zona interna de la membrana nuclear, formada por filamentos proteicos que tienen como función proporcionar sostén al núcleo.
      • El nuceloplasma es la zona poco diferenciada que contiene el resto de los elementos nucleares.
      • El nucleolo es una zona que presenta aspecto diferente al resto del núcleo. Se sabe que en él se está sintetizando activamente ARN ribosómico a lo largo de casi todo el tiempo.
      • La cromatina es el conjunto de material genético de la célula. Durante la interfase, es decir, mientras la célula está funcionalmente activa, se encuentra desespiralizada, por lo que no se observan los cromosomas. Por el contrario, durante los periodos de división, el ADN se empaqueta hasta formar los cromosomas, que sí pueden observarse.
      El retículo endoplásmico liso, el rugoso y la membrana nuclear están interconectados, formando un sistema endomembranoso cuyo espacio interno está interconectado.
      La mitocondria es uno de los orgánulos celulares de mayor complejidad. Está presente en la práctica totalidad de las células eucariotas. Al microscopio aparece como un cuerpo alargado, del tamaño y forma de un bacilo. La observación de su estructura permite apreciar que posee un sistema de dos membranas, separadas entre sí por una zona llamada espacio intermembranoso. La membrana interna suele presentar un conjunto de invaginaciones en forma de tabique que reciben el nombre de crestas mitocondriales.

      La presencia de las crestas mitocondriales indica que la mitocondria maximiza la proporción entre la superficie de su membrana interna y su volumen, lo que indica que la membrana interna tiene una importancia considerable en su funcionamiento. Se sabe, en efecto, que una parte importante de los procesos metabólicos que ocurren en la mitocondria se producen, precisamente, en su membrana interna.

      El interior de la mitocondria se denomina matriz mitocondrial, y es bastante similar al interior de una célula procariota. Al igual que estas células, presenta un genóforo propio, constituido por una única molécula de ADN bicatenario circular, cerrado y no asociado a histonas. Los genes de este genóforo se expresan en la mitocondria, y dan lugar a algunas (pero no a todas) de las proteínas que la mitocondria utiliza en su funcionamiento. También aparecen en la matriz mitocondrial ribosomas similares a los bacterianos, es decir, con un coeficiente de sedimentación de 70S y subunidades 50S y 30S. Estas características comunes con los procariotas refuerzan la hipótesis de su origen endosimbionte. También apoya esta hipótesis el hecho de que la mitocondria se reproduzca autónomamente dentro de la célula, replicando y transmitiendo su material genético a las nuevas mitocondrias, sin que haya relacion directa con los procesos generales de reproducción celular.

      En cuanto a las funciones mitocondriales, la más importante es la de proporcionar energía al resto de la célula, gracias a que en su interior (matriz celular y membrana interna) ocurren algunas de las rutas metabólicas más importantes: el ciclo de Krebs, la fosforilación oxidativa y la β-oxidación. Puesto que la mitocondria es el único orgánulo celular capaz de utilizar el oxígeno, es en su interior donde finalizan los procesos degradativos de los combustibles metabólicos. Algunas de estas rutas metabólicas, en particular el ciclo de Krebs, sirven también para proporcionar a la célula sustancias que intervienen en diferentes procesos celulares (intermediarios metabólicos).

      El citoesqueleto o esqueleto celular es un conjunto de estructuras filamentosas de naturaleza proteica entre cuyas funciones destacan mantener la forma celular, o permitir sus cambios, permitir la movilidad o inmovilidad de los orgánulos y participar en la división del citoplasma celular (citocinesis) durante los procesos de división celular.
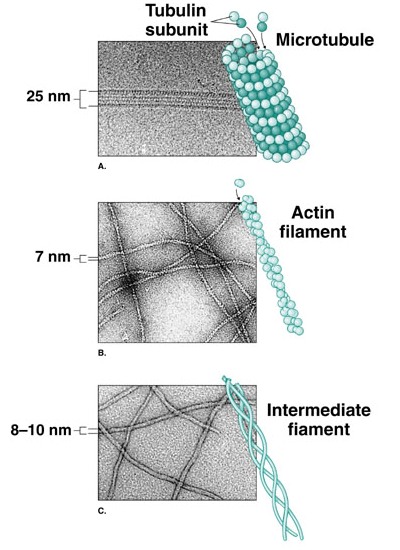
      El citoesqueleto tiene tres tipos de componentes fundamentales: filamentos de actina (microfilamentos), filamentos intermedios y microtúbulos.
      • Los microfilamentos son fibras de unos 7 nm de diámetro, constituidas por dos cadenas de actina. La actina es una proteína globular que puede formar largas cadenas por unión de un gran número de moléculas individuales. Para formar los microfilamentos, dos de estas cadenas constituidas por actina polimerizada se enrollan entre sí formando una espiral. Aparecen especialmente por debajo de la membrana celular, formando una especie de malla que contribuye a mantener la forma de la célula. También son abundantes en las protuberancias celulares (microvellosidades, pseudópodos) o en zonas en las que se dan procesos de comunicación intercelular. Por último, la combinación de la actina con la miosina permite la contracción celular, por ejemplo en las fibras musculares.
      • Los filamentos intermedios son ligeramente más gruesos que los microfilamentos. En realidad se usa este nombre para referirse a fibras celulares de diferente composición, que básicamente participan en el mantenimiento de la estructura de la célula, mediante el establecimiento de una red tridimensional que se extiende por toda la célula a modo de un andamiaje interno.
      • Los microtúbulos son cilindros huecos de unos 25 nm de diámetro. En un corte transversal, se observa que el cilindro está formado por trece filamentos que, a su vez, son el resultado de la polimerización de una proteína globular, la tubulina que, a su vez, tiene dos subunidades. Los microtúbulos son estructuras muy dinámicas, que pueden formarse o deshacerse según las necesidades de la célula. Su crecimiento tiene lugar en una única dirección, por lo que se dice que están polarizados (uno de sus extremos, el +, es el que crece, mientras que el otro, llamado -, es el lado por el que se van separando las moléculas de tubulina). En general, los microtúbulos están asociados siempre a una estructura llamada centro organizador de microtúbulos. Pueden existir varios de estos orgánulos en la célula, por ejemplo los corpúsculos basales de cilios y flagelos, o los centriolos, pero en todo caso parecen encargarse de dirigir la polimerización y despolimerización de los microtúbulos relacionados con ellos.
      La animación anterior muestra un modelo de la polimerización y despolimerización de los microtúbulos.
      Las funciones que realizan los microtúbulos son:
      • Contribuyen a mantener la forma de la célula.
      • Participan en el transporte de partículas y orgánulos por el citoplasma

      •  Forman parte del huso acromático, que interviene en la división celular de las células animales.
      • Forman parte de los cilios y flagelos, y de los centríolos en las células que los presentan.