Mostrando entradas con la etiqueta metabolismo. Mostrar todas las entradas

sábado, 6 de marzo de 2010

La fase oscura de la fotosíntesis

La fase luminosade la fotosíntesis proporciona a las células autótrofas energía química en forma de ATP y poder reductor en forma de NADPH que pueden ser utilizados en otras rutas metabólicas celulares. En el siguiente paso, los organismos autótrofos utilizan esos recursos para asegurarse una provisión de carbono orgánico a partir de una fuente inorgánica de este elemento, el dióxido de carbono presente en la atmósfera o disuelto en el agua.

La asimilación del carbono inorgánico (ese es el nombre preciso del proceso por el cual el carbono inorgánico se incorpora a los compuestos orgánicos) requiere dos procesos químicos diferentes:
  1. La unión de la molécula de dióxido de carbono a un compuesto orgánico, que supone la rotura de uno de los enlaces dobles entre el carbono y el oxígeno y la formación en su lugar de un enlace con un compuesto orgánico.
  2. La reducción del carbono incorporado a la materia orgánica. En el CO2 el carbono se encuentra en su máximo estado de oxidación, mientras que toda la materia orgánica se caracteriza porque el carbono está prácticamente siempre más reducido. Hay que tener siempre presente que el entorno que nos rodea es oxidante, por lo que las reducciones suelen ser "químicamente costosas" para los seres vivos. 
Estos dos procesos son independientes de la luz, lo que significa que pueden producirse tanto en su presencia como en su ausencia, siempre que la célula disponga de todos los recursos necesarios: dióxido de carbono, los compuestos orgánicos y las enzimas necesarias para la ruta metabólica, ATP y poder reductor.

La fase oscura de la fotosíntesis tiene lugar íntegramente en el estroma de los cloroplastos.

Fijación del CO2

El primer paso en la incorporación del carbono inorgánico a la materia orgánica es la fijación del dióxido de carbono. En las plantas verdes este paso puede ocurrir de tres formas distintas, lo que permite distinguir entre tres tipos de fotosíntesis:
  • Las plantas C3 producen como primer compuesto orgánico una molécula de tres carbonos, el 3-fosfoglicerato.
  • Las plantas C4 dan lugar en primer lugar a una molécula de oxalacetato que se transforma en malato.
  • Las crasuláceas tienen un metabolismo característico (metabolismo ácido de crasuláceas, en inglés CAM) en el que se forma también malato como compuesto orgánico a partir del dióxido de carbono.
 La fotosíntesis más típica es la de las plantas C3, en las que el dióxido de carbono reacciona con la Ribulosa 1,5 difosfato, lo que da lugar a un compuesto de seis carbonos muy inestable que inmediatamente se descompone en dos moléculas de 3-fosfoglicerato. La enzima responsable de este proceso recibe el nombre de Ribulosa Bisfosfato Carboxilasa Oxigenasa (RuBisCO), que es la proteína más abundante en la naturaleza.

La fijación del CO2 supone un problema fisiológico para la planta. Las hojas son impermeables tanto al paso de líquidos como al de gases, gracias a que están recubiertas por una cutícula de cera. Sin embargo, hay dos procesos fisiológicos que necesitan que se produzca intercambio gaseoso entre la hoja y la atmósfera: la evapotranspiración, imprescindible para el transporte de sustancias disueltas desde las raíces hasta las zonas altas de la planta, y la captación de dióxido de carbono. Para permitir este intercambio las hojas poseen estructuras llamadas estomas, que consisten básicamente en una cámara que se abre al exterior de la hoja a través de una abertura regulable controlada por un par de células. El problema consiste en que cuando se abren los estomas ocurren simultáneamente los dos procesos, el intercambio gaseoso (captación de dióxido de carbono y eliminación de oxígeno) y evapotranspiración, lo que significa que la planta pierde agua para poder realizar la fotosíntesis. Pero en muchos casos conseguir agua resulta difícil para la planta, por lo que la fotosíntesis resulta un proceso costoso.

Por otra parte, la RuBisCO tiene una actividad enzimática doble: además de fijar el dióxido de carbono puede desarrollar una reacción competitiva, la fotorrespiración, en la que interviene la ribulosa difosfato y el oxígeno. Cuando hay luz y la concentración de oxígeno es alta, la fotorrespiración puede reducir en gran medida la eficacia de la fijación.

Hay dos grupos de plantas que han solucionado esos problemas de la fase oscura: las plantas C4 y las crasuláceas. En ambos casos, se ha modificado el paso de fijación del dióxido de carbono, reduciendo la importancia de la fotorrespiración.

Las plantas C4 están particularmente adaptadas a climas cálidos y secos. Estas plantas fijan el dióxido de carbono en las células del mesófilo (las mismas que realizan la fase luminosa) haciéndolo reaccionar con el fosfoenolpiruvato, lo que da lugar a oxalacetato. Este compuesto se transforma luego en malato, que es transportado hasta las células que rodean el haz conductor, más alejadas de la superficie. Allí se descarboxila, y el dióxido de carbono resultante reacciona con la ribulosa 1,5 difosfato, en una reacción catalizada por la RuBisCO. Las células del haz conductor están más protegidas de la luz, y en ellas la concentración de oxígeno es más baja que en el mesófilo, por lo que la fotorrespiración es menos importante.

Las crasuláceas han desarrollado un proceso bastante similar, pero en ellas la separación entre la entrada del CO2 y su fijación no es espacial, sino temporal: estas plantas, adaptadas a climas muy secos, abren sus estomas durante la noche, para reducir al mínimo posible la evapotranspiración. Sin embargo, en ese momento la célula no cuenta con la energía y el poder reductor necesario para llevar a cabo el ciclo de Calvin, por lo que el dióxido de carbono se fija sobre el fosfoenolpiruvato, dando lugar finalmente a malato, que es almacenado en la vacuola. A partir del amanecer, cuando la planta empieza a desarrollar la fase luminosa con los estomas cerrados, el malato se transforma en oxalacetato, que se descarboxila, y el CO2resultante es utilizado por la RuBisCO para producir 3 fosfoglicerato. En este caso se consigue también reducir la fotorrespiración, porque se mantiene baja la concentración de oxígeno gracias a que los estomas están cerrados.

Tanto la fotosíntesis C4 como el metabolismo ácido de crasuláceas son costosos para la planta en términos energéticos, pero este inconveniente se compensa sobradamente porque permiten un considerable ahorro de agua, que es el factor limitante del crecimiento de estas plantas en un clima cálido y seco como el que soportan.

El 3-fosfoglicerato formado es un compuesto oxidado, mucho más que las sustancias que habitualmente suele utilizar la célula. La conversión de este compuesto en un monosacárido necesita un aporte de poder reductor y de energía química (ATP) mediante dos reacciones sucesivas: una primera de activación, que da lugar a la formación de 1,3 difosfoglicerato con el gasto de una molécula de ATP, y otra de reducción, que consume NADPH y da lugar a la formación de gliceraldehído 3 fosfato.

El ciclo de Calvin

El gliceraldehído 3 fosfato es un monosacárido (una triosa), y puede ser utilizado como tal por la célula. La formación de esta molécula supone un gasto de ribulosa 1,5 difosfato. Para cerrar por completo el proceso es necesario que la célula recupere, además, este metabolito, lo que supone realizar un conjunto de reacciones químicas denominado ciclo de Calvin, común a todos los organismos autótrofos.

Para que el proceso esté equilibrado en cuanto a cantidad de materia, conseguir una molécula de gliceraldehido 3 fosfato requiere la incorporación de tres moléculas de dióxido de carbono. Esto supone el gasto de otras tres moléculas de ribulosa 1,5 difosfato y da lugar a la formación de seis moléculas de 3-fosfoglicerato y otras tantas de gliceraldehído 3 fosfato.

De esas seis moléculas de gliceraldehído, una es utilizada por la célula como producto neto de la fotosíntesis, mientras que las otras cinco se incorporan al ciclo de Calvin, para dar lugar a tres moléculas de Ribulosa 1,5 difosfato (tantas como se habían consumido) con el gasto de tres moléculas de ATP.
Como resultado final de la fase oscura, la célula incorpora tres moléculas de dióxido de carbono para producir cada molécula de gliceraldehído 3 fosfato, gastando para ello nueve moléculas de ATP y seis de NADPH procedentes de la fase luminosa.

    miércoles, 24 de febrero de 2010

    Fotosíntesis I: La fase luminosa

    La fotosíntesis es el conjunto de procesos metabólicos mediante los cuales las células fotoautótrofas captan la luz solar y transforman su energía electromagnética en energía química y poder reductor que la célula utiliza en procesos metabólicos, concretamente para transformar dióxido de carbono en moléculas orgánicas.

    Desde un punto de vista funcional, en la fotosíntesis se distinguen dos fases o etapas:
    • Fase luminosa: recibe este nombre porque necesita la captación de luz por parte de la célula. A su vez, incluye varios subprocesos:
      • Captación de la luz por parte de los fotosistemas.
      • Transporte electrónico dependiente de la luz
      • Fotofosforilación.
    • Fase oscura: se llama así porque puede ocurrir independientemente de la presencia de luz; solo necesita que la célula disponga de suficiente cantidad de energía en forma de ATP y de poder reductor en forma de NADPH+H+. Incluye, a su vez, varios subprocesos:
      • Fijación del dióxido de carbono.
      • Reducción del carbono fijado.
      • Formación neta de un monosacárido, con recuperación de las moléculas orgánicas utilizadas.
    Hablar de "fases" puede inducir a un error bastante común: los dos procesos no tienen por qué ocurrir separadamente, ni mucho menos uno detrás del otro. La relación entre ellos es más bien de dependencia, no de sucesión: las reacciones de la fase oscura necesitan los productos que se obtienen en la fase luminosa. Del mismo modo, el uso del término "fase oscura", por oposición a la fase luminosa, también es equívoco. De hecho, en la mayor parte de las plantas la fase luminosa y la fase oscura de la fotosíntesis ocurren simultáneamente, sobre todo durante el día, por el mero hecho de que la célula tiene dificultades para almacenar ATP y poder reductor. Solo un grupo de plantas especialmente adaptadas a la falta de agua, las crasuláceas, realizan la fase oscura durante la noche, precisamente para reducir la pérdida de agua por evapotranspiración.

    La fotosíntesis, en los organismos eucariotas, tiene lugar en el interior de los cloroplastos: la fase luminosa ocurre ligada a la membrana interna, que se continua con la membrana de los tilacoides, mientras que la fase oscura tiene lugar en el estroma del cloroplasto.

    Fase luminosa

    En esencia, la fase luminosa consiste en una transformación energética: la energía electromagnética de la luz se transforma, en primer lugar, en un flujo de electrones cuyo destino final es una coenzima de oxidación-reducción, el NADPH+H+. Por otra parte, una parte de la energía liberada en las transferencias de electrones a lo largo de una cadena transportadora se utiliza para generar un gradiente de protones a través de la membrana interna del cloroplasto. Este gradiente se acopla a la síntesis de ATP gracias a la acción de la ATP sintasa. Como el resultado final de la fase luminosa es la formación de ATP acoplada a la captación de energía luminosa, recibe también el nombre de fotofosforilación.

    Los elementos necesarios para llevar a cabo el proceso global de la fase luminosa son, según esto:
    1. Un mecanismo que transforme la energía luminosa en un flujo de electrones.
    2. Una sustancia que proporcione los electrones que van a moverse a lo largo del proceso.
    3. Una cadena de transporte electrónico, que genere el gradiente de protones.
    4. Una sustancia que reciba los electrones que se mueven durante el proceso.
    5. Un sistema que acople el flujo de protones a favor de gradiente a la síntesis de ATP.
    Las cadenas de transporte electrónico que intervienen en el proceso son similares, en su naturaleza, a las que participan en la fosforilación oxidativa. Lo mismo ocurre con la ATP sintasa. La sustancia que, finalmente, proporciona los electrones es el agua, y la que los recibe es el NADPH+H+, una coenzima de oxidación reducción bastante parecida al NADH+H+. El elemento más novedoso de todo el proceso es, por tanto, el sistema de captación y transformación de la energía luminosa.

    1. Captación y transformación de la energía luminosa

    La captación de energía luminosa consiste en la absorción de fotones por parte de alguna sustancia. Cuando observamos un objeto, su color corresponde a la luz que refleja, mientras que la radiación de otras longitudes de onda es "absorbida" pos sus moléculas. La energía captada por esa molécula, que recibe el nombre genérico de pigmento, no desaparece, sino que puede dar lugar a diferentes procesos físico-químicos. En la mayoría de los casos, el proceso consiste simplemente en el incremento de la temperatura del objeto, porque la radiación incrementa la agitación de las moléculas, pero son posibles otro tipo de fenómenos distintos, como la emisión de luz de otra longitud de onda (fluorescencia) o la emisión de electrones por parte de la molécula (efecto fotoeléctrico o fotovoltaico).

    El efecto fotoeléctrico consiste en que un fotón que incide sobre el átomo de una sustancia capaz de absorberlo transfiere una parte de su energía a un electrón, arrancándolo y dejando al átomo cargado positivamente. Se trata del mismo proceso que ocurre en las células fotovoltaicas, en las que la luz "arranca" electrones que son transportados a lo largo de un sistema conductor, con lo que la energía de su movimiento puede ser utilizada en forma de corriente eléctrica.

      En la fase luminosa de la fotosíntesis ocurre exactamente lo mismo: un fotón incide sobre una sustancia capaz de absorberlo (la clorofila u otro pigmento fotosintético), arrancándole un electrón. En este caso, el "sistema conductor" que recoge el electrón es una cadena transportadora, y el uso que se hace de la energía es, como se ha dicho, generar un gradiente de protones.

      En las células vegetales, las moléculas capaces de captar la luz y perder electrones como consecuencia de haber absorbido esta energía son los llamados pigmentos fotosintéticos. El más abundante de ellos es la clorofila, la sustancia que proporciona el color verde a la mayoría de los órganos vegetales. Junto a la clorofila aparecen en los orgánulos fotosintéticos otros pigmentos accesorios, como los carotenos, de color rojo, o las xantofilas, amarillas.

      La clorofila es una molécula formada por una estructura cíclica llamada porfirina y una cola hidrocarbonada de cadena apolar. El grupo porfirínico es una estructura cíclica en cuyo centro puede atrapar un átomo metálico. Esto es muy importante, porque los metales tienen mucha más facilidad que los no metales para ceder o ganar electrones, lo que les permite participar en reacciones redox.

      En el caso de la clorofila, el átomo metálico es de magnesio, pero existen otras sustancias con grupos porfirínicos que tienen unidos otros elementos: hierro en el caso de la hemoglobina, o cobre en el de la hemocianina. La cadena apolar de la clorofila es un alcohol de cadena larga, llamado fitol. Esta parte de la molécula se integra en la membrana, mientras que el grupo porfirínico permanece fuera de ella.

      Fotosistemas

      La clorofila no se encuentra aislada en la membrana del cloroplasto, sino junto a otros pigmentos y a varias proteínas formando estructuras que reciben el nombre de fotosistemas. El fotosistema es la unidad funcional del proceso de captación y transformación de la energía luminosa. Está compuesto por varias moléculas de clorofila y de otros pigmentos accesorios (carotenos, xantofilas...) y diferentes proteías, dispuestas formando una estructura cilíndrica integrada en la membrana. En el centro de dicha estructura hay una molécula especial de clorofila, llamada "centro reactivo", que es capaz de ceder electrones cuando recibe energía electromagnética.


      Los cloroplastos poseen dos tipos distintos de fotosistemas, que se distinguen entre sí tanto estructural como funcionalmente. Desde el punto de vista de su función, los fotosistemas se diferencian por la parte del espectro electromagnético que son capaces de utilizar: el fotosistema I también recibe el nombre de P700, porque tiene un máximo de absorción en torno a los 700nm, mientras que el fotosistema II (P680) presenta una absorción máxima a longitudes de onda en torno a los 680nm o menores, lo que signifca que necesita radiación de mayor energía. Esta diferencia de comportamiento se debe a que ambos fotosistemas poseen pigmentos ligeramente distintos.

      Cuando el fotosistema pierde electrones necesita recuperarlos, tomándolos de una sustancia reducida capaz de proporcionárselos. En las plantas, el fotosistema I puede recibir electrones desde dos donadores distintos: de él mismo, tras un flujo de electrones cíclico en el que los transportadores electrónicos acaban devolviendo el par electrónico al propio fotosistema, o del fotosistema II. En el caso del fotosistema II la sustancia que cede los electrones es el agua, que libera protones produciendo oxígeno en el proceso (fotosíntesis oxigénica).

      Las cadenas de transporte electrónico

      El cloroplasto posee, en realidad, una unica cadena de transporte electrónico, que se encuentra asociada a los dos tipos de fotosistemas. Los elementos más importantes de dicha cadena son los siguientes:
      • La feofitina es una molécula estructuralmente similar a la clorofila, excepto porque carece del átomo de magnesio característico. Está asociada a los fotosistemas, de los que recibe los electrones.
      • La plastoquinona es una molécula de pequeño tamaño, soluble en la membrana. Recibe los electrones de la feofitina y los cede al citocromo b6f.
      • El citocromo b6f es una proteína transmembrana, que parece actuar también como bomba de protones, por lo que sería el responsable de la creación del gradiente de protones para la fosforilación.
      • La plastocianina es una proteína pequeña y móvil, que puede ceder los electrones a diferentes compuestos, en función del fotosistema al que esté asociada.
        • Si forma parte del fotosistema II cede electrones al fotosistema I
        • Si forma parte del fotosistema I, cuando participa en el flujo cíclico de electrones, también los cede al fotosistema I.
        • Si forma parte del fotosistema I, pero participando en el flujo no cíclico, cede los electrones al NADP dando lugar a NADPH.
      Flujo cíclico y flujo no cíclico

      Los dos fotosistemas presentes en el cloroplasto pueden funcionar de modo diferente: si el fotosistema I actúa solo, la cadena de transporte electrónico acaba devolviendo los electrones al mismo fotosistema. A lo largo del proceso se genera un gradiente quimiosmótico de protones, que se acumulan en el espacio intermembranoso. Este gradiente puede ser aprovechado por la ATP sintasa para la producción de ATP.

      También puede ocurrir que los dos fotosistemas actúen coordinadamente, en lo que se conoce como "flujo no cíclico de electrones". En este caso, el fotosistema I cede los electrones a la cadena de transporte, pero la plastocianina acaba traspasándolos al NADP, con lo que lo transforma en NADPH que puede utilizarse como fuente de poder reductor. Sin embargo, esto deja al fotosistema I con un déficit electrónico, que debe ser eliminado. Esta es la función del fotosistema II: éste capta luz, excitándose y cediendo los electrones a la cadena transportadora. En este caso, la plastocianina cede los electrones al fotosistema I, dejando a éste de nuevo en condiciones de empezar a funcionar. Este conjunto de transferencias electrónicas se utiliza también para producir ATP mediante una fosforilación quimiosmótica.

      El déficit de electrones del fotosistema II se subsana de un modo diferente, ya que este complejo tiene la capacidad de romper moléculas de agua, arrancándoles electrones y traspasándolos a la clorofila que los había perdido. El producto final de la rotura de la molécula de agua es la formación de oxígeno molecular, por lo que el proceso es conocido como fotosíntesis oxigénica.

      Perspectiva evolutiva

      Desde el punto de vista de la historia evolutiva, los primeros organismos fotosintéticos se desarrollaron en un ambiente anóxico (carente de oxígeno), en el que  no debía resultar difícil conseguir moléculas donadoras de electrones (poder reductor), de modo que resultaba suficiente el funcionamiento del fotosistema I para producir ATP. La aparición de un segundo fotosistema, capaz de utilizar un mayor rango de longitudes de onda, proporcionó a esos organismos una mayor eficacia. El resultado, sin embargo, produjo grandes cambios ambientales a escala planetaria: el nuevo fotosistema utilizaba el agua como donante de electrones, produciendo oxígeno como residuo. La acumulación de este compuesto dio lugar a la revolución del oxígeno: en primer lugar, el caracter químico del entorno cambió para hacerse oxidante. En segundo lugar, el oxígeno se acumuló en la atmósfera hasta alcanzar la concentración actual (una quinta parte de los gases que la forman).

      Pero el oxígeno era tóxico para la mayor parte de los organismos, que utilizaban sobre todo compuestos químicos reducidos, susceptibles de reaccionar con este gas. La presencia de oxígeno provocó, indirectamente, la evolución de las grandes rutas metabólicas celulares: la aparición de la respiración celular, que aprovecha el oxígeno para aumentar el rendimiento energético de la degradación de los compuestos orgánicos y la propia fotosíntesis, ya que los organismos necesitaban ahora una fuente de poder reductor, mucho más escasa en un entorno oxidante.

      Este cambio químico también fue el responsable del origen de la eucariosis, mediante la simbiosis entre organismos procariotas incapaces de utilizar el oxígeno y otros que sí tenían esta capacidad. Por último, la considerable acumulación de oxígeno terminó por formar la capa de ozono, que incrementó la protección frente a la radiación ultravioleta, reduciendo la frecuencia de mutación que sufrían los organismos. Se considera que esta mayor estabilidad permitió, a su vez, la "radiación del Cámbrico", el mayor fenómeno de aparición de nuevas formas de vida que se ha producido en nuestro planeta.

        martes, 23 de febrero de 2010

        Generalidades sobre el anabolismo

        El anabolismo es el conjunto de reacciones químicas de carácter biosintético que tienen lugar en las células. Incluyen, básicamente, tres tipos de procesos:
        1. Formación de los monómeros que constituyen las macromoléculas orgánicas.
        2. Polimerización de los monómeros, para dar lugar a las macromoléculas.
        3. Formación de las estructuras celulares (reacciones de ensamblaje).
        En general, los procesos anabólicos requieren un aporte de energía química, en forma de ATP, y de poder reductor, proporcionado por el NADH+H+ o por alguna otra coenzima de oxidación reducción similar. En última instancia, estas coenzimas han podido recibir sus electrones del agua o de compuestos inorgánicos reducidos (organismos autótrofos) o de compuestos orgánicos reducidos (organismos heterótrofos).
          En general, estas reacciones requieren un aporte de energía química, que suele proceder del ATP, y de poder reductor, que las células obtienen de alguna coenzima de oxidación reducción, frecuentemente el NADH+H+. Los distintos tipos de organismos obtienen los electrones, en último término, de diferentes compuestos: los autótrofos obtienen electrones del agua o de otros compuestos inorgánicos reducidos mientras que los heterótrofos los consiguen de sustancias orgánicas reducidas.

          Los organismos heterótrofos, además de necesitar compuestos orgánicos reducidos para obtener sus electrones, son incapaces, en general, de sintetizar los monómeros a partir de sustancias inorgánicas, mientras que tanto las reacciones de polimerización como las de ensamblaje de componentes son comunes a todos los organismos.


          Autótrofos


          Heterótrofos


          Síntesis

          de monómeros a partir de moléculas inorgánicas


          Fotosíntesis


          Quimiosíntesis


          Síntesis

          de polímeros a partir de monómeros


          Rutas

          metabólicas comunes a todos los organismos


          Ensamblaje

          de componentes celulares

          En la práctica, el catabolismo y el anabolismo no están totalmente separados en la célula, sino que ocurren simultáneamente, y en general mezclados entre sí. Existen multitud de rutas, generalmente relacionadas con la reestructuración de las moléculas pequeñas, que pueden tener tanto un papel catabólico como anabólico, razón por la cual reciben el nombre de rutas anfibólicas. La más importante de todas ellas es el ciclo de Krebs, que constituye el elemento central de todo el metabolismo celular.

          martes, 16 de febrero de 2010

          La cadena de transporte electrónico y la respiración celular

          La segunda gran aportación metabólica de la mitocondria a las células eucariotas es la respiración celular, realizada gracias al transporte electrónico. El ciclo de Krebs, en realidad, no guarda relación con el oxígeno, sino que se trata de una ruta de oxidación anaerobia completa del acetil coenzima A. En ese proceso se produce una pequeña cantidad de energía (1GTP = 1ATP por cada molécula de acetil coA, dos por cada molécula de glucosa) pero, sobre todo, se desprende un buen número de protones y electrones (ocho en total por cada molécula de acetil coA) que van a parar a las coenzimas de oxidación reducción, especialmente al NADH+H+.

          El efecto de esto es que la célula se encuentra con un excedente de protones y electrones ubicados en moléculas que, por otra parte, poseen un considerable contenido energético en forma de poder reductor. La gran innovación metabólica de los organismos primitivos que dieron origen a las mitocondrias fue, sin duda, el desarrollo de un proceso que permite aprovechar el poder reductor de las coenzimas redox para generar la forma de energía química más utilizada por la célula: el ATP.

          El proceso por el que una forma de energía química (el potencial redox) se transforma en la otra (la energía almacenada en el enlace fosfato del ATP) incluye reacciones de oxidación reducción, bombeo de protones en contra de gradiente a través de la membrana mitocondrial interna y acoplamiento entre el paso de protones a favor de gradiente y la fosforilación del ADP.


          Visión teórica de la respiración celular

          El desarrollo del proceso de respiración celular en la mitocondria pone en juego tres "tipos" de energía química y los respectivos procesos relacionados con ellos:
          • El potencial redox: una sustancia reducida puede ceder sus electrones a otra en una reacción espontánea, siempre que la segunda tenga un potencial redox menor que la primera. La transferencia de electrones lleva aparejada un intercambio de energía, que puede ser utilizado en otros procesos. En la respiración celular las sustancias reducidas, con un elevado potencial redox, son las coenzimas de oxidación reducción generadas en el ciclo de Krebs y en otros procesos metabólicos, el NADH+H+ y el FADH2. Estas sustancias ceden sus electrones a una proteína de menor potencial redox, que a su vez los ceden a otro compuesto, iniciando una cadena de transferencia. Cada transferencia de electrones supone una liberación de energía que se utiliza en otro proceso. Finalmente, los electrones tienen que ser transferidos a una última sustancia que se los queda sufriendo una modificación química. En la respiración celular, el aceptor final de esos electrones es el oxígeno, que los utiliza para reaccionar con dos protones y generar una molécula de agua. Este es, precisamente, el punto en el que aparece el oxígeno en todo el proceso.
          • Energía asociada al gradiente de concentración: de acuerdo con el principio de equilibrio químico, si existen dos compartimentos separados por una membrana permeable o semipermeable que contienen una misma sustancia, la concentración de dicha sustancia tiende a igualarse en ambos compartimentos. Si la membrana no permite el paso de esa sustancia, se crea un gradiente quimosmótico, que es una forma de energía química, que tiende a restablecer el equilibrio. En la respiración celular la especie química que genera el gradiente son los protones, H+, procedentes en último término de las coenzimas de oxidación reducción. Algunas de las proteínas que transfieren electrones son capaces de utilizar la energía liberada en la reacción redox para enviar protones a través de la membrana interna de la mitocondria, en contra del gradiente de concentración, acumulándolos en el espacio intermembranoso.
          • Energía de enlace: la energía desprendida en un proceso químico puede ser utilizada en una reacción de formación de un enlace, pudiéndose recuperar cuando ese enlace se rompa. Cada tipo de enlace posee un valor característico de energía de formación y de hidrólisis. En la respiración celular la ATP sintasa (o ATPasa) es capaz de formar un enlace de alta energía entre el ADP y un fosfato inorgánico, dando lugar a ATP. La energía necesaria para formar dicho enlace procede del paso de los protones que se habían acumulado en el espacio intermembranoso de la mitocondria, precisamente a través de la propia ATP sintasa, que actúa también como transportador.
           Cadena de transporte electrónico

          La cadena de transporte electrónico de la mitocondria es un conjunto de complejos multienzimáticos, proteínas y otras sustancias liposolubles presentes en la membrana mitocondrial interna que pueden sufrir reacciones redox sucesivas, recibiendo electrones de un compuesto con mayor potencial redox que ellos, y cediéndolos a otra sustancia de menor potencial. Algunos de los complejos multienzimáticos tienen, además, actividad como "bomba de protones", lo que significa que son capaces de enviar estos iones a través de la membrana mitocondrial interna hacia el espacio intermembranoso.

          El proceso en sí es una transferencia, en la que los electrones pasan desde una sustancia inicial (el dador electrónico) hasta una final (el aceptor). La diferencia de potencial redox entre ambas sustancias es muy elevada, lo que supondría, en caso de ocurrir en un solo paso, la pérdida de gran cantidad de energía. En lugar de esto, lo que ocurre es que, al introducirse elementos intermedios y formar una cadena, los saltos energéticos en cada paso son menores, y la energía se aprovecha mejor.

          Los dadores electrónicos en la cadena de transporte mitocondrial son las coenzimas de oxidación reducción en su forma reducida: NADH+H+ y FADH2. Estos compuestos se comportan de forma diferente entre sí, y de hecho ceden sus electrones a complejos multienzimáticos distintos, lo que supone que permitann producir cantidades distintas de energía.
          • El NADH+H+ cede sus electrones al Complejo I (NADH reductasa), que actúa también como bomba de protones.
          • El FADH2 no es una sustancia soluble, sino que permanece firmemente unido a la enzima en la que se forma (cofactor). Cede sus electrones al complejo multienzimático en el que se ha formado, el llamado Complejo II (fumarato reductasa), que no es una bomba de protones.
          El resto de los elementos de la cadena son los mismos, pero esta diferencia  hace que el NADH permita el bombeo de 10 protones al espacio intermembranoso, mientras que el FADH solo hace que se bombeen 6, lo que se traduce en que se produzcan 3 moléculas de ATP por cada molécula de NADH que se incorpora a la cadena de transporte electrónico, pero solo 2 moléculas de ATP por cada una de FADH que lo hace.

          Los electrones del complejo I o del complejo II son transferidos a la ubiquinona, un transportador de pequeño tamaño y soluble en la membrana, que los traslada hasta el complejo II, el complejo citocromo bc1, que también es una bomba de protones, capaz de expulsar tres por cada par de electrones recibidos.

          El complejo citocromo bc1 cede un único electrón al citocromo c, una proteína pequeña y móvil que lo traslada al complejo citocromo c oxidasa. Cuando este complejo proteico recibe una pareja de electrones realiza varias funciones:
          • Transfiere otros tres protones hacia el espacio intermembranoso
          • Cede la pareja de electrones a una molécula de oxígeno
          • Cataliza una reacción química que hace reaccionar el oxígeno con el hidrógeno, para producir agua.
          El balance final de la cadena de transporte electrónico es la transferencia de 10 protones si los electrones proceden del NADH+H+ y de 8 si los electrones proceden del FADH2.

          Actividad de la ATP sintasa (ATPasa)

          Las membranas biológicas son impermeables a los iones, entre ellos a los protones, de modo que la diferencia de concentración de protones generada por la actividad de los transportadores electrónicos no puede compensarse espontáneamente. El paso de este tipo de especies químicas a través de la bicapa debe hacerse mediante un transportador específico de naturaleza proteica.

          En el caso de la respiración celular, el transportador de membrana que permite el paso de los protones a favor de gradiente de concentración es una enzima que recibe el nombre de ATP sintasa o ATPasa, porque es capaz de acoplar este transporte con la fosforilación del ADP. Este proceso, el acoplamiento entre el gradiente de concentración de protones y la síntesis de ATP se denomina hipótesis de acoplamiento quimiosmótico.

          La ATP sintasa es una enzima altamente conservada evolutivamente. Tiene dos componentes, uno de los cuales se integra en la membrana, mientras que la otra, que sobresale hacia la matriz mitocondrial, se encarga de la fosforilación.

          Balance energético de la respiración celular y comparación con la glucolisis

          El balance energético de la respiración celular es solo un valor teórico, aproximado, porque la utilización que hace la célula de los pasos intermedios en las rutas metabólicas implicadas es mucho más flexible de lo que indica su estudio teórico. En todo caso, para poder establecer una comparación entre el rendimiento entre la glucolisis y la respiración celular hay que tener en cuenta que ambas rutas ocurren en compartimentos celulares distintos y que el paso de sustancias de uno a otro no siempre es sencillo.

          En concreto, el NADH+H+ que se genera en el citoplasma no puede atravesar directamente las membranas mitocondriales, sino que lo hace mediante un sistema de "lanzaderas", un conjunto de reacciones químicas que consumen NADH+H+en el citoplasma para sintetizar una sustancia reducida, que sí puede atravesar las membranas, regenerando luego la coenzima en el interior de la mitocondria. Estos procesos, sin embargo, consumen energía: una molécula de ATP por NADH+H+ transferido.

          En realidad, lo más probable es que la célula no utilice frecuentemente estas lanzaderas, sino que emplee el NADH+H+en el citoplasma para otras reacciones, aunque para comparar el rendimiento energético de los procesos hay que considerar que el paso sí se produce. Teniendo esto en cuenta, el rendimiento energético de ambos procesos sería el siguiente:
          • Glucolisis (en el citoplasma): una molécula de glucosa produce...
            • Dos moléculas de ATP
            • Dos moléculas de NADH+H+ .
          • Respiración celular:
            • El paso del NADH+H+supone el gasto de un ATP por molécula (-2 ATP)
            • La descarboxilación oxidativa del piruvato proporciona dos NADH+H+.
            • En el ciclo de Krebs entran dos moléculas de acetil coA por cada glucosa, dando lugar a...
              • Dos moléculas de GTP
              • Seis moléculas de NADH+H+.
              • Dos moléculas de FADH2
            • La cadena de transporte electrónico produce
              • Treinta ATPs a partir del NADH+H+ (tres por cada molécula, por diez moléculas)
              • Cuatro ATPs a partir del  FADH2. 
          En resumen, la oxidación completa de una molécula de glucosa mediante la respriación celular produce un total de 36 moléculas de ATP (teniendo en cuenta la pérdida en la transferencia del  NADH+H+), mientras que la oxidación parcial de esa misma molécula en la glucolisis solo proporciona dos moléculas de ATP y otras dos de NADH+H+, que no pueden ser transformadas en ATP en el citoplasma. La diferencia de rendimiento entre ambos procesos se debe a:
          • La oxidación completa de la glucosa, sin necesidad de oxígeno, proporciona tanto poder reductor como energía mediante reacciones de descarboxilación oxidativa. Sin embargo, el aporte energético "directo" de estos procesos es pequeño: solo dos moléculas más de GTP (las que se producen en el ciclo de Krebs).
          • La transformación del potencial redox de las coenzimas de oxidación reducción en energía química es, sin duda, el proceso metabólico que mayor energía proporciona a la célula. La fosforilación oxidativa es, por tanto, la principal fuente energética de las células eucariotas heterótrofas.
          Desde un punto de vista evolutivo, la adquisición por parte de los primeros eucariotas de estos dos procesos metabólicos al incorporar las proto-mitocondrias a su estructura celular debió suponer una gran ventaja evolutiva, gracias a una enorme mejora del rendimiento energético de su metabolismo. A esto hay que añadir, además, que la mitocondria es también el orgánulo responsable de la  β-oxidación, el proceso de degradación de los ácidos grasos, que proporciona una molécula de NADH+H+ y otra de FADH2 y un acetil coA por cada dos átomos de carbono.

                El ciclo de Krebs

                De acuerdo con una de las teorías más aceptadas, la endosimbiótica, el origen de los eucariotas está estrechamente relacionado con la aparición de la fotosíntesis oxigénica y su principal consecuencia, la revolución del oxígeno. Según esta teoría, los primeros eucariotas procederían de la unión de dos organismos, uno de los cuales sería el antepasado de nuestras mitocondrias. Esta asociación habría dejado dos importantes "huellas metabólicas" en todos los organismos eucariotas: el ciclo de Krebs y la respiración celular, realizada en la cadena de transporte electrónico mitocondrial.

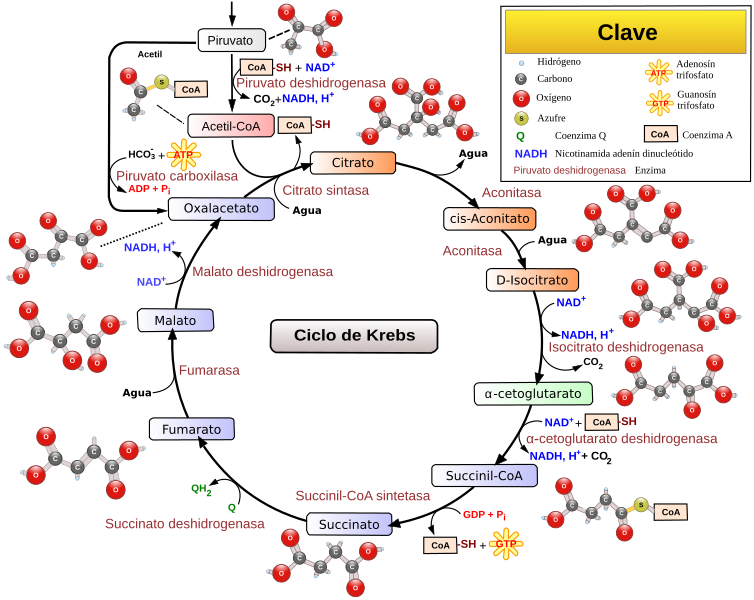
                El ciclo de Krebs es una ruta metabólica oxidativa que ocurre en la matriz mitocondrial, mediante la cual un compuesto orgánico de dos carbonos (el acetato) se degrada completamente para dar lugar a dióxido de carbono. En este proceso se produce tanto energía química en forma de un nucleótido trifosfato como poder reductor, así como un conjunto de sustancias químicas que la célula utiliza en diferentes procesos celulares.

                Relación entre la glucolisis y el ciclo de Krebs

                El producto final de la glucolisis es el piruvato, un compuesto de tres carbonos que se genera en el citoplasma de la célula. Esta sustancia penetra a la mitocondria a través de transportadores específicos. Una vez en la matriz mitocondrial sufre una reacción crítica para su incorporación al ciclo de Krebs: una descarboxilación oxidativa que lo transforma en acetato al tiempo que aprovecha la energía desprendida para convertirla en una molécula activada, mediante la unión con la coenzima A.

                La descarboxilación oxidativa, un tipo de reacción que se producirá de nuevo como parte del propio ciclo de Krebs, consiste en la eliminación de una molécula de dióxido de carbono, dos protones y dos electrones de la molécula inicial, en este caso el piruvato. La reacción resulta tan exotérmica que permite la formación de un enlace de alta energía, aunque en este caso no es un enlace entre grupos fosfato, sino entre un átomo de carbono del acetato y un átomo de azufre de una sustancia llamada coenzima A.
                La coenzima A es una molécula compleja derivada de la adenosina, la cisteína y el ácido pantoténico, una vitamina del grupo B. El grupo -SH de la cisteína puede formar un enlace de alta energía con un átomo de carbono de otra molécula, por lo que se utiliza muy frecuentemente para activar esas sustancias y facilitar que intervengan en reacciones químicas. En particular, las células utilizan frecuentemente el acetil coenzima A, resultado de la unión entre esta coenzima y el radical acetilo.

                El resultado de la descarboxilación oxidativa del piruvato es, por tanto, el acetil coenzima A, que es precisamente la sustancia que se incorpora al ciclo de Krebs. Además, los protones y los electrones arrancados del piruvato en esa reacción son cedidos al NAD+ para formar NADH+H+.

                Los ciclos metabólicos

                El metabolismo celular incluye un cierto número de rutas metabólicas de carácter cíclico, cuyo resultado final es la transformación de una sustancia en otra con la ayuda de un grupo de sustancias intermedias que, después de un recorrido completo de la ruta, se recuperan por completo. En general, esta visión resulta bastante simplista, porque en realidad las moléculas que forman parte del ciclo pueden "entrar" y "salir" de él, incorporándose desde otras vías metabólicas o siendo utilizadas por otras rutas, de modo que el carácter cíclico de la ruta es más teórico que práctico. De hecho, muchas de las sustancias que forman parte de los ciclos metabólicos son intermediarios de gran interés en otras rutas, por lo que la célula utiliza los ciclos tanto por su balance global como para poder sintetizar dichos intermediarios y utilizarlos en otros procesos metabólicos.

                El ciclo de Krebs es un buen ejemplo de esto, ya que algunas de las sustancias que participan en él son los productos finales o iniciales de otras rutas de gran importancia en el funcionamiento celular. Es esta versatilidad la que hace que el ciclo de Krebs sea el centro del metabolismo de toda la célula.

                Descripción e importancia del ciclo de Krebs


                La primera reacción del proceso consiste en la incorporación del acetil coenzima A, que se une al oxalacetato para formar una molécula con tres grupos áciedos. El ciclo se denomina también de los ácidos tricarboxílicos porque incluye varias moléculas con tres grupos ácidos cada una. Globalmente el ciclo de Krebs consiste en la transformación de una molécula de acetato en dos moléculas de dióxido de carbono mediante dos descarboxilaciones oxidativas acopladas a la síntesis de NADH+H+. A lo largo del proceso también se producen otras dos reacciones de oxidación que permiten la transferencia de electrones a coenzimas de oxidación reducción y una fosforilación a nivel de sustrato, de modo que finalmente se genera poder reductor (tres moléculas de NADH+H+ y una molécula de FADH2) y energía química en forma de GTP (guanosina trifosfato), que puede transferir su energía muy fácilmente a un ATP.


                El ciclo de Krebs ocupa, además, un lugar central en el metabolismo celular por la relación que existe entre sus componentes y otras rutas metabólicas:

                • El acetil coenzima A es el producto final de la degradación de glúcidos, lípidos y proteínas. Este producto se introduce en el ciclo de Krebs, por lo que esta ruta es la fase final de todo el catabolismo celular.
                • Algunos de los compuestos que se forman en las reacciones intermedias del ciclo actúan como precursores en el anabolismo de otras familias de compuestos:
                  • El citrato es uno de los precursores de la síntesis de lípidos.
                  • El α-oxoglutarato es precursor de la síntesis de bases nitrogenadas.
                  • El oxalacetato es uno de los precursores de la síntesis de glucosa.
                  • Tanto el α-oxoglutarato como el oxalacetato son precursores de la síntesis de la mayoría de los aminoácidos y, por tanto, de las proteínas.
                  • El succinil coenzima A es precursor de la síntesis de diferentes grupos nitrogenados.

                domingo, 14 de febrero de 2010

                Glucolisis y fermentación

                El ambiente en el que evolucionaron los seres vivos primitivos carecía de oxígeno. La aparición de este compuesto, ocurrida hace unos 3.000 millones de años como consecuencia de la evolución de la fotosíntesis oxigénica, supuso una verdadera catástrofe para los organismos que existían en aquella época, porque el oxígeno resultaba tremendamente tóxico para ellos. Algunos consiguieron adaptarse a las nuevas condiciones, incluso utilizando el nuevo compuesto como un elemento básico de su metabolismo, y de ellos proceden todos los organismos aerobios actuales. Sin embargo, todos los seres vivos actuales conservamos, como un resto evolutivo, algunas rutas metabólicas que ya existían antes de la evolución del oxígeno y que han permanecido como elementos centrales de nuestro funcionamiento: la glucolisis y las fermentaciones.

                Glucolisis

                La glucolisis es, seguramente, la ruta metabólica más antigua que se conserva, como lo prueba su presencia en todos los seres vivos y la naturaleza química de las reacciones que tienen lugar en ella. Se trata de un conjunto de procesos que hacen posible la degradación oxidativa de la glucosa (y de otros monosacáridos que pueden transformarse en ella) en ausencia de oxígeno. Sin embargo, en estas condiciones la oxidación de los monosacáridos es solo parcial, dando lugar a compuestos orgánicos que no están totalmente oxidados.
                La producción de energía en la fosforilación ocurre exclusivamente mediante fosforilación a nivel de sustrato, mientras que los electrones y los protones que se arrancan de la glucosa a lo largo del proceso acaban siendo transferidos al NAD+ para dar lugar a NADH+H+. El compuesto final que se obtiene como resultado de la degradación es el piruvato:

                La glucolisis tiene lugar en el citoplasma de las células eucariotas, circunstancia que tiene su interés, porque apoya la teoría de que los eucariotas evolucionaron a partir de procariotas anaerobios; de hecho, el oxígeno resulta tóxico en el citoplasma, y la célula lo envía rápidamente hacia la mitocondria, donde puede aprovecharse.

                Descripción del proceso

                Desde el punto de vista químico pueden distinguirse varias etapas distintas en la glucolisis, mediante las cuales se van "preparando" paulatinamente los diferentes compuestos para facilitar la reacción global:

                1. Fase de activación: requiere el aporte de energía en forma de ATP, que se recuperará en reacciones posteriores. La activación permite que los compuestos activados reaccionen con mayor facilidad. Esta "inversión energética" recuperable se da en muchos procesos metabólicos.
                  1. Transformación de la glucosa en glucosa 6-fosfato: La glucosa reacciona con una molécula de ATP, fosforilándose y liberando ADP. En realidad no se trata de un proceso de activación energética (aunque también sea necesario para eso), sino que tiene un motivo diferente desde el punto de vista de la lógica celular. La membrana plasmática permite el paso de loa glucosa mediante difusión facilitada a través de transportadores específicos. Esto haría imposible la acumulación de glucosa dentro de la célula, ya que ese transporte es bidireccional y a favor de gradiente. La modificación química de la glucosa, concretamente la fosforilación, impide que la glucosa 6-fosfato salga de la célula (porque no existe transportador para ella). Toda la glucosa intracelular está fosforilada.
                  2. Transformación de la glucosa 6-fosfato en fructosa 6-fosfato: Es una reacción de isomerización espontánea y reversible, que transforma la forma aldosa en la cetosa. La glucosa 6-fosfato es una sustancia que puede participar en varias rutas metabólicas, mientras que la fructosa 6-fosfato solo interviene en la glucolisis. La formación de este compuesto permite, por lo tanto, regular la cantidad de glucosa que se metaboliza y, en consecuencia, la cantidad de energía que se va a producir mediante esta ruta.
                  3. Transformación de la fructosa-6-fosfato en fructosa 1,6-difosfato: Con esta nueva fosforilación se consigue que el compuesto alcance la energía interna suficiente para sufrir la siguiente reacción.
                2. Rotura de la fructosa 1,6-difosfato: La molécula se rompe en dos mitades del mismo tamaño, gliceraldehído 3-fosfato y dihidoxiacetona fosfato. Ambos compuestos son isómeros entre sí (son las formas fosforiladas de las dos triosas que existen), y de hecho se transforman la una en la otra en una reacción espontánea y reversible. Este equilibrio es fundamental en la continuación de la ruta, ya que solo el gliceraldehído 3-fosfato es metabolizado. Sin embargo, a medida que dicha sustancia se va consumiendo, la dihidroxiacetona fosfato se transforma en gliceraldehído, de acuerdo con el principio de equilibrio químico.
                3. Oxidación y fosforilación a nivel de sustrato: La última fase de la glucolisis consiste en una srie de reacciones que, conjuntamente, suponen su oxidación parcial acoplada a la fosforilación a nivel de sustrato que sintetiza más ATP del que se había consumido durante la activación. Los electrones y protones separados en el proceso se ceden a una coenzima de oxidación-reducción.
                  1. Transformación del gliceraldehído 3-fosfato en 1,3-difosfoglicerato: se trata de una oxidación tan exotérmica que  basta para unir un grupo de fosfato inorgánico al grupo ácido recién formado. Los electrones y los protones separados de la molécula de gliceraldehído 3-fosfato son cedidos al NAD+ para formar una molécula de NADH+H+ (dos por cada molécula de glucosa).
                  2. Fosforilación de ADP y formación de 3-fosfoglicerato: El 1,3-difosfoglicerato reacciona con el ADP dando lugar a las primeras moléculas de ATP que se producen en la ruta metabólica. Como cada molécula de glucosa ha permitido la formación de dos moléculas de 1,3-difosfoglicerato en esta reacción se recupera la energía invertida en la activación del monosacárido.
                4. Recuperación de la energía proporcionada para la activación: El 3-fosfoglicerato conserva aún el grupo fosfato que se había unido durante la fase de activación. El final de la glucolisis permite la recuperación de este ATP, proporcionando por tanto un balance energético positivo. Para que esta reacción sea posible, es necesario que antes el 3-fosfoglicerato sufra ciertas modificaciones quimicas.
                  1. Transformación del 3-fosfoglicerato en 2-fosfoglicerato: El grupo fosfato cambia de posición dentro de la molécula, lo que facilita las reacciones posteriores.
                  2. Deshidratación del 2-fosfoglicerato: Da lugar a un compuesto llamado fosfoenolpiruvato.
                  3. Formación de piruvato y ATP: El fosfoenolpiruvato reacciona con el ADP transfiriéndole el grupo fosfato. El producto final de la glucolisis es el piruvato.
                Balance energético de la glucolisis: Cada molécula de glucosa que interviene en la glucolisis necesita utilizar dos moléculas de ATP para activarse por completo. Su hidrólisis y oxidación posterior acaba proporcionando cuatro moléculas de ATP, por lo que el balance neto de la glucolisis es de una ganancia de dos ATPs por molécula de glucosa. Además, se sintetizan también dos moléculas de NADH+H+ en la oxidación del gliceraldehído 3-fosfato.

                El compuesto final de la degradación de la glucosa mediante esta vía es el piruvato, una molécula de tres átomos de carbono que aún está parcialmente reducida, por lo que aún sería posible extraer más energía química de ella. El destino del piruvato, sin embargo, depende de la naturaleza de la célula y de las condiciones en las que ésta se desarrolle: las células aerobias que disponen de oxígeno van a seguir aprovechando la energía contenida en esa molécula, gracias a la respiración celular, pero las células que no disponen de oxígeno, o que son incapaces de utilizarlo, no pueden obtener más energía de esta molécula.

                Fermentaciones

                Las fermentaciones son, igual que la glucolisis, rutas metabólicas características de la falta (o insuficiencia) de oxígeno ambiental. En esas condiciones, el NADH+H+ no puede ser utilizado por la célula para transformarlo en ATP, sino que su función celular consiste simplemente en recibir los protones y los electrones desprendidos en otras reacciones celulares. Una vez conseguido esto, su papel se agota, y lo que la célula necesita es regenerar el NAD+, cuya síntesis es costosa, para seguir realizando su metabolismo.

                Algo similar ocurre con el piruvato. Mientras que las células aerobias pueden seguir degradándolo y obteniendo la energía que aún contiene, si no hay oxígeno disponible es una molécula que resulta "inútil" para la célula, por lo que su destino final es su eliminación.

                Las fermentaciones van a dar solución a ambos problemas cuando la célula se encuentra en un ambiente anaerobio: por una parte, van a ceder los electrones y los protones del NADH+H+ al piruvato (o a una sustancia relacionada con él), regenerando así la coenzima que necesitan para seguir funcionando, y por otra van a sintetizar un derivado del piruvato, que incluya esos protones y esos electrones, que va a ser eliminado como sustancia de desecho.

                Evolutivamente, por tanto, las fermentaciones constituían la fase final de la degradación anaerobia de la glucosa, en la que la célula se liberaba de sus residuos y regeneraba sus coenzimas. En la actualidad, la mayor parte de los organismos que llevan a cabo fermentaciones lo hacen como adaptación a condiciones de falta de oxígeno, ya sea porque escasea en el ambiente en el que se encuentran, ya sea porque el metabolismo de la propia célula es tan activo que no recibe la cantidad suficiente de este gas para mantenerlo (por ejemplo, las células musculares en condiciones de un esfuerzo muy intenso no llegan a recibir un aporte de oxígeno suficiente para quemar completamente la glucosa, y se ven obligadas a degradar el piruvato mediante la fermentación láctica).

                Existen diferentes tipos de fermentación, que dan lugar a la transformación del piruvato en distintos compuestos:
                • La fermentación láctica transforma el piruvato en lactato. Es la que se produce en las células musculares cuando escasea el oxígeno y la que llevan a cabo algunas bacterias.
                • La fermentación alcohólica transforma el piruvato en etanol, después de eliminar una molécula de dióxido de carbono (descarboxilación). Es característica de muchas levaduras.
                • La fermentación acética transforma el piruvato en acetato, también tras una descarboxilación. Es propia de bacterias del género Acetobacter.

                Uso industrial de las fermentaciones

                El hombre ha aprovechado las fermentaciones desde la antigüedad como proceso para transformar ciertos alimentos y aprovechar algunas características de los productos transformados. Por ejemplo, todas las bebidas alcohólicas son productos de la fermentación alcohólica de diferentes vegetales, llevadas a cabo por la levadura Saccharomyces cerevisiae. La levadura aprovecha parte de los azúcares presentes en el vegetal de partida (cebada en el caso de la cerveza, uva en el del vino...) produciendo alcohol y, en algunos casos, dióxido de carbono (si hay suficiente oxígeno). Otras fermentaciones aprovechadas industrialmente incluyen, por ejemplo, la producción de yogur (fermentación láctica) o la de vinagre (fermentación acética), entre muchas otras.

                  viernes, 12 de febrero de 2010

                  Introducción al metabolismo

                  La célula se define como la unidad de estructura y funcionamiento de los seres vivos lo que significa, entre otras cosas, que es capaz de realizar por sí misma las funciones que caracterizan a todos los organismos y que se utilizan en la definición tradicional de vida: nutrición, relación y reproducción.

                  Se puede definir la función de nutrición de una célula como el conjunto de procesos mediante el cual la célula adquiere y utiliza los nutrientes que necesita para su funcionamiento habitual, y elimina las sustancias de desecho que han sido producidas durante ese funcionamiento. Eso incluye los siguientes procesos:
                  • Adquisición de nutrientes del medio extracelular, a través de la membrana:
                    • Entrada de moléculas (en la mayoría de los casos en los organismos pluricelulares)
                      • Por difusión a través de la membrana
                      • A través de transportadores específicos
                    • Entrada de líquidos: pinocitosis
                    • Entrada de partículas: endocitosis
                  • Metabolismo: utilización de los nutrientes por parte de la célula
                    • Obtención de energía
                    • Elaboración de las sustancias que necesita la célula
                  • Eliminación de desechos al medio extracelular, a través de la membrana
                  Los nutrientes que necesita una célula eucariota, en general, incluyen agua, iones, monosacáridos, aminoácidos y ácidos grasos. Los residuos producidos por las células como consecuencia de su actividad metabólica son, fundamentalmente, dióxido de carbono y  sustancias nitrogenadas no utilizables.

                  El metabolismo celular

                  El metabolismo es el conjunto de reacciones químicas y procesos físico-químicos que tienen lugar en el interior de un ser vivo. La célula contiene una gran cantidad de moléculas, en cantidades distintas, la mayor parte de las cuales se transforman en otras mediante diversas reacciones químicas que ocurren en la célula de forma coordinada. Un conjunto de reacciones quimicas encadenadas, tales que el producto de una de ellas es utilizado como sustrato de la siguiente, y que ocurren coordinadamente en la célula constituye una ruta metabólica.

                  Todas las rutas metabólicas celulares están reguladas, lo que significa que están sometidas a control por parte de la célula para que su velocidad se adapte a sus necesidades. Este control se ejerce sobre enzimas clave dentro del proceso, mediante los mecanismos de regulación enzimática habituales.

                  El metabolismo de una célula consta de un gran número de rutas metabólicas interrelacionadas entre sí, formando un esquema químico muy complejo pero que funciona de un modo totalmente coordinado.
                  Un esquema como el anterior, que no es más que un resumen simplificado del metabolismo celular, puede interpretarse como si fuera el "plano del metro" de una ciudad. Las rutas metabólicas serían algo así como las rutas del metro, conectadas entre sí en ciertas "estaciones", representadas por compuestos clave. A lo largo del tiempo en cada "estación" se incorpora a la ruta un cierto número de moléculas; algunas siguen toda la ruta hasta su final, pero otras pueden cambiar en alguna "estación intermedia". Esas estaciones intermedias son sustancias que juegan un papel importante en el metabolismo celular, y suelen ser conocidas como intermediarios metabólicos.


                  Panorámica general del metabolismo

                  Las rutas metabólicas pueden clasificarse en dos grandes categorías: las rutas catabólicas (en su conjunto se denominan catabolismo) se encargan, en general, de degradar moléculas orgánicas proporcionando a la célula moléculas más pequeñas, que en muchos casos pueden ser utilizadas por otras rutas, energía química y poder reductor. Las rutas anabólicas (que constituyen el anabolismo) son, por el contrario, rutas que dan lugar a moléculas de mayor tamaño, partiendo de intermediarios metabólicos y utilizando para ello energía y poder reductor producidos en otras reacciones químicas. Por último, hay algunas rutas que sirven tanto para proporcionar energía como para formar nuevas moléculas que servirán en los procesos anabólicos de la célula. En ese caso se habla de rutas anfibólicas, siendo el ciclo de Krebs la más representativa de todas ellas.


                  Las rutas metabólicas celulares se producen en tres niveles de complejidad molecular:
                  1. Interconversión entre moléculas complejas y sus monómeros. Este nivel incluye la rotura de polímeros (polisacáridos, proteínas o ácidos nucleicos) para convertirse en sus monómeros (catabolismo) y la polimerización de los monómeros (monosacáridos, aminoácidos, nucleótidos) para formar polímeros (anabolismo).
                  2. Interconversión entre moléculas orgánicas sencillas (intermediarios metabólicos). Estas reacciones no son propiamente anabólicas o catabólicas, sino que la célula las utiliza indistintamente para conseguir energía (por degradación de esos intermediarios metabólicos) o para sintetizar nuevas moléculas que vaya a necesitar a partir de otras diferentes que ya tenía.
                  3. Paso de moléculas orgánicas sencillas a moléculas inorgánicas (catabolismo) o síntesis de moléculas orgánicas sencillas a partir de moléculas inorgánicas (anabolismo). Este último tipo de reacciones se da exclusivamente en los organismos autótrofos.
                  Visión general del catabolismo

                  La mayor parte de los organismos, tanto autótrofos como heterótrofos, comparten un mismo conjunto de rutas metabólicas catabólicas, lo que supone un apoyo indirecto a la hipótesis de que todos tienen un origen común. Asimismo, el catabolismo rinde los mismos tipos de productos en todos los organismos:
                  • Energía química, generalmente en forma de ATP, obtenida sobre todo en reacciones de degradación oxidativa.
                  • Poder reductor, es decir, algún tipo de compuesto químico que es capaz de ceder electrones (reducir) a otras sustancias orgánicas. La sustancia que más frecuentemente realiza esta función en los organismos es el NADH+H+, esto es, la forma reducida del nicotín adenín dinucleótido. Este tipo de compuestos, por otra parte, pueden utilizarse también para dar lugar a ATP en procesos de fosforilación oxidativa.
                  • Precursores metabólicos, pequeñas moléculas que intervienen en otras reacciones químicas, especialmente anabólicas.
                  Las reacciones de degradación oxidativa consisten en la transferencia de electrones de un compuesto a otro, en un proceso que supone una reducción de su energía interna, una parte de la cual corresponde a los electrones transferidos. Las reacciones de oxidación se producen siempre en paralelo a reacciones de reducción, ya que los electrones perdidos por el primer compuesto deben ser captados por otro. Algunas de estas reacciones son tan exotérmicas que proporcionan energía suficiente para formar un enlace entre dos grupos fosfato, transformando ADP y un fosfato inorgánico en ATP, mientras que otras ceden los electrones a alguna coenzima de oxidación reducción (como el NAD+) que, a su vez, pueden cederlos a otros compuestos en reacciones químicas diferentes. En los seres vivos, la transferencia de electrones se produce casi siempre por parejas, y  en general va acompañada de una transferencia de protones en la misma dirección.

                  En cuanto a los precursores metabólicos, en realidad la célula utiliza básicamente unas cuantas sustancias, que forman parte simultáneamente de varias rutas metabolicas, para elaborar con ellas la mayor parte de los compuestos que necesita. Los más importantes de esos compuestos son los siguientes:
                  Glucolisis

                  Ciclo
                  de Krebs
                  Glucosa
                  6 fosfato
                  Acetil
                  coenzima A
                  Fructosa
                  6 P
                  α-oxoglutarato
                  (α-cetoglutarato)
                  Triosas
                  fosfato
                  Succinil
                  coenzima A
                  3
                  fosfoglicerato
                  Oxalacetato

                  Fosfoenolpiruvato Ruta
                  de las pentosas fosfato
                  Piruvato

                  Ribulosa
                  5 fosfato


                  Eritrosa
                  fosfato

                  Visión general del anabolismo

                   Los seres vivos necesitan tomar de su entorno materia y energía. En cuanto a la materia, tanto el carbono como el nitrógeno son esenciales para el metabolismo de todos los organismos, y ambos elementos deben ser captados, en última instancia, de compuestos inorgánicos.

                  Los organismos se clasifican según el modo en el que consiguen sus componentes y su energía. En función del proceso que utilizan para conseguir el carbono, los organismos se clasifican en:
                  • Autótrofos: obtienen el carbono a partir de CO2, bien sea de la atmósfera, bien disuelto en el agua.
                  • Heterótrofos: consiguen el carbono a partir de moléculas orgánicas procedentes de otros organismos.
                  Por otra parte, según el procedimiento que utilizan para obtener su energía los organismos pueden clasificarse en:
                  • Fototrofos: consiguen energía para sintetizar ATP a partir de la radiación electromagnética.
                  • Quimiotrofos: utilizan exclusivamente reacciones químicas para sintetizar ATP


                  Fotótrofos Quimiótrofos
                  Autótrofos

                  Consiguen
                  el carbono para su metabolismo a partir del CO2 y la
                  energía a partir de la luz

                  Plantas, bacterias fotosintéticas y algunos protistas
                  Consiguen
                  el carbono para su metabolismo a partir del CO2 y la
                  energía a partir de reacciones químicas

                  Bacterias quimiolitotrofas

                  Heterótrofos

                  Consiguen
                  el carbono a partir de compuestos orgánicos y la energía
                  a partir de la luz

                  Algunas bacterias
                  Consiguen
                  el carbono y la energía a partir de compuestos orgánicos

                  Animales, hongos, muchas bacterias y protistas
                    El anabolismo incluye el conjunto de todas las reacciones biosintéticas que ocurren en la célula. Se pueden distinguir tres tipos de reacciones:
                    1. Formación de los monómeros que la célula utiliza en otros compuestos.
                    2. Formación de los polímeros a partir de los monómeros.
                    3. Formación de estructuras celulares (ensamblaje de los componentes).
                    En general, estas reacciones requieren un aporte de energía química, que suele proceder del ATP, y de poder reductor, que las células obtienen de alguna coenzima de oxidación reducción, frecuentemente el NADH+H+. Los distintos tipos de organismos obtienen los electrones, en último término, de diferentes compuestos: los autótrofos obtienen electrones del agua o de otros compuestos inorgánicos reducidos mientras que los heterótrofos los consiguen de sustancias orgánicas reducidas.


                    Autótrofos

                    Heterótrofos

                    Síntesis
                    de monómeros a partir de moléculas inorgánicas

                    Fotosíntesis

                    Quimiosíntesis


                    Síntesis
                    de polímeros a partir de monómeros

                    Rutas
                    metabólicas comunes a todos los organismos

                    Ensamblaje
                    de componentes celulares

                    Producción de ATP

                    En todos los procesos metabólicos se intercambia energía química. Algunas reacciones químicas son espontáneas, y liberan energía que se aprovecha en otras o se pierde, mientras que otras reacciones metabólicas necesitan un aporte externo de energía. La célula necesita realizar tanto reacciones espontáneas como no espontáneas, por lo que es preciso que cuente con un sistema que pueda proporcionarle energía para éstas últimas. Esto es posible gracias al acoplamiento químico entre reacciones distintas.

                    Se dice que dos procesos químicos están acoplados cuando un producto de uno de ellos es utilizado como sustrato por el otro. El aprovechamiento de la energía liberada en una reacción para llevar a cabo otra reacción no espontánea no es más que un caso particular de acoplamiento químico, en el que el producto aprovechado es la energía liberada en la primera reacción.

                    Las células de todos los organismos utilizan un intermediario químico para acoplar energéticamente diferentes reacciones. Se trata del ATP (Adenosina Trifosfato), un nucleótido formado por adenina, ribosa y tres grupos fosfato encadenados. Los enlaces entre grupos fosfato requieren mucha energía para formarse, pero también liberan una gran cantidad de energía al romperse. Los seres vivos han desarrollado la capacidad de acoplar estas reacciones tanto a reacciones exotérmicas (que permiten fosforilar el ADP, es decir, crear un ATP a partir de la adenosina difosfato y un grupo fosfato inorgánico) como a reacciones endotérmicas hidrolizando el ATP en ADP y fosfato.

                    Esta versatilidad del ATP, la posibilidad de utilizarlo como "portador" de energía en multitud de procesos diferentes hacen que se le considere la moneda universal de energía de todas las células.

                    Dada la importancia del ATP en el funcionamiento de la célula, resulta también fundamental que la célula disponga de mecanismos para llevar a cabo la fosforilación, es decir, la formación del enlace entre el ADP y el fosfato inorgánico. Todas las células disponen de dos mecanismos distintos para poder llevar adelante este proceso clave de su funcionamiento: la fosforilación a nivel de sustrato y la fosforilación quimiosmótica.

                    La fosforilación a nivel de sustrato consiste en el acoplamiento químico entre dos reacciones, siendo una de ellas precisamente la síntesis de ATP. Normalmente ocurre porque ambas reacciones están catalizadas por la misma enzima, o por el mismo complejo enzimático, por lo que la energía liberada por la primera es utilizada directamente en la segunda reacción.

                    La fosforilación quimiosmótica es bastante más compleja. En este caso, el acoplamiento se produce entre dos procesos de diferente naturaleza: la síntesis de ATP, catalizada por una enzima llamada ATP sintasa (o simplemente ATPasa), y por otra el paso de una especie química a favor de gradiente de concentración a través de una membrana. La especie química en cuestión son los protones que, debido a que poseen carga eléctrica, no pueden atravesar las membranas biológicas por difusión, sino que deben hacerlo a través de un transportador de membrana. El acoplamiento quimiosmótico entre la síntesis de ATP y el transporte de protones se produce porque la ATP sintasa es, a la vez, el transportador que permite el paso de los protones.

                    Sin embargo, para que se produzca el paso de los protones a través de una membrana es necesario que exista un gradiente de concentración, es decir, que la concentración de protones a ambos lados de la membrana sea diferente. Y eso necesita un sistema que acumule los protones a un lado de la membrana lo que, a su vez, necesita energía.

                    La generación del gradiente de protones ocurre en las células utilizando la energía procedente de reacciones de oxidación reducción espontáneas. Como se ha comentado, la mayor parte de las redox biológicas suponen tanto transferencia de electrones como de protones. La generación del gradiente de protones necesario para sintetizar ATP se produce gracias a la actividad de un conjunto de proteínas, que reciben el nombre de cadenas transportadoras de electrones, que utilizan la energía de ciertas reacciones redox espontáneas para bombear protones a uno de los lados de una membrana biológica. Así pues, los elementos necesarios para sintetizar ATP mediante un proceso quimiosmótico son los siguientes:
                    1. Una membrana biológica que separe por completo dos compartimentos celulares, entre los cuales generar el gradiente quimiosmótico de protones.
                    2. Una sustancia de elevado poder reductor, capaz de ceder protones y electrones en un proceso espontáneo.
                    3. Un conjunto de proteínas insertadas en la membrana biológica, que transporten los electrones hasta una sustancia final de mucho menor poder reductor (cadena de transporte electrónico) bombeando al mismo tiempo protones a uno de los lados de la membrana.
                    4. La ATP sintasa (o ATPasa), también integrada en la membrana, que permita el paso de los protones a favor de gradiente de concentración entre los dos compartimentos, acoplando ese flujo a la síntesis de ATP.
                    La fosforilación  quimiosmótica se produce en dos procesos de importancia fundamental para la vida:
                    • La fosforilación oxidativa, común a todos los organismos aerobios.
                      • La membrana en la que ocurre el proceso es la membrana mitocondrial interna, que separa el espacio intermembranoso (donde se acumulan los protones) y la matriz mitocondrial. En los procariotas el proceso ocurre en la membrana plasmática.
                      • Las sustancias reducidas que proporcionan los protones y los electrones son coenzimas de oxidación-reducción (NADH+H+, FADH2), que se han producido en reacciones de degradación oxidativa de compuestos orgánicos.
                      • La cadena transportadora de electrones incluye varios complejos multienzimáticos y algunos transportadores solubles en la membrana, y acaba cediendo los electrones y algunos protones al oxígeno para formar agua.
                    • La fotofosforilación es característica de los organismos fotosintetizadores.
                      • El proceso ocurre en la membrana interna del cloroplasto, que separa el espacio intermembranoso e intratilacoidal (donde se acumulan los protones) del estroma del cloroplasto. En los procariotas, es la membrana plasmática.
                      • Las sustancias reducidas que proporcionan los protones y electrones son los pigmentos fotosintéticos (como la clorofila), aunque en los organismos que realizan la fotosíntesis oxigénica proceden, en último extemo, del agua.
                      • Las cadenas de transporte electrónico incluyen los fotosistemas que captan la luz y diferentes transportadores, tanto fijos como solubles en membrana. Finalmente ceden sus electrones y algunos protones a coenzimas de oxidación reducción (como el NADPH+H+).