Mostrando entradas con la etiqueta Sistemática. Mostrar todas las entradas

miércoles, 8 de diciembre de 2010

Las plantas: sistemática, origen y evolución - I

Según el sistema taxonómico más común, las Plantas constituyen uno de los cinco grandes reinos en los que se clasifican los organismos. De acuerdo con este criterio, el Reino Plantae comprende todos los organismos pluricelulares formados por células eucariotas que presentan pared celular, siempre que dichos organismos presenten, al menos, cierto grado de especialización en sus células. Con carácter general, estos organismos obtienen su energía de la luz solar por medio de la fotosíntesis (son, por tanto, fototrofos) y el carbono a partir de compuestos inorgánicos (dióxido de carbono), lo que las identifica como autótrofos. En general, además, utilizan órganos especializados (las raíces) para absorber del entorno otros nutrientes esenciales, tales como el agua, el nitrógeno y los minerales que necesitan.

Esta circunscripción deja fuera ciertos grupos que tradicionalmente se han relacionado con las plantas, concretamente las algas pluricelulares pero sin diferenciación tisular. También tiene el inconveniente de no reflejar con propiedad las relaciones filogenéticas de las "plantas superiores" con otros grupos evolutivamente relacionados con ellas.
En la figura anterior se recogen las relaciones filogenéticas entre las plantas y los taxones relacionados con ellas. La circunscripción de Whittaker (el sistema de los cinco reinos) se corresponde con la denominación de reino Plantae, e incluye las Embryophyta (plantas terrestres) y las algas verdes no clorófitas, mientras que la visión más evolutiva es la que considera como taxón natural el llamado "clado" Primoplantae, que incluye tanto organismos unicelulares como pluricelulares, que tienen en común la adquisición de cloroplastos como consecuencia de una endosimbiosis primaria con una cianobacteria. El resto de los organismos fotosintetizadores, todos ellos protistas, quedarían fuera de este grupo, porque habrían adquirido los cloroplastos mediante una endosimbiosis secundaria con algún tipo de alga.

Evolución y filogenia de las plantas

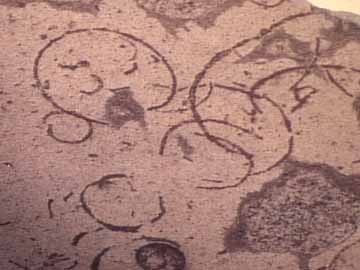
Estromatolitos fósiles, primeros fotosintetizadores
Los primeros organismos fotosintetizadores debieron ser similares a las actuales cianobacterias, y aparecieron hace unos 3.500 millones de años. Los estromatolitos son las evidencias fósiles de estas formas de vida. Aunque, evidentemente, no se trata de plantas, su aparición tiene importancia porque posteriormente guardan relación con el origen de los cloroplastos de las células vegetales. La fotosíntesis de las cianobacterias es oxigénica, y su desarrollo propició el mayor cambio ambiental que ha sufrido la atmósfera de nuestro planeta: la revolución del oxígeno, entre cuyas consecuencias evolutivas se cuentan la aparición de los eucariotas (posiblemente como respuesta adaptativa a la presencia de oxígeno en el medio) y la radiación del Cámbrico, que habría sido posible gracias a la acumulación de ozono y al efecto protector de este gas frente a la radiación ultravioleta.

Grypania, posiblemente el  primer tipo de alga.
Las primeras evidencias fósiles de organismos eucariotas es de hace unos 2.700 millones de años, mientras que los primeros organismos eucariotas fotosintéticos conocidos pudieron surgir hace unos 2.100 millones de años. Se trata de Grypania, posiblemente un alga primitiva. La adquisición de los cloroplastos por estos organismos primitivos debió ocurrir mediante un proceso de endosimbiosis, consistente en que un organismo engloba dentro de su membrana a otro organismo completo, tras lo cual el conjunto se reproduce conjuntamente y evoluciona como una única unidad. El organismo englobado va simplificando su genoma, hasta que en un momento dado deja de ser autónomo. Este proceso debió ser bastante frecuente en las etapas primitivas de la evolución, repitiéndose en la adquisición de las mitocondrias, en el origen primitivo de los cloroplastos (endosimbiosis primaria) y en la adquisición de posterior de cloroplastos por parte de organismos diferentes de ese fotosintetizador primitivo (endosimbiosis secundarias y terciarias).
Endosimbiosis primaria y secundaria en la evolución de las plantas
Las primeras evidencias fósiles de plantas terrestres datan de hace unos 470 millones de años, aunque algunos datos de ADN sugieren que las primeras plantas terrestres pudieron aparacer bastante antes, hace unso 700 millones de años. La colonización de este nuevo entorno supuso la necesidad de adaptar una característica de las algas, la alternancia de generaciones, a un medio mucho más seco.

La alternancia de generaciones es una característica común a todos los vegetales, aunque resulta particularmente patente en las algas: un organismo diploide, el esporofito, sufre meiosis dando lugar a esporas haploides. Estas células no se fusionan inmediatamente, sino que dan lugar a organismos completos, de carácter haploide, llamados gametofitos. Los gametofitos producen, mediante mitosis, células reproductivas haploides (los gametos) que terminan por fusionarse para dar lugar a un nuevo esporofito diploide. En las algas ambos tipos de organismos (esporofito y gametofito) son similares en cuanto a duración de la vida, de modo que ninguna de las dos formas predomina sobre la otra.

Los primeros fotosintetizadores terrestres debieron ser similares a las cianobacterias, a las algas y a los modernos líquenes. Las primeras plantas realmente adaptadas a las condiciones del medio terrestre fueron los Briofitos, grupo que incluye las hepáticas y los musgos. Este grupo se caracteriza porque la forma predominante, la que resulta aparente a simple vista, es el gametofito (haploide), lo que supone un problema para la colonización de medios terrestres, puesto que requiere una mayor cantidad de agua que el esporofito. Esta característica, junto a la ausencia de tejidos vasculares que permitan el transporte de agua por el interior de la planta, han determinado que los Briofitos sean siempre organismos de pequeño tamaño y que su distribución ecológica esté limitada a ambientes muy húmedos. Los briofitos tampoco tienen los órganos típicos del resto de las plantas terrestres, raíz, tallo y hojas, sino que se mantienen unidos al sustrato mediante rizoides.
Los briofitos fueron las primeras plantas terrestres

La adaptación de las plantas a la vida terrestre les supuso tener que superar dificultades derivadas de las condiciones ambientales fuera del agua: la mayor intensidad de radiación provoca más daños por mutación (radiación ultravioleta), pero también daña la fotosíntesis e incrementa el calor que la planta debe soportar. La sequedad ambiental hace que el suministro de agua sea esporádico. Por otra parte, la extrema sequedad del aire incrementa la pérdida de agua del interior de la planta por evaporación. Por último, la fertilización y la dispersión de los nuevos organismos requiere agua, que no está disponible en el medio terrestre.


Cooksonia, primer fósil de planta vascular conocido
Los organismos poiquilohídricos (algas, cianobacterias, briofitos) se adaptan a estas condiciones manteniendo un equilibrio hídrico con su entorno, lo que supone depender permanentemente de que el ambiente sea húmedo. Cuando el ambiente pierde humedad, las plantas se deshidratan y permanecen en estado "latente", hasta que la humedad ambiental se recupera. Sin embargo, hace unos 425 millones de años se produjo la aparición de una serie de características que permitieron a las plantas que las presentaban adoptar un estilo de vida homoiohídrico, caracterizado por la capacidad de mantener constante la cantidad de agua de su medio interno, independientemente de la humedad ambiental. Esto supuso la aparición de las plantas vasculares, de las cuales Cooksonia es el primer tipo conocido.

Las características de las plantas vasculares que les permiten adaptarse completamente a un medio más seco son las siguientes:
  • Capacidad de controlar la pérdida de agua, gracias a la aparición de una cutícula impermeable.
  • Presencia de válvulas regulables que facilitan la fotosíntesis: los estomas.
  • Capacidad para recuperar el agua perdida gracias a la presencia de un tejido conductor especializado, el xilema.
  • Adopción de una estructura tridimensional característica, que minimiza la superficie expuesta y proporciona soporte a la planta.
  • Desarrollo de tejidos con espacios intercelulares que maximizan el intercambio gaseoso durante la fotosíntesis.
Asimismo, la aparición de las plantas vasculares también supuso un cambio en la alternancia de generaciones: tanto en los pteridofitos como en los espermatofitos (se denominan conjuntamente traqueofitos) predomina la generación diploide, el esporofito, sobre el gametofito.

Los pteridofitos fueron el primer tipo de plantas vasculares
No está clara la relación filogenética que existe entre las briofitas (musgos y hepáticas) y las traqueofitas, el resto de las plantas terrestres, pero parece ser que las carofíceas, uno de los grupos de algas verdes, podrían haber sido el antepasado común de estos dos grupos.

martes, 7 de diciembre de 2010

Clasificación y filogenia de los Eucariotas

La Taxonomía tradicional distingue cuatro reinos con organización eucariótica: Protista, Plantae, Animalia y Fungi, si bien se plantea, en esta clasificación, un problema fundamental: los protistas no son un grupo filogenéticamente homogéneo, sino un grupo parafilético, de modo que se definen por exclusión, incluyendo en ellos a todos los organismos que no encajan en ninguno de los otros tres grupos. Esta es la razón de que Adl y otros investigadores han propuesto una clasificación menos jerarquizada, en la distinguen varios grupos sin atribuirles una categoría sistemática clara, pero más ajustada a la presunta filogenia del grupo
Cavalier-Smith ha propuesto una posible secuencia evolutiva que refleja esa misma clasificación básica de los Eucariotas:

En cualquier caso, el sistema que sigue siendo considerado válido es el primero, que determina la existencia de cuatro reinos eucariotas.

Protistas:
Este grupo incluye todos aquellos organismos que no pueden catalogarse con propiedad dentro de ninguno de los otros tres reinos, por lo que apenas si tienen características en común. En realidad, solo se puede considerar como carácter general el hecho de ser unicelulares, y esto considerando como tales los organismos formados por una única célula o por la asociación de células similares no diferenciadas (colonias).

Entre los protistas se encuentran organismos de varios grupos biológicos monofiléticos, no relacionados entre sí, así como organismos que están relacionados filogenéticamente con alguno de los otros tres reinos de eucariotas. La filogenia propuesta para los protistas es la siguiente:
  • Primoplantae o Archaeplastida: se caracterizan por la presencia de cloroplastos que, evolutivamente, habrian sido adquiridos por endosimbiosis de una cianobacteria. Incluyen dos grupos de protistas, las algas rojas (Rhodophyta), que presentan clorofilas a y d, y los glaucófitos, un grupo de algas de agua dulce cuyos cloroplastos son similares a los de las cianobacterias. Asimismo, se considera que son el origen evolutivo de las plantas verdes.
  • Chromista y Alveolata son dos grupos que también presentan cloroplastos, aunque en este caso parece ser que los adquirieron por simbiosis con un alga roja (por tanto, mediante endosimbiosis secundaria, porque el alga roja, a su vez, era el fruto de otra endosimbiosis). Los cromistas incluyen todas las algas que tienen clorofilas a y c, así como algunos grupos sin colorear. Los alveolados, por su parte, comprenden tres grupos de lo que antiguamente se denominaba protozoos: Ciliophora, con cilios dispuestos en filas, Apicomplexa, parásitos que solo presentan estructuras locomotrices en sus gametos, y Pyrrhophyta, también llamados dinoflagelados, muchos de los cuales presentan cloroplastos y mayoritariamente marinos. El nombre de alveolados se refiere a la presencia de una capa de alveolos por debajo de la membrana, característica de todos ellos.
  • Excavata, denominados antiguamente flagelados. No está claro que sea un grupo monofilético. Algunos excavados son heterótrofos, mientras que otros presentan cloroplastos, obtenidos mediante una simbiosis secundaria con un alga verde. La mayoría de ellos presentan varios flagelos y un aparato digestivo ventral característico. Algunos grupos han perdido las mitocondrias, aunque poseen algún tipo de estructura que realiza sus funciones. Se distinguen tres grupos principales: Metamonada, en su mayoría anaerobios y simbiontes de animales, que juegan un importante papel en la degradación de la celulosa, Euglenozoa, mayoritariamente de vida libre, y Percolozoa, que en su mayoría pueden alternar entre una forma de vida flagelada y otra ameboide.
  • Rhizaria es un grupo que se ha definido a partir de datos moleculares. En su mayoría tienen forma ameboide y casi todos tienen mitocondrias con crestas tubulares. Comprende tres grupos: Cercozoa, que se alimentan mediante filopodios, prolongaciones citoplasmáticas, similares a pequeñas espinas, con filamentos de actina en su interior; Foraminifera, que poseen un protoplasma diferenciado en dos zonas. La más superficial, el ectoplasma, posee un citoesqueleto de quitina con pequeñas perforaciones que les dan el nombre (forámen = orificio). Presentan también prolongaciones citoplasmáticas en forma de pseudópodos y un esqueleto externo de caliza que facilita su fosilización, lo que ha hecho de ellos uno de los grupos de microfósiles mejor conocidos; Radiolaria, por último, presenta también un protoplasma dividido en endoplasma y ectoplasma, además de un esqueleto silíceo que también ha permitido su fosilización y su uso como fósiles guía.
  • Amoebozoa: incluyen la mayor parte de los organismos que se mueven mediante seudópodos formados por corrientes citoplasmáticas. Se distinguen dos grandes grupos, sin categoría sistemática, los conosea, que agrupan a las Archamoebae, un grupo que ha perdido sus mitocondrias y a los Mixomycota, tradicionalmente relacionados con los hongos porque alternan una forma de vida ameboide con la formación de un cuerpo fructífero y los lobosea, amebas con lobopodios, seudópodos gruesos y redondeados. Este grupo artificial incluye Tubulinea, las amebas más características, y Flabellinea, que en lugar de emitir seudópodos forma una zona citoplasmática más clara que marca el avance de la célula.
  • Opisthokonta: El filum incluye organismos que presentan un flagelo en su parte posterior, avanzando por delante del mismo. Esta característica se presenta en un grupo de protistas, los Choanoflagellata, pero también, al menos en alguna etapa de la vida, en hongos y animales, lo que relaciona filogenéticamente estos tres grupos. Los coanoflagelados presentan un pedúnculo por el que se unen al sustrato, una loriga o vaina que les envuelve y una especie de copa de cuyo fondo nace el fagelo y que es, en realidad, un anillo de microvellosidades.

lunes, 6 de diciembre de 2010

Sistemática: acercamiento a la clasificación de los seres vivos

El estudio de los seres vivos ha llevado, desde la antigüedad, a la descripción de una serie de parecidos y diferencias entre organismos distintos. Linneo sistematizó estas comparaciones, utilizándolas para establecer un sistema complejo de categorías biológicas, ordenadas jerárquicamente, que trataban de relacionar los diferentes seres vivos entre sí en función del grado de parecido que guardan, dando origen a la Taxonomía.

La Teoría de la Evolución propuesta por Darwin dio una nueva luz al Sistema Natural ideado por Linneo: teniendo en cuenta una de las conclusiones fundamentales del darwinismo, el origen común de todos los seres vivos, las categorías taxonómicas elaboradas por Linneo pasaron a reflejar grados de relación filogenética entre los organismos. El estudio de las relaciones filogenéticas entre organismos diferentes constituye el origen de la Sistemática.

En la actualidad, Taxonomía y Sistemática son dos ramas de la Biología estrechamente relacionadas entre sí, porque las diferentes categorías que se usan para clasificar a los seres vivos deben reflejar lo más fielmente posible la relación de parentesco evolutivo que existe entre los organismos.

Sin embargo, las relaciones entre ambas no son sencillas: mientras la Taxonomía enfatiza las características observables de un conjunto de organismos, tendiendo a establecer categorías basadas en características de los organismos que existen en la actualidad, la Sistemática presta más atención a las relaciones filogenéticas entre los seres vivos, de modo que puede dar lugar al establecimiento de agrupamientos, en general menos rígidos que las categorías taxonómicas, que relacionen entre sí organismos diferentes, pero con un pasado evolutivo común. Esto provoca la convivencia de varios sistemas de clasificación diferentes, según se preste más atención a unos o a otros aspectos. De este modo, establecer la circunscripción de un taxón (es decir, identificar a todos los tipos de organismos que forman parte del mismo) es un problema bastante complejo.


La Sistemática en la actualidad

Desde los años 90' del pasado siglo, los seres vivos se clasifican en tres grandes dominios, diferenciados entre sí por características bioquímicas y genéticas: Archaea, Bacteria y Eucariota. Estos tres grupos habrían evolucionado por separado a partir de un único antepasado común, denominado Urcariota, poco diferenciado genética y bioquímicamente.

Los dos primeros de estos dominios, Archaea y Bacteria, presentan un nivel de organización procariota, mientras que el tercero presenta células eucariotas.

Las Archeas

Las arqueas o arqueobacterias son un grupo de microorganismos con organización procariota similares en forma y tamaño a las bacterias, de las que, sin embargo, se diferencian en varias características: algunos de sus genes y rutas metabólicas son más parecidas a las de eucariotas, entre ellas las enzimas relacionadas con la transcripción y la traducción, mientras que otras de sus características son totalmente exclusivas, como la presencia en su membrana de lípidos en los que las cadenas hidrocarbonadas se unen al glicerol mediante enlaces éter.


Arqueas Bacterias Eucariotas
Pared Pseudopeptidoglicano
Algunas solo
proteínas
Peptidoglicano

Plantas: celulosa
Fungi: quitina
Animales: ninguna
Membrana Cadenas
hidrocarbonadas ramificadas unidas al glicerol mediante enlaces
éter
Las cadenas de
ácidos grasos están unidas al glicerol mediante enlaces
éster
Genoma ADN único,
circular y cerrado. Presencia de plásmidos
ADN
fragmentado en varios cromosomas

Morfología

Las arqueas poseen una considerable variedad morfológica, siendo en general bastante parecidas a las bacterias, si bien uno de sus grupos, las Crenarchaeotas, presenta morfologías muy poco habituales: organismos lobulados irregularmente, filamentos extraordinariamente estrechos como los de Sulfolobus (menos de 0,5μm) e incluso células con forma perfectamente cuadrada y aplanada, como Haloquadratum walsbyi. El mantenimiento de estas formas probablemente se deba tanto a la pared bacteriana como a la existencia de un citoesqueleto procariota, característica poco conocida que también las diferenciaría de las Bacterias.


Estructura celular

En general, la estructura de las células de las arqueas es bastante similar a la que presentan las Bacterias, en particular las gram positivas (carecen de membrana externa y de espacio periplásmico), si bien su membrana plasmática presenta peculiaridades que las diferencian por completo de los otros dos dominios biológicos, ya que los lípidos que las forman son totalmente distintos de los fosfolípidos, los componentes casi universales del resto de las membranas biológicas. Las características diferenciales de estos lípidos son las siguientes:
  • La unión entre el glicerol y los lípidos se establece mediante enlaces éter, en vez de mediante enlaces éster. El enlace éter es más estable que el éster, lo que puede contribuir a explicar la supervivencia de las arqueas en ambientes extremos.
  • En lugar de los ácidos grasos, las cadenas hidrocarbonadas que forman parte de los lípidos de membrana son isoprenoides de cadena larga, generalmente ramificadas.
 Metabolismo

Atendiendo al modo en que pueden conseguir la energía y la materia de su entorno, las arqueas pueden ser fotótrofos, litótrofos y organótrofos, si bien ningún organismo de este grupo posee fotosíntesis oxigénica, y los fotótrofos son incapaces, además, de fijar carbono inorgánico de su ambiente.
Tipo 
nutricional
Fuente
de energía

Fuente
de carbono

Ejemplos

Fotótrofos
(no oxigénicos)

Luz
solar

Compuestos
orgánicos

Halobacterium

Litótrofos

Compuestos
inorgánicos

Compuestos
inorgánicos / Fijación del carbono

Methanobacterium

Organótrofos

Compuestos
orgánicos

Compuestos
orgánicos / Fijación del carbono

Sulfolobus


Muchas de las rutas metabólicas básicas presentes en los otros dos dominios aparecen también en las arqueas, aunque en algunos casos con ciertas modificaciones. Así, estos organismos utilizan una forma modificada de la glucolisis (la ruta de Entner-Doudoroff) y un ciclo de Krebs parcial o total. Los autótrofos, por su parte, utilizan también una forma modificada del ciclo de Calvin o, en otros casos,  el ciclo de Krebs inverso, la reducción del acetil-CoA o una ruta metabólica específica de este grupo.

Sin embargo, además de estas rutas, que probablemente evolucionaron de forma muy temprana, lo que explica su presencia en todos los organismos, las arqueas presentan también vías metabólicas absolutamente características, que les permiten ocupar nichos ecológicos extraños o extremos. Entre ellas destacan las metanógenas, como Methanobacterium, propias de entornos anaerobios y que utilizan el dióxido de carbono como aceptor de electrones en la oxidación del hidrógeno. La bioquímica de estas bacterias es muy peculiar, y utiliza enzimas exclusivas y compuestos aceptores de electrones que no son utilizados con este propósito en el resto de los organismos.

Ecología

Las arqueas están ampliamente distribuidas, ocupando una enorme variedad de hábitats de todo tipo, hasta el punto de que se estima que podrían llegar a representar el 20% de la biomasa del planeta. Entre esos hábitats se encuentran muchos con condiciones más o menos normales, pero también otros en los que las condiciones son poco propicias para el desarrollo de la vida, lo que llevó a considerar, erróneamente, que todas las arqueas eran extremófilas.

Desde el punto de vista fisiológico se distinguen cuatro tipos de organismos extremófilos: acidófilos, alcalófilos, termófilos y halófilos. Muchos de estos organismos son de gran interés biotecnológico como fuentes de enzimas capaces de resistir condiciones extremas.

Muchas arqueobacterias juegan importantes papeles ecológicos en el ciclo del nitrógeno (asimilación y fijación del nitrógeno, oxidación del amoniaco) y en el del azufre, como Sulfolobus. En el ciclo del carbono son de particular interés las metanógenas, porque contribuyen a la degradación de la materia orgánica, lo que también les confiere un considerable valor biotecnológico.

En cuanto al aprovechamiento biotecnológico de estos organismos, ya se ha comentado su utilidad en procesos industriales como fuente de enzimas, destacando la ADN polimerasa que se utiliza en las técnicas de PCR. También es fundamental su papel en los procesos de depuración de aguas residuales, en los que se utilizan fundamentalmente las metanógenas. Este grupo también tiene un considerable interés en minería. 

Por último, hay muchas posibilidades de encontrar antibióticos muy interesantes en los halófilos.

Origen, evolución y sistemática

Las arqueas son, probablemente, organismos muy antiguos. Se han encontrado restos fósiles que se podrían atribuir a este grupo en sedimentos de hace unos 3.500 millones de años, aunque como la morfología no es distintiva es difícil asegurar que se trate realmente de este tipo de organismos. Fósiles químicos, es decir, restos de lípidos característicos de este grupo, parecen, en todo caso, corroborar esta suposición.

Se piensa que, evolutivamente, las bacterias fueron el primer grupo en diferenciarse, y más tarde lo hicieron las arqueas y los eucariotas, lo que explicaría la similitud bioquímica más estrecha entre estos dos grupos.  El último antepasado común de bacterias y arqueas habría sido un termófilo. Sin embargo, es una cuestión aún debatida, y algunos autores defienden que las arqueas serían un grupo escindido de las bacterias.

La clasificación de las arqueas es complicada, y está en revisión constante. Generalmente se considera que existen dos grandes filos, a los que les correspondería la categoría de reinos, Euryarchaeota y Chrenarchaeota, en los que se incluirían la mayor parte de las especies, mientras que se ha propuesto también la creación de dos pequeños grupos para incluir organismos bastante peculiares: Nanoarchaeota y Korarchaeota.