lunes, 28 de noviembre de 2011

Evolución prebiótica y origen de la vida I: evolución molecular

La aparición de las primeras formas de vida sobre la Tierra es uno de los problemas que más ha interesado a los biólogos desde hace siglos y, con toda seguridad, seguirá siendo un problema abierto aún durante mucho tiempo. La falta de registros fósiles de épocas tan antiguas hace que el estudio de este proceso tenga que basarse exclusivamente en evidencias indirectas y extrapolaciones, que dejan mucho margen de error posible y permiten múltiples interpretaciones.

Aunque siguen siendo muchos los hechos que se desconocen, se empiezan a tener algunas ideas relativamente claras. Por una parte, algunas evidencias geológicas han retrasado la aparición de la vida hasta un momento más antiguo de lo que se creía hace algunas décadas, hasta hace unos 3.900 millones de años de modo que el periodo de evolución prebiótica, más largo, resulta más verosimil. También se ha mejorado mucho en el conocimiento de las condiciones geológicas y ambientales de nuestro planeta, y de la geoquímica de cometas y asteroides, que pudieron tener un papel importante en la aparición de las primeras moléculas orgánicas.

Algunos aspectos de la evolución prebiótica van siendo establecidos poco a poco, mientras que otros siguen siendo objeto de profundas controversias. Así las cosas, el panorama actual está configurado por una amplia gama de hipótesis, en su mayor parte apoyadas por una evidencia relativamente débil.

En cualquier caso, es ampliamente aceptado que la evolución prebiótica tuvo que cumplir ciertos requisitos:
  1. Se trata de un proceso evolutivo, regido por los principios de la Selección Natural.
  2. Necesariamente, esta evolución tuvo que atravesar ciertos pasos, cuyos resultados observamos en los organismos actuales:
    1. Formación de las moléculas orgánicas.
    2. Adquisición, por parte de algunas de esas moléculas, de funciones características de la vida: capacidad catalítica, capacidad para almacenar y transmitir información.
    3. Asociación coordinada de esas moléculas y de las funciones realizadas por ellas en sistemas "discretos", es decir, separados de su entorno.
    4. Aparición de las primeras protocélulas.

La Tierra primitiva

En la actualidad conviven dos grandes tendencias teóricas relacionadas con el posible origen de la vida en nuestro planeta: las que consideran que todo el proceso tuvo lugar en la Tierra y las que opinan que cuerpos exteriores (meteoritos o cometas) pudieron jugar un papel significativo en la formación o evolución, al menos, de las sustancias químicas necesarias para la aparición de la vida. En cualquier caso, para ambos grupos de teorías sigue siendo fundamental conocer las condiciones ambientales que se daban en nuestro planeta cuando empezaron a sintetizarse los primeros compuestos orgánicos.
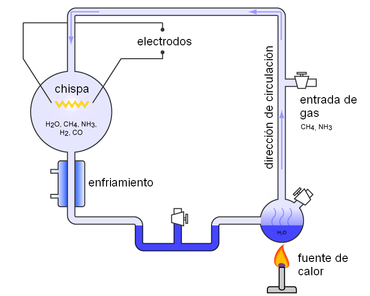
Los modelos originales acerca de la síntesis abiótica de sustancias orgánicas (el clásico experimento de Miller y Urey que consiguió sintetizar aminoácidos en presencia de una fuente de energía a partir de sustancias inorgánicas) suponían que la composición de la atmósfera primitiva de la Tierra debió ser muy reductora. Con los datos que se poseen en la actualidad, parece bastante improbable que esto fuera realmente así. Más bien se considera que el vapor de agua debió ser el componente mayoritario de esa atmósfera primitiva, junto a una considerable cantidad de dióxido de carbono. Sin embargo, sí que parece posible que existiera también una cierta cantidad de metano (entre 10 y 100 ppm). La presencia de este gas es particularmente importante, porque sus reacciones desencadenadas por la luz pueden dar lugar a la formación de HCN y H2CO, compuestos que pueden intervenir en la síntesis de aminoácidos, glúcidos y ácidos nucleicos. Esta composición debió ir variando paulatinamente durante algunos cientos de millones de años: la descomposición del metano dio lugar a hidrógeno, que escaparía de la atmósfera, y por reacción con otras sustancias, a CO2. Este gas, por su parte, iría desapareciendo de la atmósfera a medida que se incorporaba a la composición de las rocas carbonatadas. En cuanto a la presencia de oxígeno, este gas se forma en ciertas reacciones que pudieron tener lugar en una atmósfera como la descrita, pero no pudo acumularse en la atmósfera debido a que reaccionaría con las sustancias reducidas emitidas por los volcanes.

Por otra parte, el clima en la era Arcaica (periodo geológico durante el cual se produjo la evolución prebiótica) fue también un factor fundamental para la aparición de la vida. Durante esta época la temperatura tuvo que ser, forzosamente, suficientemente elevada para permitir las reacciones de síntesis orgánicas. Esta necesidad se enfrenta al llamado "problema del Sol joven frío": por aquel entonces nuestro Sol emitía un 30% menos de energía que en la actualidad, lo que habría provocado una temperatura excesivamente baja, congelando todo el planeta e impidiendo la evolución química. Posiblemente, la temperatura pudo mantenerse dentro de los márgenes apropiados para la vida gracias al efecto invernadero producido, en primer lugar, por los gases presentes en la atmósfera original (CH4, CO2) y, a medida que éstos se iban consumiendo, por la acción de los organismos vivos, en particular de los metanógenos.

La aparición de las primeras moléculas orgánicas

Uno de los principales puntos de discusión en el ámbito del origen de la vida es la formación de las primeras sustancias orgánicas. Existen dos grandes tendencias: la de quienes suponen que tales moléculas se originaron en nuestro planeta, posiblemente en entornos muy concretos caracterizados por temperaturas elevadas, presencia de agua y minerales y energía química abundante, y la de quienes piensan que esas condiciones son muy improbables, y que tales sustancias pudieron llegar a la Tierra como consecuencia del choque de cometas o meteoritos. Hay evidencias indirectas a favor de ambas hipótesis: las surgencias oceánicas, por ejemplo, son buenos candidatos para la formación de compuestos orgánicos, y se han encontrado sustancias de esta naturaleza (aminoácidos, glúcidos, nucleótidos...) en cometas y meteoritos. Por otra parte, nada indica que las dos ideas sean incompatibles entre sí, lo que ha favorecido que últimamente se vaya imponiendo una teoría "sincrética".

De acuerdo con esta idea, la vida podría haber surgido en un tipo de ambientes muy concreto, denominado "FAIR" (Fire And Ice Reactors). Un entorno FAIR estaría constituido por una zona de lagunas intermareales, situada en una región subpolar, suficientemente cálida como para no estar permanentemente congelada, pero suficientemente fría como para permitir, periódicamente, el contacto entre agua y hielo. En esa zona debería producirse mezcla entre agua dulce, por ejemplo procedente de la lluvia, y agua marina, para dar lugar a un gradiente iónico que permitiera la solubilización de los fosfatos y ciertos tipos de reacciones químicas.

Resultaría necesaria también la presencia de fumarolas y aguas termales, que proporcionarían un flujo abundante de minerales, entre ellos arcillas. Por último, la caída en la zona de meteoritos o cometas podría representar otra fuente de materia orgánica.

Podría parecer que se trata de condiciones tan restrictivas que hacen muy improbable la existencia de tales zonas. Sin embargo, incluso en la actualidad pueden encontrarse ámbitos como estos FAIR en zonas como la península de Kamchatka, Alaska o Islandia, y cabe suponer que en el pasado, sin la competencia colonizadora de otros organismos, pudieron resultar mucho más frecuentes.

Los procesos de síntesis de biomoléculas debieron dar lugar a varios tipos de sustancias que luego serían necesarias para dar lugar a los primeros seres vivos:
  • Aminoácidos: diferentes estudios demuestran que en las condiciones ambientales descritas se pudieron llegar a formar hasta diez de los aminoácidos presentes en las proteínas. Curiosamente, esos mismos aminoácidos se han podido encontrar en la composición de los meteoritos y son, además, los que forman parte del código genético primitivo que aún puede rastrearse en los organismos actuales. Este fenómeno, denominado triple convergencia, sugiere que los primeros organismos pudieron utilizar solo esos aminoácidos en sus proteínas.
  • Nucleótidos: la síntesis abiótica de las bases nitrogenadas es posible en las condiciones ambientales que se supone que existían en la era Arcaica, pero la formación de nucleótidos parece ser un proceso bastante más difícil, por lo que se ha sugerido que las primeras moléculas informativas no fueron los ácidos nucleico, sino algunos compuestos parecidos a ellos a partir de los cuales pudieron evolucionar. 
  • Lípidos: los lípidos anfipáticos son elementos fundamentales de las membranas y, por lo tanto, esenciales para la evolución de las células. Los restos extraídos de un famoso meteorito, el de Murchison, contenían lípidos anfipáticos que, al ser mezclados con agua, formaron espontáneamente vesículas lipídicas. También se ha podido demostrar la posibilidad de que lípidos anfipáticos de este tipo se produzcan en las surgencias oceánicas.
Un motivo de discusión en torno a este periodo evolutivo es la necesidad de la catálisis para que estas reacciones tengan lugar. Teniendo en cuenta la baja probabilidad de que estos procesos ocurren, y la velocidad extremadamente lenta a la que suceden en ausencia de catalizadores, parece bastante probable que los sistemas de catálisis aparecieran muy temprano en el proceso evolutivo.

Otra de las cuestiones importantes en esta fase fue la fuente de energía que permitió, en primer lugar, la propia síntesis de moléculas orgánicas y más adelante que los sistemas prebióticos pudieran llevar a cabo reacciones endotérmicas necesarias para desarrollar su metabolismo. Aunque hay varios candidatos posibles para actuar como fuentes de energía, todas ellos presentan puntos débiles que los hacen improbables por sí mismos como sistema de suministro energético para esta etapa de la evolución, por lo que se ha sugerido que los primeros sistemas prebióticos pudieron utilizar una combinación de varias de estas fuentes energéticas disponibles a su alrededor:

En una primera fase, moléculas de polifosfato como las que se producen en las aguas termales pudieron proporcionar energía para la síntesis de nucleótidos trifosfato que formaran el ARN o alguna molécula relacionada. Los experimentos que recrean las condiciones arcaicas parecen demostrar que la adenina es la base nitrogenada que más fácilmente se forma, lo que explicaría que el ATP sea la molécula más utilizada por todos los organismos como moneda energética. En esta fase pudo producirse un acoplamiento entre reacciones metabólicas exotérmicas que implicaran ácidos orgánicos y aminoácidos, compuestos seguramente abundantes y polímeros de nucleótidos que serían los primeros sistemas replicadores, por lo que la cantidad de cadenas de nucleótidos pudo crecer bastante rápidamente.

El paso de la "sopa de moléculas" a los siguientes niveles de organización prebióticos pudo resultar bastante complicado. Antes de poder ser considerado célula, un sistema biológico primitivo tuvo que reunir al menos tres características complejas incluso por separado: presencia de membrana, capacidad de replicación y metabolismo. Las membranas permiten que los "protoorganismos" actúen como unidades estructurales separadas de su entorno, la capacidad de replicación proporciona la posibilidad de conservar y transmitir la información necesaria para organizar estructural y funcionalmente el organismo y el metabolismo hace posible dicho funcionamiento, proporcionando los elementos constituyentes y la energía necesaria.

De las tres características, la membrana es la más fácil de adquirir: las membranas lipídicas pueden formarse espontáneamente a partir de moléculas fáciles de sintetizar, o procedentes de meteoritos. Además, es posible imaginar otros mecanismos para mantener asociadas las moléculas necesarias para la replicación y el metabolismo. Por ejemplo, se ha propuesto que las arcillas y otros sistemas minerales pudieron jugar ese papel en fases tempranas de la evolución prebiótica.

En cambio, resulta muy difícil imaginar que la capacidad de replicación y la actividad metabólica pudieran evolucionar por separado: los elementos de una ruta metabólica no podrían haberse autoorganizado, ni tendrían capacidad para evolucionar, mientras que la formación de un conjunto de replicadores funcional, sin ninguna ventaja metabólica, resulta altamente improbable. De este modo, lo que parece más probable es que ambas capacidades evolucionaran simultáneamente, de forma que el proceso consistiera en la selección metabólica de un conjunto de replicadores, posiblemente formados por ARN o por alguna sustancia similar.

El mundo de ARN

Los sistemas biológicos actuales funcionan gracias a la interdependencia de ácidos nucleicos y proteínas: los ácidos nucleicos almacenan y transmiten la información necesaria para sintetizar las proteínas, mientras que las proteínas son necesarias para la replicación de los ácidos nucleicos. Parece evidente que los primeros sistemas biológicos tuvieron que ser más sencillos, de modo que inicialmente debieron contar solo con uno de estos dos tipos de moléculas. El problema de cuál de los dos tipos de moléculas apareció antes no se resolvió definitivamente hasta que se descubrió que algunos ARN tenían, además, capacidad catalítica (ribozimas).

El proceso hipotético que dio lugar a un mundo de ARN pudo ser el siguiente: en primer lugar, debió tener lugar la formación de nucleótidos a partir de precursores más pequeños. La unión de los nucleótidos para formar cadenas debió tener lugar en presencia de catalizadores, pero dado que por esa época no existían las proteínas, es posible que ese papel lo desempeñaran iones metálicos.

Las cadenas de nucleótidos con capacidad catalítica son de tamaño considerable. Su formación pudo tener lugar por adición de nucleótidos individuales o por unión de cadenas más cortas, pero finalmente algunas de esas cadenas debieron adquirir la capacidad para replicarse a sí mismas sin necesidad de intervención enzimática. Esta capacidad permitió tanto incrementar la capacidad catalítica de los ARN como crear una "sopa" de ácidos nucleicos capaz de evolucionar mediante errores en el proceso de copia y selección natural, lo que condujo al "mundo de ARN", en el que se mezclaban moléculas de ARN capaces de catalizar su propia replicación con otras que presentaban otras capacidades catalíticas.

Cofactores enzimáticos derivados de nucleótidos
Un mundo de ARN exige que este tipo de molécula sea capaz de realizar una amplia gama de funciones bioquímicas, más restringidas que las que actualmente realizan las proteínas, pero en todo caso mucho más extendida que las que ahora realizan las escasas ribozimas que se conocen. Se han encontrado evidencias indirectas que pueden apoyar la capacidad de los ARN para actuar como enzimas, como la abundancia de cofactores enzimáticos basados en nucleótidos (que sugeriría que las enzimas "conservaron" la capacidad catalítica de estas moléculas de sus precursores, las ribozimas); también se han propuesto mecanismos de reacción hipotéticos que podrían explicar cómo un ARN podría catalizar su replicación, sin necesidad de proteínas.

El mayor problema para explicar un mundo de ARN, sin embargo, sigue siendo resolver el "acoplamiento" entre los ARN y las proteínas. Para resolverlo se ha propuesto un mecanismo que tiene en cuenta la facilidad con la que se producen aminoácidos en procesos de síntesis abiótica. Las ribozimas podrían haber dispuesto, a su alrededor, de una buena cantidad de aminoácidos que inicialmente pudieron utilizar como cofactores. La unión de aminoácidos en cadenas pudo permitir mejorar la precisión y la complejidad de los procesos de catálisis, por lo que habría sido seleccionado positivamente, evolucionando hacia un mundo de ácidos nucleicos y proteínas.

sábado, 19 de noviembre de 2011

Enzimas: naturaleza química y estructura


La inmensa mayoría de las reacciones químicas que tienen lugar en los seres vivos ocurren de modo regulado, es decir, su progreso se ajusta a las necesidades metabólicas de la célula en cada momento. Para que esto sea posible, es necesario que la velocidad a la que suceden tales reacciones pueda ser modificada, de modo que se retarden cuando los productos de la reacción no sean necesarios, o que se aceleren cuando haga falta producir más productos.
El control de la velocidad de una reacción química puede llevarse a cabo mediante la actividad de catalizadores. Precisamente, un catalizador es una sustancia que modifica la velocidad de una reacción química sin alterar otros parámetros de la misma (equilibrio, dirección de progreso, balance energético...), recuperándose al final de la reacción, como si no hubiera intervenido en ella.
Los catalizadores biológicos por excelencia son las enzimas. En general, las enzimas son proteínas globulares que participan en el metabolismo de los organismos modificando la velocidad de reacciones específicas. Como excepción a esta norma, se conocen algunos ácidos ribonucleicos que también tienen actividad catalítica, y que reciben el nombre de ribozimas.
Mientras que en muchos casos las enzimas están formadas exclusivamente por aminoácidos, en otros muchos la proteína se encuentra asociada, además, a otro tipo de moléculas que resultan imprescindibles para que puedan desarrollar su función. Cuando esto ocurre, la enzima funcional, incluyendo la parte no proteica, recibe el nombre de holoenzima, la parte proteica se denomina apoenzima y la no proteica recibe el nombre genérico de cofactor.

Los cofactores pueden ser iones metálicos o moléculas orgánicas de pequeño tamaño.
  • Las proteinas que incluyen iones metálicos en su estructura reciben el nombre de metaloproteínas, y representan aproximadamente entre la cuarta parte y la tercera parte de todas las proteínas conocidas. Los iones metálicos pueden unirse a la proteína directamente, mediante su coordinación con átomos de nitrógeno, oxígeno o azufre de los aminoácidos, o indirectamente, "atrapados" en un grupo formado por varios ciclos, en cuyo centro se encuentra el metal, como el grupo hemo. Entre los iones metálicos más comunes en las metaloproteínas se encuentran: Zn+2, Mg+2, Mn+2,Fe+2, Fe+3, Cu+, Cu+2, K+ y Na+. Estos iones participan en procesos como la expresión génica (cinc), la fotosíntesis (magnesio), o el transporte de electrones o de oxígeno (hierro), entre otros muchos. El papel concreto que desarrolla el metal dentro de la enzima es variable; en algunos casos, en  particular en las reacciones de oxidación-reducción, el metal participa directamente en la reacción química (función catalítica primaria), mientras que en otras enzimas su papel consiste en establecer la unión entre el sustrato y la enzima, o en contribuir a la estabilización del centro activo.
  • Las moléculas orgánicas que actúan como cofactores suelen ser derivados de bases nitrogenadas (tiamina, biotina, piridoxal) o de nucleótidos (FMN, FAD, NAD o NADP), aunque también hay algunas de naturaleza lipídica (coenzima A, coenzima Q, lipoamida). Generalmente estas moléculas actúan como intermediarios en la transferencia de grupos químicos, desde electrones a grupos funcionales. Es decir, el sustrato cede el grupo químico al cofactor y éste lo traspasa a una segunda molécula para formar el producto. Así pues, tienen fundamentalmente un papel catalítico primario. Muchas de estas moléculas no pueden ser sintetizadas por los animales superiores, por lo que tienen carácter esencial, razón por la cual se han incluido tradicionalmente en la categoría de "vitaminas".
 Según el grado de unión entre el cofactor y la enzima se distinguen los grupos prostéticos, que están firmemente unidos a las proteínas, como ocurre con el FAD y las coenzimas, que se asocian a las enzimas de forma débil y transitoria, hasta el punto de que pueden moverse de una enzima a otra, portando el grupo que transfieren, como es el caso del NAD.

El centro activo de las enzimas

Desde el punto de vista químico, la actividad de las enzimas consiste en modificar la energía de activación necesaria para que la reacción química tenga lugar. De ese modo se consigue que cambie la proporción de moléculas de sustrato que tienen suficiente para reaccionar. Para lograrlo, las enzimas forman un complejo con los sustratos, que actúa como intermediario de la reacción, que necesita una energía de activación menor para formarse, lo que significa que hay una mayor proporción de moléculas que pueden alcanzar ese nivel energético.


La unión entrela enzima y el sustrato ocurre en una región concreta de la enzima, que recibe el nombre de centro activo. Esta zona, que suele ser de pequeño tamaño respecto al volumen total de la proteína, está configurada por aminoácidos que pueden estar alejados entre sí en la secuencia primaria, pero que se encuentran próximos en la estructura terciaria, como consecuencia de los procesos de plegamiento. El resultado final de este plegamiento suele ser un "bolsillo" en cuyo interior encaja el sustrato de la enzima, gracias tanto a la complementariedad espacial entre sustrato y centro activo como al entorno químico que crean los aminoácidos de éste, que permite el establecimiento de interacciones débiles con la molécula de sustrato. El centro activo también incluye los cofactores cuando éstos forman parte de la enzima.

Los aminoácidos que se sitúan en el centro activo de la enzima desempeñan en él funciones diferentes:
  • La mayoría de ellos participan en el establecimiento de la forma del centro activo, haciendo que sea complementaria del sustrato. Son, por lo tanto, aminoácidos estructurales.


  • Un segundo grupo de aminoácidos contribuye a mantener el sustrato enlazado al centro activo. Para ello establece enlaces débiles con el sustrato, en lo que participan tanto sus cargas (aminoácidos ácidos o básicos) como su carácter químico (aminoácidos polares, aminoácidos hidrófobos). Estos grupos reciben el nombre de aminoácidos fijadores.
  • Los aminoácidos ambientadores son los que contribuyen a crear un cierto entorno químico dentro del centro activo. Muchos sitios activos de las enzimas son bolsillos apolares, de modo que en esos casos los aminoácidos ambientadores tendrán esa naturaleza química.
  • Los aminoácidos catalíticos son los que llevan a cabo la actividad enzimática. Para ello, participan activamente en la reacción química que ocurre dentro del centro activo, normalmente reaccionando con el sustrato y formando un compuesto intermedio, diferente al que se formaría en la reacción no catalizada. Al finalizar el proceso, los aminoácidos catalíticos recuperan su estructura.


Las enzimas se definen como biocatalizadores específicos, pero esta especificidad tiene dos facetas diferentes: por una parte, presentan especificidad de sustrato, es decir, una enzima se une a una molécula, pero no a otra similar a la primera. Este fenómeno se debe a la actuación de los aminoácidos estructurales y fijadores, que son los que se encargan de impedir que sustratos diferentes puedan encajar en el centro activo. El segundo tipo de especificidad es la especificidad de reacción, que consiste en que una enzima, una vez que se ha unido a su sustrato, cataliza una única reacción de todos los posibles cambios químicos que puede sufrir esa molécula. La especificidad de reacción se produce gracias a la acción de los aminoácidos ambientadores y catalíticos. Los primeros son los que se encargan de distorsionar la molécula de sustrato, haciéndola más susceptible a la reacción. Los aminoácidos catalíticos reaccionan directamente con el sustrato.

martes, 11 de octubre de 2011

Fisiología del agua y los electrolitos

Variación de la cantidad de agua en el organismo, con la edad y el sexo
El agua es, como se sabe, el componente mayoritario de la materia viva. En el ser humano su proporción varía con la edad, con el género, y de unos órganos a otros. Respecto a la edad, la cantidad de agua es máxima en el recién nacido, en el que representa un 75% del peso corporal, y va disminuyendo con el paso del tiempo, de modo que por encima de los 60 años se reduce hasta un 45,5% en la mujer.

En cuanto a su distribución en los distintos órganos, el agua es más abundante en los que muestran mayor actividad metabólica.

Esta considerable presencia guarda relación, como es de esperar, con la importancia de las funciones que el agua desempeña en el organismo, entre las que se cuentan las siguientes:
  • Reactivo químico. El agua interviene activamente en la mayor parte de las reacciones químicas del organismo.
  • Solvente de la mayor parte de los compuestos que constituyen los seres vivos.
  • Medio de transporte de sustancias a lo largo de todo el organismo.
  • Termorregulador
  • Diluente para la digestión y absorción de nutrientes
  • Sistema de regulación homeostática de diferentes características:
    • Concentración normal de electrolitos
    • pH
    • Volemia
    • Presión arterial
    • Función renal.
Para que todas estas funciones sean posibles, es necesario mantener un equilibrio fino entre la entrada de agua al organismo y la pérdida, constante e inevitable que se produce como resultado del funcionamiento habitual de nuestro cuerpo. Dicho equilibrio constituye el balance hidrico, y en él están implicados diferentes mecanismos, tanto de adquisición como de eliminación de agua.

En general, la pérdida de agua conlleva también una pérdida de los electrolitos disueltos en ella, que debe ser compensada mediante su absorción a través de la dieta. El agua procede, sobre todo, de la bebida, que supone unos 1500 ml/día, pero también se obtiene a través de los alimentos (aproximadamente unos 700 ml/día) y reutilizando el agua que se produce en los procesos metabólicos (unos 300 ml/día). En cuanto a las pérdidas, la más importante cuantitativamente es la orina, que utiliza el agua como disolvente de sustancias tóxicas que deben ser eliminadas. En condiciones normales se producen unos 1500 ml/día. Las pérdidas también incluyen la sudoración y la respiración, que conjuntamente suponen unos 0,5 ml/kg de peso al día, y la pérdida a través de las heces, unos 250 ml/día.
La sudoración supone también la pérdida de electrolitos: unos 50 mEq/l de Na+ y otro tanto de Cl- junto con 14 mEq/l de K+.

Estos valores se ven alterados cuando se modifican las condiciones fisiológicas. Por ejemplo, un aumento de temperatura ambiente de un grado centígrado incrementa la tasa metabólica en un 13%, lo que supone un incremento paralelo de la pérdida de agua. Cada grado centígrado de fiebre incrementa la pérdida de agua en 150 ml al día. Los valores del balance hídrico dependen, en todo caso, de diferente factores tanto intrínsecos (superficie corporal, temperatura del individuo) como ambientales (temperatura del exterior, humedad relativa).

En el organismo, el agua se encuentra repartida en dos grandes compartimentos: la mayor parte de ella se localiza en el interior de las células (compartimento intracelular, LIC por sus siglas en inglés). El otro compartimento, el extracelular, (LEC) está constituido por varias masas de agua interrelacionadas, la más importante de las cuales es el líquido intersticial, que constituye el medio externo de las células. Este medio es fundamental para el funcionamiento celular: todos los intercambios de sustancias que la célula necesita se producen entre el medio intracelular y los líquidos intersticiales, de modo que la composición de este compartimento determina la posibilidad de que la célula absorba nutrientes o elimine sustancias de desecho. Además del líquido intersticial, el agua extracelular se reparte entre el plasma sanguíneo, el líquido linfático y otros reservorios menores como el líquido cefalorraquídeo, los líquidos oculares, el líquido amniótico...
 Ninguno de estos líquidos está constituido por agua pura, sino que todos ellos son disoluciones de electrolitos de composición aproximadamente constante. Dado que el agua puede atravesar las membranas celulares con gran facilidad, su movimiento entre compartimentos está determinado por la concentración de esas sustancias, tanto por la concentración total, que produce los fenómenos osmóticos que tienen lugar entre uno y otro lado de la membrana, como la de cada uno de los solutos, que determina la dirección del flujo de cada compuesto concreto.

La osmolaridad es una medida del número de partículas disueltas en una disolución. En el caso de sustancias solubles no disociables, su osmolaridad coincide con su concentración, mientras que si se trata de partículas que se disocian la osmolaridad se calcula teniendo en cuenta el número de partículas libres y multiplicándolo por la molaridad de esa sustancia en disolución. La osmolaridad mide el gradiente de agua a través de una membrana perfectamente semipermeable, de modo que esta sustancia pasará de la disolución de mayor osmolaridad a la que tenga un valor más bajo. Ahora bien, las membranas biológicas no son semipermeables, sino que presentan una permeabilidad selectiva. Esto supone que permiten el paso de ciertos solutos, pero no de otros. En la práctica, para conocer el funcionamiento de una membrana biológica es necesario recurrir a una magnitud distinta, la tonicidad, que mide la tendencia de una solución a producir expansión o contracción del volumen celular. Si la tonicidad del medio extracelular es mayor que la del citoplasma, el agua tenderá a entrar a la célula, mientras que si ocurre lo contrario el agua saldrá de la célula.

Pero, mientras la osmolaridad puede calcularse a partir de las concentraciones de solutos en cada disolución, la tonicidad de una disolución no puede predecirse a partir de ese valor. En la práctica, lo que determina el comportamiento de las membranas es su tonicidad, no su osmolaridad. En estas condiciones, cuando existen dos sistemas separados por una membrana de permeabilidad selectiva, tiende a establecerse entre ellos una situación de equilibrio conocida como equilibrio de Gibbs-Donnan. Ambos sistemas poseen los mismos iones positivos que negativos (carga neta nula). En la célula existen iones no difusibles cargados negativamente (sobre todo proteínas), lo que hace que la concentración de aniones difusibles (Cl- sea menor que en el medio extracelular, mientras que la concentración de cationes (Na+) es menor que en el exterior. Finalmente, la presión osmótica de la célula es ligeramente mayor que la del medio extracelular.

La célula no puede alcanzar ese equilibrio, porque supondría la detención de su actividad en cuanto al intercambio de sustancias con su medio. Para evitarlo, se ve obligada a compensar la tendencia a la entrada continua de Na+, eliminando este ión en contra de su gradiente de concentración, para lo cual necesita consumir energía. El mecanismo químico encargado de este proceso es la "bomba de Na+", cuya actividad consume el 25% de la energía basal del individuo.

Los líquidos corporales tienen, en realidad, composiciones diferentes, debido a que las membranas celulares consiguen mantener un estado de desequilibrio químico. Esta diferencia es especialmente patente entre el medio intracelular y los líquidos extracelulares. Los dos líquidos extracelulares se parecen mucho tanto en su osmolaridad total como en su composición, diferenciándose especialmente en la ausencia casi total de proteínas en el líquido intersticial. Las diferencias son mucho más significativas entre los líquidos extracelulares y el medio intracelular: para empezar, la osmolaridad es mayor en el interior de la célula (187 mEq/l en el citoplasma frente a 154 mEq/l en el medio extracelular). En segundo lugar, mientras que el catión más abundante fuera de la célula es el sodio, éste es sustituido casi totalmente por el potasio en el interior celular. El magnesio también se encuentra en mucha mayor proporción en el interior de la célula mientras que el calcio, a pesar de los importantes papeles que realiza en el citoplasma, se encuentra en él cantidades prácticamente testimoniales.
En cuanto a los aniones, la célula contiene, evidentemente, una proporción de proteínas mucho más alta que los medios extracelulares. Por otra parte, el cloro está en una proporción mucho más baja en el citoplasma, lo que compensa las cargas negativas no difusibles que aportan las proteínas. Otra diferencia fundamental es la proporción de los sistemas tamponadores constituidos por bicarbonato y fosfato; el primero de ellos es el más abundante en el exterior celular, donde también constituye el sistema de transporte del CO2 (este compuesto se transporta disuelto, transformado en carbonato y bicarbonato), mientras que el fosfato es el sistema más importante dentro de la célula, donde también participa en las reacciones de formación e hidrólisis de nucleótidos.

El equilibrio hídrico y electrolítico están finamente regulados en el organismo, ya que su alteración puede provocar una considerable variedad de problemas. La ingesta de agua está controlada mediante el mecanismo de la sed, que se desencadena en respuesta a un aumento de la osmolaridad sanguínea, detectada por quimiorreceptores localizados en el sistema circulatorio. Además, existe un mecanismo hormonal, controlado básicamente por la secreción de la ADH (hormona antidiurética) que permite regular también la pérdida de agua mediante la modificación de la concentración de la orina. El balance electrolítico, por su parte, está regulado mediante el control hormonal de su excreción renal, que es desarrollado por los mineralocorticoides producidos en la corteza adrenal. En este caso, la ingesta de electrolitos está fuera de control, ya que estas sustancias solo se consiguen a través de los alimentos.

Electrolito

Fuentes

Necesidades
diarias

Mecanismo
excretor

Sodio

Sal

5
- 15 g

Orina
(95%), sudor

Potasio

Todos
los alimentos

1,87
- 5,62 g

Orina
(90%), sudor, heces

Cloruro

Sal,
carne, leche y huevo

1,7
- 5,1 g

Orina,
sudor, heces

Calcio

Leche
y derivados

0,8
- 1,2 g

Heces
(70-90%), orina, sudor

Magnesio

Cereales,
nueces, carne, mariscos y leche

0,2
- 0,3 g

Bilis
(67%), orina

Fósforo

Todos
los alimentos

1
- 1,5 g


Orina

Los electrolitos realizan importantes funciones en el organismo:
  • El Potasio participa en la función enzimática, el funcionamiento de las membranas celulares, la conducción del impulso nervioso, la actividad cardiaca, la función renal, el almacenamiento del glucógeno y la regulación del equilibrio hídrico.
  • El Sodio es el principal regulador de la osmolaridad del plasma. Además también interviene en la transmisión de impulsos por las membranas celulares.
  • El Calcio interviene en la activación nerviosa y muscular y como activador de multitud de enzimas. En forma insoluble es el principal componente de los huesos y dientes.
  • El Magnesio participa en la activación enzimática, en el metabolismo de las proteínas y en la función muscular.
  • El Fósforo actúa en el metabolismo energético, en la regulación del pH y en la estructura del tejido óseo.
La alteración del equilibrio hídrico y electrolítico están íntimamente relacionados, puesto que la pérdida de agua suele ir acompañada de pérdida de sales, al tiempo que un exceso de sales es compensado por el organismo mediante un incremento en la absorción de agua. Los problemas relacionados con el equilibrio electroquímico incluyen alteraciones en el volumen de líquidos (hipovolemia e hipervolemia), trastornos en su composición, en especial en la concentración de sodio (hipo e hipernatremia) y de potasio (hipokalemia, hiperkalemia) o en la distribución de los mismos (derrames, edemas).

miércoles, 13 de julio de 2011

Galería de moléculas 1. El agua: la molécula de la vida

El agua es, sin duda, una molécula extraordinariamente peculiar. Se trata de la tercera sustancia más abundante del Universo (tras el H2 y el CO), la más abundante en nuestro planeta y del único líquido que aparece en la Tierra de forma natural. A pesar de su aparente simplicidad sus características la hacen idónea para servir de base a la química de la vida.  En todo caso, la sencillez del agua es solo aparente, dado que su estructura no se corresponde con la que a primera vista podría esperarse. Para empezar, el ángulo que forman los áomos dentro de la molécula, 104'5º, no es el que teóricamente le correspondería tener.
Esto se explica si tenemos en cuenta que los orbitales de la segunda capa del oxígeno se hibridan para formar cuatro orbitales sp3 iguales entre sí, orientados en las direcciones de los vértices de un tetraedro en cuyo centro estaría el oxígeno.
Dos de esos orbitales están completamente ocupados por sendos pares electrónicos del oxígeno, de modo que no participan en la formación de enlaces.
Por su parte, los otros dos orbitales están parcialmente llenos, conteniendo cada uno de ellos un único electrón. Son esos electrones los que se comparten con el átomo de hidrógeno y, por tanto, los que intervienen en la formación de los enlaces que dan lugar a la molécula.

Las repulsiones electrostáticas que se establecen entre los átomos de hidrógeno y los orbitales con pares electrónicos procedentes del oxígeno son diferentes, lo que hace que la geometría real de la molécula sea ligeramente distinta de la teórica estructura tetraédrica que le corresponde:

El segundo factor estructural que afecta a las propiedades de la molécula de agua es la diferencia de electronegatividad entre el oxígeno y el hidrógeno: el oxígeno es uno de los átomos más electronegativos de la tabla periódica, mucho más que el hidrógeno, de modo que los electrones que participan en el enlace entre ambos son atraídos con más fuerza por el oxígeno que por el hidrógeno. En la práctica, esto provoca una acumulación de carga negativa en la zona de la molécula donde se encuentra el oxígeno, llegando a alcanzar un valor apreciable, aproximadamente equivalente a la mitad de la carga de un electrón. Por el contrario, cada hidrógeno presenta una carga parcial positiva (δ+) aproximadamente igual a la cuarta parte de la carga de un protón. En una molécula lineal esa asimetría en la distribución de cargas se compensaría, pero como el agua presenta una estructura angular resulta que una parte de la molécula, la zona donde se encuentra el oxígeno, posee carga parcial negativa, mientras que la otra está cargada positivamente. La molécula de agua actúa, por lo tanto, como un dipolo eléctrico.

La polaridad del enlace que se establece entre el oxígeno y el hidrógeno es la responsable de una de las características más importantes del agua: su acción como disolvente casi universal. El agua puede disolver todas las sustancias polares y cargadas gracias a que estas se solvatan, es decir, en un entorno acuoso resultan rodeadas por cargas eléctricas de signo opuesto procedentes de la orientación de las moléculas de agua. Esto tiene una importancia especial en el caso de las grandes moléculas biológicas: su elevado tamaño y peso molecular hace que tiendan a precipitar. Sin embargo, su solvatación por parte del agua las mantiene separadas entre sí, formando dispersiones coloidales con propiedades bastante similares a las de las disoluciones verdaderas, y permitiendo que participen en las reacciones que tienen lugar en la célula.


El enlace entre el oxígeno y el hidrgéno es tan polar que, en algunas ocasiones llega a romperse, quedándose el oxígeno con el par de electrones que lo forman y dejando al hidrógeno ionizado en forma de protón. El protón aislado es una forma química inestable, pero como se encuentra rodeado de moléculas polares (el resto de las moléculas de agua del entorno) se asocia a una de ellas, formando un grupo hidronio (H3O+), molécula en la que los tres hidrógenos están unidos covalentemente al oxígeno central. Eso hace que unas pocas moléculas de agua dentro de cada disolución se encuentren disociadas, en forma de iones de carga opuesta:
La proporción de moléculas de agua que se ionizan es extraordinariamente baja: la constante de equilibrio de la reacción anterior (Kw, producto iónico del agua) es Kw = 10-14, lo que significa que la concentración de hidroxilos (OH-) y la de iones hidronio (H3O+) es de 10-7M en el agua pura. Dicho de otra forma: solo dos de cada diez millones de moléculas se encuentran en forma iónica.
Sin embargo, esta pequeña proporción es suficiente para justificar que el agua tenga un comportamiento anfótero, es decir, que se comporte a la vez como un ácido y como una base.


La polaridad del enlace es también la responsable de la característica más importante de las moléculas de agua: la formación de puentes de hidrógeno entre moléculas próximas. Los puentes de hidrógeno son un caso particular de las fuerzas débiles que se pueden establecer entre moléculas. Concretamente, se forman cuando un hidrógeno está unido a un átomo más electronegativo que él, en particular el oxígeno, pero también se dan cuando el hidrógeno se une al nitrógeno. En estos casos, los grupos atómicos que se forman tienen carácter de dipolos permanentes, y eso provoca que se establezca una atracción electrostática entre las regiones moleculares que presentan cargas eléctricas parciales de distinto signo.


Una forma bastante intuitiva de valorar la intensidad de una interacción intermolecular es medir la distancia media entre los átomos de diferentes moléculas que participan en el enlace y compararla con la distancia del enlace intramolecular. Cuanto más parecidas sean ambas distancias, mayor es la intensidad de la atracción. En el caso del agua, la distancia de enlace entre el oxígeno e hidrógeno es aproximadamente la mitad que la distancia de los puentes de hidrógeno.
La existencia de los puentes de hidrógeno es responsable de la mayor parte de las características "anómalas" del agua, es decir, de la diferencia de comportamiento entre esta sustancia y otras que deberían ser parecidas a ella, como el H2S; en la práctica, todas esas características anómalas se deben a que la atracción entre las moléculas de agua es realmente intensa, hasta el punto de que cualquier masa de agua debe ser considerada más como un "cluster", una agrupación coherente de moléculas relacionadas entre sí, que como un conjunto de moléculas separadas.

La lista de propiedades poco previsibles del agua es larga: más de 60 características de esta sustancia (aquí puedes ver más información). Estas características peculiares afectan a todos los aspectos químicos del agua, y muchas de ellas tienen importantes repercusiones en las funciones biológicas de esta sustancia:
  • Anomalías de fase:
    • Punto de fusión inusualmente alto (0ºC, unos 100º por encima de lo esperado), debido a que la fusión necesita que se rompan algunos de los puentes de hidrógeno que existen entre las moléculas de hielo. 
    • Punto de ebullición inusualmente alto: (100ºC, unos 150º por encima de lo esperado, debido a la necesidad de romper puentes de hidrógeno). Puesto que los organismos dependemos de la existencia de agua líquida tanto en nuestro entorno como en nuestro interior, estas temperaturas determinan la posibilidad de que se den condiciones adecuadas para la vida en las condiciones que se dan en nuestro planeta.
    • El agua líquida puede sobreenfriarse con facilidad, pero se transforma en hielo con dificultad. Este fenómeno permite que el agua del interior de los organismos de entornos fríos se mantenga líquida incluso por debajo del punto de congelación del agua.
    • El agua líquida puede sobrecalentarse fácilmente. Aunque ahora esta característica no sea muy significativa para los seres vivos, probablemente tuvo mucho que ver con el origen de la vida sobre la Tierra, ya que es probable que éste hecho se produjera en una fuente termal de origen magmático, con agua sobrecalentada.
  • Anomalías de densidad
    • El hielo aumenta de densidad al calentarse, mientras que el agua reduce su densidad al enfriarse. Como consecuencia, la densidad del agua es mínima en torno a los 4ºC. Este fenómeno provoca el bien conocido hecho de que el hielo flote sobre el agua líquida (lo esperable sería lo contrario). La formación de una capa de hielo superficial, que aisla la masa de agua líquida del entorno más frío, permite mantener la fase fluida aunque la temperatura descienda mucho. De esta forma, los lagos no llegan a congelarse nunca, y los seres vivos pueden mantenerse en el interior de la masa de agua líquida.
    • La densidad de la superficie del agua es mayor que la del resto de la masa de agua líquida.
    • El agua tiene una expansividad térmica muy pequeña. Esto facilita que los organismos mantengan su volumen a pesar de los cambios de temperatura, lo que es particularmente importante en el caso de las células.
    • El agua tiene una compresibilidad inusualmente baja. Gracias a esta característica muchos organismos pueden utilizar el agua como un elemento estructural, formando una especie de "esqueleto hidrostático".
    • El cambio de volumen entre el agua líquida y el vapor de agua es muy grande. Mientras que la densidad del agua líquida es muy alta, el vapor de agua es un gas muy ligero. Esto hace que el cambio de volumen que supone la vaporización sea especialmente grande. Aunque este fenómeno no tiene importancia en el funcionamiento normal de los seres vivos, permite la utilización de vapor de agua en la producción de energía.
  • Anomalías materiales
    • Ninguna disolución acuosa es ideal. En realidad, ninguna disolución es ideal, aunque en la mayor parte de los casos cuando la concentración de solutos es pequeña el comportamiento de la disolución es bastante parecido a la idealidad. En el caso de las disoluciones acuosas, en cambio, incluso a concentraciones bajas se produce esa desviación del comportamiento ideal, debido a la formación de clusters moleculares locales.
    • Los solutos tienen diferentes efectos sobre la densidad y la viscosidad de las disoluciones. La presencia de solutos modifica la formación de clusters en el agua, algunos favoreciéndola y otros dificultándola, lo que altera propiedades del agua tales como la viscosidad o la densidad. En cualquier caso, el descenso crioscópico molal y el aumento ebulloscópico molal son menores de lo esperado.
    • La solubilidad de los gases no polares disminuye al aumentar la temperatura, presenta un mínimo y luego vuelve a aumentar. Esto influye en gran medida en la capacidad de las masas de agua para mantener organismos vivos, y hace que sean las aguas frías, en las que puede disolverse una mayor proporción de oxígeno, las que permiten un mayor desarrollo de los seres vivos.
    • La constante dieléctrica del agua es muy elevada. Esta característica, junto con el pequeño tamaño de su molécula, hacen del agua un excelente disolvente de sustancias salinas.
  • Anomalías termodinámicas
    • Elevados calores de cambio de estado: la energía necesaria para lograr que una masa de agua cambie de estado (sin cambiar su temperatura) es más alta de lo esperado para cualquiera de los cambios de estado posibles (fusión, ebullición, sublimación).
    • Alta capacidad calorífica, especialmente en el agua líquida. Es necesario proporcionar una gran cantidad de energía para conseguir que el agua aumente su temperatura. Esto se debe a que una buena parte de la energía proporcionada al agua debe emplearse en romper los intensos puentes de hidrógeno, antes de que pueda aumentar la agitación térmica de las moléculas del agua. Estas dos características hacen del agua un extraordinario regulador térmico, ya que es capaz de mantener prácticamente igual su temperatura a pesar de que se le proporcione una cierta cantidad de energía. Esto es aprovechado por los seres vivos de formas diferentes: la presencia de agua en el interior de los organismos facilita su estabilidad térmica, mientras que la evaporación de ese agua en superficies expuestas (sudoración, evapotranspiración) impide que los individuos vean incrementada su temperatura interna a pesar de que aumente la externa. A una escala mayor, las masas de agua que forman parte de los ecosistemas (ríos, lagos, mares) contribuyen a mantener una variación térmica reducida, favoreciendo el desarrollo de la vida.
    • Elevada conductividad térmica: excluidos los metales, el agua es el líquidos que posee una mayor conductividad térmica. Esto permite que las grandes masas de agua actúen transportando calor de unas regiones a otras, contribuyendo al equilibrio térmico de nuestro planeta (la "cinta transportadora oceánica"  es uno de los mecanismos fundamentales de regulación del clima planetario).
  • Anomalías físicas
    • Elevada viscosidad, debida a la gran cohesión que existe entre sus moléculas. La viscosidad de un líquido está determinada por la facilidad con la que sus moléculas pueden moverse unas respecto a otras. En el caso del agua esta viscosidad es elevada, dado que las moléculas establecen puentes de hidrógeno difíciles de romper, aunque su valor no llega a dificultar su movimiento en el interior de los seres vivos.
    • Elevada tensión superficial. La tensión superficial en una interfase entre un líquido y un gas se debe a la atracción que las moléculas del líquido ejercen sobre las moléculas de su superficie, dificultando su paso hacia la fase gaseosa. La tensión superficial del agua hace de ella un líquido "que moja" (a diferencia, por ejemplo, del mercurio). La combinación entre la tensión superficial elevada y la gran cohesión entre moléculas de agua permite el ascenso del agua a lo largo de los vasos circulatorios de los vegetales, de acuerdo con la teoría de la tensión-cohesión.
Reactividad
    El énfasis que se pone en las características del agua como disolvente hace que, en ocasiones, se pierda de vista su importancia como agente reactivo. En los seres vivos el agua no actúa simplemente como entorno químico que permite el acercamiento de las moléculas y su orientación para favorecer la reacción entre ellas. Además de esta función, en la mayor parte de las reacciones bioquímicas el agua actúa como reactivo o como producto.
    La versatilidad química del agua es enorme, lo que hace que pueda participar en una gran variedad de reacciones químicas. Las de mayor interés biológico son las siguientes:
    • Reacciones ácido-base:  el agua puede actuar como ácido, frente a sustancias de carácter más básico que ella, o como base, frente a ácidos fuertes. Esta característica se denomina anfotericidad. Muchos compuestos biológicos tienen carácter ácido (por ejemplo ácidos grasos, muchos intermediarios metabólicos como el oxalacético, el acético...), aunque suelen tener caracter de ácido débil, mientras que otras son bases y aún hay otras que son, simultáneamente, ácido y base, como los aminoácidos. Esto supone que en el interior de la célula se producen multitud de reacciones ácido-base, en muchas de las cuales interviene el agua como agente activo.
    • Reacciones de oxidación-reducción (red-ox): Las reacciones redox consisten en la transferencia de electrones entre una sustancia que actúa como receptor de electrones (oxidante) o como donante (reductor). El carácter oxidante o reductor de una sustancia es relativo, y depende de la tendencia de la otra sustancia que participa en la reacción a ganar o perder electrones. Este tipo de reacciones son muy habituales en los organismos, y el agua puede participar en ellas tanto donando electrones como captándolos:
    • Hidrólisis: El agua puede disociar sales procedentes de ácidos débiles y bases fuertes, o de ácidos fuertes y bases débiles, dando como resultado iones que permanecen en disolución.
    • Reacciones con otros grupos funcionales: el agua puede reaccionar químicamente con otros muchos grupos reactivos, entre ellos prácticamente todos los grupos funcionales que forman parte de la materia viva.
    • Hidratación: Aunque no se trata de una reacción química propiamente dicha, la hidratación es un proceso imprescindible para mantener la actividad biológica de las macromoléculas. La solvatación de proteínas y ácidos nucleicos contribuye en varios aspectos a su funcionamiento:
      • Permite el establecimiento de su estructura tridimensional: el plegamiento de las proteínas o de los ácidos nucleicos no es posible si el proceso no tiene lugar en un entorno químico apropiado.
      • Mantiene las macromoléculas formando una dispersión coloidal que permite su actividad química, al hacer posible su interacción con otros componentes celulares.
      • Posiblemente el agua de solvatación, que forma una capa molecular con propiedades diferentes a la masa de agua que rodea a las macromoléculas (agua biológica) intervenga activamente en los procesos de reconocimiento entre las macromoléculas y sus ligandos.

    domingo, 20 de marzo de 2011

    Regulación hormonal en el ser humano: I aspectos moleculares

    Las funciones de relación de los animales superiores son realizadas por dos sistemas diferentes, aunque coordinados y complementarios: el sistema nervioso y el endocrino. Ambos funcionan de un modo integrado para conseguir el efecto final, el ajuste entre la respuesta del organismo y las condiciones ambientales y el propio estado del organismo.

    Se suele decir que el sistema nervioso se encarga de las respuestas rápidas y poco duraderas, mientras que el endocrino se ocupa de respuestas más lentas, pero que se mantienen más en el tiempo. También suele decirse que el sistema nervioso transmite la información mediante impulsos eléctricos, mientras que el endocrino lo hace utilizando mensajeros químicos, moléculas que viajan desde una célula secretora hasta un órgano diana, induciendo una respuesta en éste. Ahora bien, en realidad el sistema nervioso también utiliza mecanismos químicos para transmitir la información de una neurona a otra. De hecho, algunos neurotransmisores realizan también funciones hormonales fuera del sistema nervioso.

    La relación entre el sistema nervioso y el endocrino se aprecia claramente en lo que se denomina sistema neuroendocrino: una parte del sistema nervioso central, el hipotálamo, segrega moléculas que actúan como mensajeros químicos regulando la actividad de la hipófisis, la glándula endocrina más importante por el papel de control que ejerce sobre el resto de los componentes de este sistema.

    Precisando un poco, se puede decir que el sistema endocrino es un sistema de coordinación del organismo basado en la comunicación química entre las células que lo forman y que se relaciona principalmente con las funciones metabólicas celulares.

    Sistemas de comunicación química

    Los mensajeros químicos más conocidos son las hormonas, que se caracterizan por ser producidas en glándulas endocrinas específicas y difundirse a través del sistema circulatorio hasta sus órganos diana. Sin embargo, existen también otros tipos de sustancias que participan en la transmisión química de la información: los mensajeros autocrinos y los mensajeros paracrinos. Una clasificación de los distintos tipos de mensajeros químicos incluiría:
    • Mensajeros autocrinos: actúan sobre la misma célula que los produce (mensajeros intracelulares).
    • Mensajeros paracrinos: actúan sobre células que se encuentran próximas a las secretoras. Incluyen varios tipos de sustancias, tales como los factores de crecimiento característicos de diferentes tejidos, los mediadores de la inflamación (prostaglandinas, prostaciclinas, tromboxanos y leucotrienos) y de la respuesta inmunitaria (histamina, interleucinas, interferón) o los factores de coagulación. En un sentido amplio podrían incluirse también en esta categoría los neurotransmisores.
    • Mensajeros neuroendocrinos: son sustancias secretadas directamente por neuronas al medio extracelular o al sistema circulatorio, y que ejercen efectos, en particular, sobre glándulas endocrinas.
    • Mensajeros endocrinos (hormonas): estas sustancias son producidas por una glándula endocrina y liberadas al sistema circulatorio, a través del cual llegan a sus órganos diana, produciendo efectos en ellos.
    • Feromonas: se sintetizan en glándulas exocrinas y se liberan al entorno, difundiéndose mediante el aire o el agua. Las feromonas son capaces de producir respuestas en otros organismos de la misma especie, en general modificando su comportamiento.

      Clasificación química

      Desde el punto de vista químico, se pueden encontrar cinco tipos de sustancias que actúan como mensajeros químicos en el organismo:
      • Esteroides: son compuestos de naturaleza lipídica, derivados químicamente del ciclopentanoperhidrofenantreno. A este grupo pertenecen las hormonas producidas por la corteza suprarrenal, las hormonas sexuales tanto masculinas como femeninas y la forma activa de la vitamina D.
      • Derivados de ácidos grasos poliinsaturados, en concreto del ácido araquidónico. Incluyen un importante grupo de mensajeros paracrinos: prostaglandinas, tromboxanos y leucotrienos. Son de naturaleza hidrofóbica.
      • Derivados de aminoácidos: moléculas de pequeño tamaño y de naturaleza hidrófila. Incluyen la adrenalina y la noradrenalina, las hormonas tiroideas y la melatonina.
      • Péptidos de cadena corta. Entre estas hormonas se encuentran los factores hipotalámicos, algunas hormonas de la hipófisis como el ACTH o la MSH, hormonas del sistema gastrointestinal, la calcitonina, la vasopresina y la oxitocina.
      • Proteínas: incluyen el resto de las hormonas de la hipófisis y la insulina.
      Además, se conoce la función como mensajeros químicos de algunas moléculas de pequeño tamaño, que difunden fácilmente a través de la membrana y que poseen receptores citoplásmicos, como son el óxido nítrico (NO) o el monóxido de carbono.
        Mecanismo de transducción de señales

        Sea cual sea el tipo de mensajero químico, todos tienen en común el hecho de que son vertidos al medio intercelular, pero ejercen su función en el interior de la célula diana. El proceso que permite transmitir la información desde el exterior de la célula hasta su interior se denomina transducción. En este proceso suelen estar implicados varios elementos: el mensajero químico que procede del exterior (que recibe el nombre de primer mensajero), un receptor situado en la superficie de la célula diana, un sistema transductor acoplado al receptor y un mensajero químico intracelular (segundo mensajero).

        No todos los elementos están presentes en todos los mecanismos de transducción de señales. En particular, las hormonas lipídicas son capaces de difundir a través de la membrana, por lo que no necesitan receptores en la superficie de la célula diana. En su lugar, se unen a un receptor citoplasmático que las traslada hasta el núcleo de la célula, donde llevan a cabo su función.

        Las hormonas hidrosolubles poseen receptores situados en la membrana de las células diana. Estos receptores son siempre glucoproteínas transmembranosas, y están relacionados con mecanismos que provocan una reacción intracelular a la unión del mensajero químico. En general, lo que ocurre es la entrada en funcionamiento de un compuesto en el interior de la célula, el segundo mensajero. Existen varios tipos de sistemas de transducción de señales:
        • Los receptores hormonales acoplados a proteínas G. Las proteínas G son complejos multienzimáticos transmembranosos asociados a receptores de membrana. En su forma inactiva están unidas a GDP, pero cuando el mensajero se une al receptor se unen a GTP, activándose. La proteína G activa induce la formación de un segundo mensajero, que puede ser de varios tipos.
        • Receptores hormonales unidos a proteín tirosín kinasas. La fosforilación de proteínas es un mecanismo común para modificar la actividad enzimática. Las enzimas fosforiladas tienen características diferentes a las que no lo están. Estos receptores, una vez activados por la hormona, fosforilan otras proteínas, alterando su actividad.
        • Receptores ligados a la producción de GMP cíclico.
        Los sistemas de transducción dan lugar a la formación de diferentes segundos mensajeros, cada uno de ellos asociados a un tipo diferente de receptores de membrana:
        • El AMP cíclico está relacionado con las proteínas G. Es el segundo mensajero más importante en las células, relacionado con diferentes hormonas que pueden activar o inhibir su producción. El AMPc activa una enzima que fosforila otras proteínas, modificando su tasa de actividad. Las proetínas reguladas por el AMPc controlan rutas metabólicas, el transporte a través de membrana y la transcripción de algunos genes.
        • El inositol fosfato se produce por hidrolisis de lípidos de membrana. Esta reacción da lugar a dos segundos mensajeros: el citado inositol fosfato y el diacilglicérido que estaba unido a él. El diacilglicérido actúa igual que el AMPc, aunque se produce en células diferentes, mientras que el inositol fosfato provoca la salida de calcio del retículo hacia el citoplasma.
        • El calcio, cuando se libera al citoplasma, se une a la calmodulina y desencadena una serie de fosforilaciones en proteínas. El efecto del calcio es opuesto al del AMPc, cuya síntesis inhibe.
        • El GMPc provoca la fosforilación de otras proteínas celulares, diferentes a las fosforiladas en respuesta al AMPc.
        • Las proteínas ras son también fosforilasas. Se activan en relación con los receptores asociados a proteín tirosín kinasas. Estas proteínas están relacionadas con cieros tipos de tumores.
        • Las proteínas STAT también están relacionadas con las proteín tirosín kinasas. En este caso estas proteínas se unen al ADN, promoviendo la transcripción de determinados genes.


        La acción hormonal sobre las células del organismo es enormemente versátil: las diferentes células pueden tener receptores para distintos mensajeros, acoplados a varios sistemas de transducción y a diferentes segundos mensajeros. A su vez, éstos actuarán modificando las enzimas que se expresan en esa célula y no en otras. De este modo, un número relativamente pequeño de sustancias químicas puede regular de una forma muy flexible el metabolismo en distintos órganos y tejidos.

        viernes, 4 de febrero de 2011

        Regulación de la fisiología vegetal I: Las hormonas vegetales

        Las funciones de regulación permiten a los seres vivos ajustar su funcionamiento a las condiciones ambientales y a su propia condición fisiológica. En los animales, esto ocurre gracias a la actividad del sistema neuroendocrino. Como es bien sabido, las plantas carecen de sistema nervioso, a pesar de lo cual consiguen mantener una respuesta coordinada a las condiciones que les afectan.

        En cuanto a las respuestas que las plantas pueden generar para adaptarse a los cambios ambientales, aparte de unos pocos casos de movimientos más o menos rápidos (como las respuestas de las plantas carnívoras, o la mimosa, llamados tactismos), los mecanismos que suelen utilizar los vegetales suelen ser cambios en su crecimiento (puede activarse o detenerse, en toda la planta o en ciertas estructuras, o incluso en ciertas zonas de una misma estructura) o procesos de diferenciación que dan lugar a la aparición de nuevas estructuras o a la maduración de otras.


        El mecanismo fundamental que las plantas utilizan para regular el desarrollo de estos procesos es la producción y secreción de sustancias químicas que actúan sobre tejidos y órganos diana y que, por similitud con los animales, reciben el nombre de hormonas vegetales.

        Existen varios tipos de hormonas vegetales que, en general, actúan coordinadamente en los procesos de respuesta de las plantas, es decir, los efectos finales que se aprecian suelen corresponder a la acción simultánea de varias hormonas. Este modo de funcionamiento permite conseguir una considerable variedad de respuestas utilizando un número reducido de sustancias químicas. Las hormonas vegetales corresponden a las siguientes categorías:

        Auxinas
        Funcionan como reguladores del crecimiento, en particular produciendo el crecimiento en tamaño de las células (elongación), aunque en algunos tejidos pueden estimular también la división celular.
        Se sintetizan en los meristemos apicales de los tallos y son transportadas hacia la parte inferior de la planta a través del parénquima que rodea a los ejes vasculares, de modo que se establece un gradiente vertical de concentración a lo largo del eje de la planta, si bien en su actuación es fundamental el transporte lateral, es decir, la salida de la hormona del parénquima y su distribución hacia los tejidos que la circundan. Este proceso es, precisamente, el que está afectado por factores ambientales que condicionan la acción de las auxinas.

        La luz y la gravedad son los factores ambientales más importantes en la actividad auxínica: ambos estimulan la difusión de las auxinas, haciendo que actúen sobre los diferentes órganos de la planta, aunque su actividad también está influida por la temperatura y la presencia de agua: las bajas temperaturas y la falta de agua parecen disminuir la concentración de auxina. En conjunto, se aprecia que los factores que facilitan el crecimiento favorecen el funcionamiento de las auxinas, mientras que los que lo perjudican reducen su concentración.

        La cantidad de auxinas presentes en la planta también está influida por el resto de las hormonas vegetales: las citoquininas y las giberelinas producen un aumento de la cantidad de auxinas, mientras que el etileno hace que disminuya.

        Los efectos concretos que producen las auxinas en las plantas son los siguientes:
        1. Dominancia del brote apical e inhibición de la ramificación lateral, con lo que la planta crece fundamentalmente en altura.
        2. Estimulación del crecimiento apical de toda la planta.
        3. Diferenciación de los tejidos conductores (xilema y floema).
        4. Inhibición de la caida de hojas y frutos (abscisión).
        5. Activación de la formación de raíces adventicias.
        6. Favorecen la floración.
        7. Tropismos, es decir, crecimiento de la planta en una dirección determinada en respuesta a un estímulo. Los tropismos permiten a las plantas orientar algunos de sus órganos en una dirección apropiada, permitiéndoles acercarse hacia un estímulo positivo o alejarse de un estímulo aversivo. Existen diferentes tipos de tropismos, según el estímulo que los provoca, aunque los más conocidos e importantes para la planta son el fototropismo (provocado por la luz) y el gravitropismo (o geotropismo, provocado por la gravedad)
        Giberelinas

        Las giberelinas son también hormonas que estimulan el desarrollo de la planta, aunque de un modo diferente a como lo hacen las auxinas: su principal efecto es estimular el desarrollo del tallo, pero por debajo del meristemo apical, y también estimulan la germinación de las semillas y la movilización de nutrientes en ellas. Tienen, además, algunos efectos menores como inducir la floración en condiciones no demasiado apropiadas, inducir la formación de frutos sin fecundación o detener el envejecimiento de frutos y hojas en algunas plantas.
        El crecimiento del tallo que provocan tiene lugar por elongación de las células, y no por división celular, mediante un mecanismo diferente al de las auxinas, aunque sus efectos pueden sumarse.

        Las giberelinas se sintetizan, en general, en las partes en desarrollo, y en particular son especialmente abundantes en las estructuras reproductivas, razón por la cual su origen se encuentra en ápices de tallos y raíces, hojas jóvenes, flores y semillas inmaduras y embriones en germinación.

        La luz es el factor ambiental que más influye sobre las giberelinas. Por una parte, la luz roja aumenta la concentración de giberelinas, lo que parece indicar que en este mecanismo tiene influencia el fitocromo, otro de los elementos importantes en la regulación de la fisiología vegetal. Por otra parte, el fotoperiodo también influye en la producción de la síntesis de estas hormonas: los días largos incrementan dicha síntesis. La producción de giberelinas también es incrementada por el frío. La actividad de las giberelinas también es influida por otras hormonas vegetales: las citoquininas la incrementan mientras que el ácido abscísico la reduce.


        Citoquininas

        Las citoquininas o citocininas se encargan de regular los procesos de división celular. Dentro de la planta se sintetizan en el meristemo apical de las raíces, aunque también se encuentran en abundancia en frutos y semillas inmaduras.
        Sus principales efectos fisiológicos son:
        1. Estimulan la mitosis celular, en particular cuando actúan en conjunción con las auxinas.
        2. Promueven la formación y crecimiento de brotes laterales.
        3. Estimulan la germinación de las semillas y el desarrollo de brotes.
        4. Activan la movilización de nutrientes hacia las hojas, y en ellas la maduración de los cloroplastos.
        5. Estimulan el crecimiento celular en hojas y cotiledones.
        6. Retrasan la senescencia, directamente y también de un modo indirecto, al estimular la síntesis de óxido nítrico.
        Las citoquininas son producidas como respuesta a la luz roja (por lo que parece estar implicado el fitocromo), y son también estimuladas por el aumento de la concentración de oxígeno en el medio o por la presencia en el suelo de nitratos y sulfatos. Las bajas temperaturas también son un importante activador de las citoquininas, lo cual tiene un significado biológico interesante: la activación de las citoquininas en las semillas, y por tanto el inicio de la germinación, se produce después de que haya transcurrido un periodo frío: el invierno. Por el contrario, las condiciones de estrés inhiben la acción de las citoquininas, lo que también es coherente desde el punto de vista de las necesidades de adaptación de la planta, ya que impide que las semillas germinen cuando las condiciones no son las adecuadas. En cuanto a los factores endógenos, tanto el etileno como las giberelinas activan la actividad de las citoquininas.

          Ácido abscísico

          Esta hormona es responsable de la inhibición de muchos procesos de crecimiento de las plantas, así como de la dormción de yemas y de la caída (abscisión) de las hojas, proceso este último de donde procede su nombre.

          Se sintetiza prácticamente en todos los órganos de la planta, en particular en respuesta a condiciones adversas.
          Las principales funciones biológicas del ácido abscísico son las siguientes:
          1. Promueve la formación de la semilla, favoreciendo la acumulación de proteínas de almacenamiento y mejorando la tolerancia a la desecación, mediante la síntesis de un tipo particular de proteínas ("LEA", late embriogenesis abundant).
          2. Mantiene la dormición de las semillas, en un efecto opuesto al de las giberelinas. También inhibe la producción de enzimas que son inducidas por las giberelinas.
          3. En condiciones de falta de agua promueve el crecimiento de la raíz, inhibe el crecimiento del tallo y promueve el cierre de los estomas. Asimismo, estimula el flujo de agua y de iones en las raíces.
          4. Favorece el envejecimiento de las hojas, tanto por acción propia como por inducción de la producción de etileno.
          La concentración de ácido abscísico se incrementan considerablemente como respuesta a las condiciones de estrés sufridas por la planta, en particular la sequía, el encharcamiento de las raíces, el frío o algunas situaciones patológicas. La luz, sobre todo si está suplementada con luz roja, también estimula la produccion de ácido abscísico.

          Etileno

          El etileno es una sustancia estructuralmente muy sencilla (es el compuesto insaturado más simple que existe) que a temperatura gaseosa se encuentra a temperatura ambiente. Aunque la actividad hormonal de una sustancia gaseosa pueda parecer extraña, lo cierto es que su principal efecto es un hecho ampliamente conocido: la presencia de fruta madura acelera la maduración de otras piezas más verdes.

          El etileno es producido en mayor o menor medida por todos los órganos de la planta en algún momento de su desarrollo, siendo los órganos más activos los meristemos y los nodos. La producción de esta hormona se incrementa durante condiciones de estrés.
          Las funciones biológicas que realiza el etileno están relacionadas con procesos de maduración. Concretamente, sus principales efectos son:
          1. Promueven la maduración de los frutos, mediante la hidrólisis de los productos almacenados en ellos y la aceleración de la respiración celular.
          2. Estimula la epinastia y el envejecimiento de las hojas. La epinastia es la curvatura hacia abajo de las hojas, debida a un crecimiento diferente de su parte superior e inferior.
          3. Provoca el final de la dormición y la germinación de las semillas.
          4. Inhibe el crecimiento de la raíz y favorece la formación de raíces secundarias.
          5. Es el principal regulador de la abscisión de hojas y frutos.
          6. Inhibe el transporte de auxinas en la planta.
          Estos efectos están, en todo caso, relacionados con el crecimiento celular, de modo que el etileno comparte esta función biológica con las auxinas. Sin embargo, mientras que las auxinas están implicadas en un crecimiento "juvenil", el etileno está más relacionado con la madurez y el envejecimiento de la planta. Se ha propuesto que esta diferenciación en los efectos de ambas hormonas se debe a que hay tres tipos celulares, en función a su respuesta a auxinas y etileno: las células de tipo I serían sensibles a la auxina, pero no al etileno; las células de tipo II responderían a ambas hormonas y las de tipo III serían estimuladas por el etileno, pero no por las auxinas.

          La producción de etileno es inhibida por la luz, y estimulada por el CO2. Asimismo, también es estimulada por las condiciones de estrés que afectan a la planta. También hay factores hormonales que influyen sobre la producción de etileno: él mismo actúa como un potente retroinhibidor de su síntesis, mientras que las auxinas estimulan su producción.

          Hormona Localización en la planta Efectos más importantes
          Auxinas

          Embrión, hojas jóvenes, meristemos de las yemas apicales

          Estimulan la elongación celular, intervienen en la dominancia apical y en la diferenciación vascular, inhiben la abscisión, estimulan el desarrollo del fruto y la formación de raíces adventicias; estimulan la  síntesis de etileno; intervienen en el fototropismo y en el gravitropismo.
          Giberelinas

          Meristemos de yemas apicales y raíces, hojas jóvenes, embrión Estimulan la floración y la elongación de los brotes, movilizan reservas en las semillas.
          Citoquininas

          Se sintetizan en las raíces y se transportan al resto  de la planta Estimulan la división celular, revierten la dominancia apical, estimulan la formación de brotes y la germinación, movilizan nutrientes hacia las hojas y retrasan el envejecimiento foliar.
          Ácido
          abscísico


          Hojas, tallos, frutos verdes Estimula el cierre de estomas, promueve la formación de la semilla y mantiene su dormición, favorece el envejecimiento, facilita la adaptación de la planta al estrés.
          Etileno

          Frutos en maduración, nudos de los tallos, hojas y flores  senescentes Favorece la maduración de frutos, la epinastia y el envejecimiento foliar, provoca el final de la dormición y la germinación de las semillas, es el responsable de la abscisión.

          Aparte de estos compuestos, existen otras sustancias vegetales que también poseen actividad hormonal en vegetales:
          • Los brasinoesteroides favorecen el crecimiento de los tubos polínicos, la germinación, el desenrollamiento de las hojas, el crecimiento del tallo (elongación y división celular) y la diferenciación del xilema, al tiempo que inhiben el crecimiento de las raices y retardan la abscisión de las hojas.
          • Los jasmonatos son hormonas fundamentalmente inhibidoras: inhiben la germinación y el crecimiento de las semillas y la elongación de las raíces. En el mismo sentido, promueven la degradación de la clorofila, la senescencia y abscisión de las hojas y la síntesis de etileno, además de provocar el cierre de estomas en condiciones adversas. Por otra parte, también mejoran la capacidad de la planta de resistir a los patógenos.
          • El ácido salicílico induce la floración e incrementa la resistencia a patógenos.
          • Las poliaminas (putrescina, cadaverina...) favorecen la floración, estimulan la senescencia en hojas cortadas, promueven la división celular e incrementan la tolerancia al estrés.
          • El óxido nitrico puede actuar conjuntamente con el ácido salicílico en la respuesta contra patógenos y en la apoptosis celular. Favorece la germinación de las semillas, de modo más eficaz incluso que las giberelinas, y el crecimiento de las raíces. También retrasa la senescencia de hojas y frutos, y la maduración de los frutos  en un efecto opuesto al del etileno. Interviene en la respuesta al estrés, aunque su efecto depende de la concentración: a bajas concentraciones actúa como molécula anti-estrés, mientras que a concentraciones elevadas lo induce. Esta misma variación se produce respecto a la expansión foliar: la activa a baja concentración, mientras que la inhibe a concentraciones elevadas.

          Brasinoesteroides Ácido Jasmónico


          Ácido salicílico Putrescina (poliamina)