domingo, 20 de marzo de 2011

Regulación hormonal en el ser humano: I aspectos moleculares

Las funciones de relación de los animales superiores son realizadas por dos sistemas diferentes, aunque coordinados y complementarios: el sistema nervioso y el endocrino. Ambos funcionan de un modo integrado para conseguir el efecto final, el ajuste entre la respuesta del organismo y las condiciones ambientales y el propio estado del organismo.

Se suele decir que el sistema nervioso se encarga de las respuestas rápidas y poco duraderas, mientras que el endocrino se ocupa de respuestas más lentas, pero que se mantienen más en el tiempo. También suele decirse que el sistema nervioso transmite la información mediante impulsos eléctricos, mientras que el endocrino lo hace utilizando mensajeros químicos, moléculas que viajan desde una célula secretora hasta un órgano diana, induciendo una respuesta en éste. Ahora bien, en realidad el sistema nervioso también utiliza mecanismos químicos para transmitir la información de una neurona a otra. De hecho, algunos neurotransmisores realizan también funciones hormonales fuera del sistema nervioso.

La relación entre el sistema nervioso y el endocrino se aprecia claramente en lo que se denomina sistema neuroendocrino: una parte del sistema nervioso central, el hipotálamo, segrega moléculas que actúan como mensajeros químicos regulando la actividad de la hipófisis, la glándula endocrina más importante por el papel de control que ejerce sobre el resto de los componentes de este sistema.

Precisando un poco, se puede decir que el sistema endocrino es un sistema de coordinación del organismo basado en la comunicación química entre las células que lo forman y que se relaciona principalmente con las funciones metabólicas celulares.

Sistemas de comunicación química

Los mensajeros químicos más conocidos son las hormonas, que se caracterizan por ser producidas en glándulas endocrinas específicas y difundirse a través del sistema circulatorio hasta sus órganos diana. Sin embargo, existen también otros tipos de sustancias que participan en la transmisión química de la información: los mensajeros autocrinos y los mensajeros paracrinos. Una clasificación de los distintos tipos de mensajeros químicos incluiría:
  • Mensajeros autocrinos: actúan sobre la misma célula que los produce (mensajeros intracelulares).
  • Mensajeros paracrinos: actúan sobre células que se encuentran próximas a las secretoras. Incluyen varios tipos de sustancias, tales como los factores de crecimiento característicos de diferentes tejidos, los mediadores de la inflamación (prostaglandinas, prostaciclinas, tromboxanos y leucotrienos) y de la respuesta inmunitaria (histamina, interleucinas, interferón) o los factores de coagulación. En un sentido amplio podrían incluirse también en esta categoría los neurotransmisores.
  • Mensajeros neuroendocrinos: son sustancias secretadas directamente por neuronas al medio extracelular o al sistema circulatorio, y que ejercen efectos, en particular, sobre glándulas endocrinas.
  • Mensajeros endocrinos (hormonas): estas sustancias son producidas por una glándula endocrina y liberadas al sistema circulatorio, a través del cual llegan a sus órganos diana, produciendo efectos en ellos.
  • Feromonas: se sintetizan en glándulas exocrinas y se liberan al entorno, difundiéndose mediante el aire o el agua. Las feromonas son capaces de producir respuestas en otros organismos de la misma especie, en general modificando su comportamiento.

    Clasificación química

    Desde el punto de vista químico, se pueden encontrar cinco tipos de sustancias que actúan como mensajeros químicos en el organismo:
    • Esteroides: son compuestos de naturaleza lipídica, derivados químicamente del ciclopentanoperhidrofenantreno. A este grupo pertenecen las hormonas producidas por la corteza suprarrenal, las hormonas sexuales tanto masculinas como femeninas y la forma activa de la vitamina D.
    • Derivados de ácidos grasos poliinsaturados, en concreto del ácido araquidónico. Incluyen un importante grupo de mensajeros paracrinos: prostaglandinas, tromboxanos y leucotrienos. Son de naturaleza hidrofóbica.
    • Derivados de aminoácidos: moléculas de pequeño tamaño y de naturaleza hidrófila. Incluyen la adrenalina y la noradrenalina, las hormonas tiroideas y la melatonina.
    • Péptidos de cadena corta. Entre estas hormonas se encuentran los factores hipotalámicos, algunas hormonas de la hipófisis como el ACTH o la MSH, hormonas del sistema gastrointestinal, la calcitonina, la vasopresina y la oxitocina.
    • Proteínas: incluyen el resto de las hormonas de la hipófisis y la insulina.
    Además, se conoce la función como mensajeros químicos de algunas moléculas de pequeño tamaño, que difunden fácilmente a través de la membrana y que poseen receptores citoplásmicos, como son el óxido nítrico (NO) o el monóxido de carbono.
      Mecanismo de transducción de señales

      Sea cual sea el tipo de mensajero químico, todos tienen en común el hecho de que son vertidos al medio intercelular, pero ejercen su función en el interior de la célula diana. El proceso que permite transmitir la información desde el exterior de la célula hasta su interior se denomina transducción. En este proceso suelen estar implicados varios elementos: el mensajero químico que procede del exterior (que recibe el nombre de primer mensajero), un receptor situado en la superficie de la célula diana, un sistema transductor acoplado al receptor y un mensajero químico intracelular (segundo mensajero).

      No todos los elementos están presentes en todos los mecanismos de transducción de señales. En particular, las hormonas lipídicas son capaces de difundir a través de la membrana, por lo que no necesitan receptores en la superficie de la célula diana. En su lugar, se unen a un receptor citoplasmático que las traslada hasta el núcleo de la célula, donde llevan a cabo su función.

      Las hormonas hidrosolubles poseen receptores situados en la membrana de las células diana. Estos receptores son siempre glucoproteínas transmembranosas, y están relacionados con mecanismos que provocan una reacción intracelular a la unión del mensajero químico. En general, lo que ocurre es la entrada en funcionamiento de un compuesto en el interior de la célula, el segundo mensajero. Existen varios tipos de sistemas de transducción de señales:
      • Los receptores hormonales acoplados a proteínas G. Las proteínas G son complejos multienzimáticos transmembranosos asociados a receptores de membrana. En su forma inactiva están unidas a GDP, pero cuando el mensajero se une al receptor se unen a GTP, activándose. La proteína G activa induce la formación de un segundo mensajero, que puede ser de varios tipos.
      • Receptores hormonales unidos a proteín tirosín kinasas. La fosforilación de proteínas es un mecanismo común para modificar la actividad enzimática. Las enzimas fosforiladas tienen características diferentes a las que no lo están. Estos receptores, una vez activados por la hormona, fosforilan otras proteínas, alterando su actividad.
      • Receptores ligados a la producción de GMP cíclico.
      Los sistemas de transducción dan lugar a la formación de diferentes segundos mensajeros, cada uno de ellos asociados a un tipo diferente de receptores de membrana:
      • El AMP cíclico está relacionado con las proteínas G. Es el segundo mensajero más importante en las células, relacionado con diferentes hormonas que pueden activar o inhibir su producción. El AMPc activa una enzima que fosforila otras proteínas, modificando su tasa de actividad. Las proetínas reguladas por el AMPc controlan rutas metabólicas, el transporte a través de membrana y la transcripción de algunos genes.
      • El inositol fosfato se produce por hidrolisis de lípidos de membrana. Esta reacción da lugar a dos segundos mensajeros: el citado inositol fosfato y el diacilglicérido que estaba unido a él. El diacilglicérido actúa igual que el AMPc, aunque se produce en células diferentes, mientras que el inositol fosfato provoca la salida de calcio del retículo hacia el citoplasma.
      • El calcio, cuando se libera al citoplasma, se une a la calmodulina y desencadena una serie de fosforilaciones en proteínas. El efecto del calcio es opuesto al del AMPc, cuya síntesis inhibe.
      • El GMPc provoca la fosforilación de otras proteínas celulares, diferentes a las fosforiladas en respuesta al AMPc.
      • Las proteínas ras son también fosforilasas. Se activan en relación con los receptores asociados a proteín tirosín kinasas. Estas proteínas están relacionadas con cieros tipos de tumores.
      • Las proteínas STAT también están relacionadas con las proteín tirosín kinasas. En este caso estas proteínas se unen al ADN, promoviendo la transcripción de determinados genes.


      La acción hormonal sobre las células del organismo es enormemente versátil: las diferentes células pueden tener receptores para distintos mensajeros, acoplados a varios sistemas de transducción y a diferentes segundos mensajeros. A su vez, éstos actuarán modificando las enzimas que se expresan en esa célula y no en otras. De este modo, un número relativamente pequeño de sustancias químicas puede regular de una forma muy flexible el metabolismo en distintos órganos y tejidos.

      viernes, 4 de febrero de 2011

      Regulación de la fisiología vegetal I: Las hormonas vegetales

      Las funciones de regulación permiten a los seres vivos ajustar su funcionamiento a las condiciones ambientales y a su propia condición fisiológica. En los animales, esto ocurre gracias a la actividad del sistema neuroendocrino. Como es bien sabido, las plantas carecen de sistema nervioso, a pesar de lo cual consiguen mantener una respuesta coordinada a las condiciones que les afectan.

      En cuanto a las respuestas que las plantas pueden generar para adaptarse a los cambios ambientales, aparte de unos pocos casos de movimientos más o menos rápidos (como las respuestas de las plantas carnívoras, o la mimosa, llamados tactismos), los mecanismos que suelen utilizar los vegetales suelen ser cambios en su crecimiento (puede activarse o detenerse, en toda la planta o en ciertas estructuras, o incluso en ciertas zonas de una misma estructura) o procesos de diferenciación que dan lugar a la aparición de nuevas estructuras o a la maduración de otras.


      El mecanismo fundamental que las plantas utilizan para regular el desarrollo de estos procesos es la producción y secreción de sustancias químicas que actúan sobre tejidos y órganos diana y que, por similitud con los animales, reciben el nombre de hormonas vegetales.

      Existen varios tipos de hormonas vegetales que, en general, actúan coordinadamente en los procesos de respuesta de las plantas, es decir, los efectos finales que se aprecian suelen corresponder a la acción simultánea de varias hormonas. Este modo de funcionamiento permite conseguir una considerable variedad de respuestas utilizando un número reducido de sustancias químicas. Las hormonas vegetales corresponden a las siguientes categorías:

      Auxinas
      Funcionan como reguladores del crecimiento, en particular produciendo el crecimiento en tamaño de las células (elongación), aunque en algunos tejidos pueden estimular también la división celular.
      Se sintetizan en los meristemos apicales de los tallos y son transportadas hacia la parte inferior de la planta a través del parénquima que rodea a los ejes vasculares, de modo que se establece un gradiente vertical de concentración a lo largo del eje de la planta, si bien en su actuación es fundamental el transporte lateral, es decir, la salida de la hormona del parénquima y su distribución hacia los tejidos que la circundan. Este proceso es, precisamente, el que está afectado por factores ambientales que condicionan la acción de las auxinas.

      La luz y la gravedad son los factores ambientales más importantes en la actividad auxínica: ambos estimulan la difusión de las auxinas, haciendo que actúen sobre los diferentes órganos de la planta, aunque su actividad también está influida por la temperatura y la presencia de agua: las bajas temperaturas y la falta de agua parecen disminuir la concentración de auxina. En conjunto, se aprecia que los factores que facilitan el crecimiento favorecen el funcionamiento de las auxinas, mientras que los que lo perjudican reducen su concentración.

      La cantidad de auxinas presentes en la planta también está influida por el resto de las hormonas vegetales: las citoquininas y las giberelinas producen un aumento de la cantidad de auxinas, mientras que el etileno hace que disminuya.

      Los efectos concretos que producen las auxinas en las plantas son los siguientes:
      1. Dominancia del brote apical e inhibición de la ramificación lateral, con lo que la planta crece fundamentalmente en altura.
      2. Estimulación del crecimiento apical de toda la planta.
      3. Diferenciación de los tejidos conductores (xilema y floema).
      4. Inhibición de la caida de hojas y frutos (abscisión).
      5. Activación de la formación de raíces adventicias.
      6. Favorecen la floración.
      7. Tropismos, es decir, crecimiento de la planta en una dirección determinada en respuesta a un estímulo. Los tropismos permiten a las plantas orientar algunos de sus órganos en una dirección apropiada, permitiéndoles acercarse hacia un estímulo positivo o alejarse de un estímulo aversivo. Existen diferentes tipos de tropismos, según el estímulo que los provoca, aunque los más conocidos e importantes para la planta son el fototropismo (provocado por la luz) y el gravitropismo (o geotropismo, provocado por la gravedad)
      Giberelinas

      Las giberelinas son también hormonas que estimulan el desarrollo de la planta, aunque de un modo diferente a como lo hacen las auxinas: su principal efecto es estimular el desarrollo del tallo, pero por debajo del meristemo apical, y también estimulan la germinación de las semillas y la movilización de nutrientes en ellas. Tienen, además, algunos efectos menores como inducir la floración en condiciones no demasiado apropiadas, inducir la formación de frutos sin fecundación o detener el envejecimiento de frutos y hojas en algunas plantas.
      El crecimiento del tallo que provocan tiene lugar por elongación de las células, y no por división celular, mediante un mecanismo diferente al de las auxinas, aunque sus efectos pueden sumarse.

      Las giberelinas se sintetizan, en general, en las partes en desarrollo, y en particular son especialmente abundantes en las estructuras reproductivas, razón por la cual su origen se encuentra en ápices de tallos y raíces, hojas jóvenes, flores y semillas inmaduras y embriones en germinación.

      La luz es el factor ambiental que más influye sobre las giberelinas. Por una parte, la luz roja aumenta la concentración de giberelinas, lo que parece indicar que en este mecanismo tiene influencia el fitocromo, otro de los elementos importantes en la regulación de la fisiología vegetal. Por otra parte, el fotoperiodo también influye en la producción de la síntesis de estas hormonas: los días largos incrementan dicha síntesis. La producción de giberelinas también es incrementada por el frío. La actividad de las giberelinas también es influida por otras hormonas vegetales: las citoquininas la incrementan mientras que el ácido abscísico la reduce.


      Citoquininas

      Las citoquininas o citocininas se encargan de regular los procesos de división celular. Dentro de la planta se sintetizan en el meristemo apical de las raíces, aunque también se encuentran en abundancia en frutos y semillas inmaduras.
      Sus principales efectos fisiológicos son:
      1. Estimulan la mitosis celular, en particular cuando actúan en conjunción con las auxinas.
      2. Promueven la formación y crecimiento de brotes laterales.
      3. Estimulan la germinación de las semillas y el desarrollo de brotes.
      4. Activan la movilización de nutrientes hacia las hojas, y en ellas la maduración de los cloroplastos.
      5. Estimulan el crecimiento celular en hojas y cotiledones.
      6. Retrasan la senescencia, directamente y también de un modo indirecto, al estimular la síntesis de óxido nítrico.
      Las citoquininas son producidas como respuesta a la luz roja (por lo que parece estar implicado el fitocromo), y son también estimuladas por el aumento de la concentración de oxígeno en el medio o por la presencia en el suelo de nitratos y sulfatos. Las bajas temperaturas también son un importante activador de las citoquininas, lo cual tiene un significado biológico interesante: la activación de las citoquininas en las semillas, y por tanto el inicio de la germinación, se produce después de que haya transcurrido un periodo frío: el invierno. Por el contrario, las condiciones de estrés inhiben la acción de las citoquininas, lo que también es coherente desde el punto de vista de las necesidades de adaptación de la planta, ya que impide que las semillas germinen cuando las condiciones no son las adecuadas. En cuanto a los factores endógenos, tanto el etileno como las giberelinas activan la actividad de las citoquininas.

        Ácido abscísico

        Esta hormona es responsable de la inhibición de muchos procesos de crecimiento de las plantas, así como de la dormción de yemas y de la caída (abscisión) de las hojas, proceso este último de donde procede su nombre.

        Se sintetiza prácticamente en todos los órganos de la planta, en particular en respuesta a condiciones adversas.
        Las principales funciones biológicas del ácido abscísico son las siguientes:
        1. Promueve la formación de la semilla, favoreciendo la acumulación de proteínas de almacenamiento y mejorando la tolerancia a la desecación, mediante la síntesis de un tipo particular de proteínas ("LEA", late embriogenesis abundant).
        2. Mantiene la dormición de las semillas, en un efecto opuesto al de las giberelinas. También inhibe la producción de enzimas que son inducidas por las giberelinas.
        3. En condiciones de falta de agua promueve el crecimiento de la raíz, inhibe el crecimiento del tallo y promueve el cierre de los estomas. Asimismo, estimula el flujo de agua y de iones en las raíces.
        4. Favorece el envejecimiento de las hojas, tanto por acción propia como por inducción de la producción de etileno.
        La concentración de ácido abscísico se incrementan considerablemente como respuesta a las condiciones de estrés sufridas por la planta, en particular la sequía, el encharcamiento de las raíces, el frío o algunas situaciones patológicas. La luz, sobre todo si está suplementada con luz roja, también estimula la produccion de ácido abscísico.

        Etileno

        El etileno es una sustancia estructuralmente muy sencilla (es el compuesto insaturado más simple que existe) que a temperatura gaseosa se encuentra a temperatura ambiente. Aunque la actividad hormonal de una sustancia gaseosa pueda parecer extraña, lo cierto es que su principal efecto es un hecho ampliamente conocido: la presencia de fruta madura acelera la maduración de otras piezas más verdes.

        El etileno es producido en mayor o menor medida por todos los órganos de la planta en algún momento de su desarrollo, siendo los órganos más activos los meristemos y los nodos. La producción de esta hormona se incrementa durante condiciones de estrés.
        Las funciones biológicas que realiza el etileno están relacionadas con procesos de maduración. Concretamente, sus principales efectos son:
        1. Promueven la maduración de los frutos, mediante la hidrólisis de los productos almacenados en ellos y la aceleración de la respiración celular.
        2. Estimula la epinastia y el envejecimiento de las hojas. La epinastia es la curvatura hacia abajo de las hojas, debida a un crecimiento diferente de su parte superior e inferior.
        3. Provoca el final de la dormición y la germinación de las semillas.
        4. Inhibe el crecimiento de la raíz y favorece la formación de raíces secundarias.
        5. Es el principal regulador de la abscisión de hojas y frutos.
        6. Inhibe el transporte de auxinas en la planta.
        Estos efectos están, en todo caso, relacionados con el crecimiento celular, de modo que el etileno comparte esta función biológica con las auxinas. Sin embargo, mientras que las auxinas están implicadas en un crecimiento "juvenil", el etileno está más relacionado con la madurez y el envejecimiento de la planta. Se ha propuesto que esta diferenciación en los efectos de ambas hormonas se debe a que hay tres tipos celulares, en función a su respuesta a auxinas y etileno: las células de tipo I serían sensibles a la auxina, pero no al etileno; las células de tipo II responderían a ambas hormonas y las de tipo III serían estimuladas por el etileno, pero no por las auxinas.

        La producción de etileno es inhibida por la luz, y estimulada por el CO2. Asimismo, también es estimulada por las condiciones de estrés que afectan a la planta. También hay factores hormonales que influyen sobre la producción de etileno: él mismo actúa como un potente retroinhibidor de su síntesis, mientras que las auxinas estimulan su producción.

        Hormona Localización en la planta Efectos más importantes
        Auxinas

        Embrión, hojas jóvenes, meristemos de las yemas apicales

        Estimulan la elongación celular, intervienen en la dominancia apical y en la diferenciación vascular, inhiben la abscisión, estimulan el desarrollo del fruto y la formación de raíces adventicias; estimulan la  síntesis de etileno; intervienen en el fototropismo y en el gravitropismo.
        Giberelinas

        Meristemos de yemas apicales y raíces, hojas jóvenes, embrión Estimulan la floración y la elongación de los brotes, movilizan reservas en las semillas.
        Citoquininas

        Se sintetizan en las raíces y se transportan al resto  de la planta Estimulan la división celular, revierten la dominancia apical, estimulan la formación de brotes y la germinación, movilizan nutrientes hacia las hojas y retrasan el envejecimiento foliar.
        Ácido
        abscísico


        Hojas, tallos, frutos verdes Estimula el cierre de estomas, promueve la formación de la semilla y mantiene su dormición, favorece el envejecimiento, facilita la adaptación de la planta al estrés.
        Etileno

        Frutos en maduración, nudos de los tallos, hojas y flores  senescentes Favorece la maduración de frutos, la epinastia y el envejecimiento foliar, provoca el final de la dormición y la germinación de las semillas, es el responsable de la abscisión.

        Aparte de estos compuestos, existen otras sustancias vegetales que también poseen actividad hormonal en vegetales:
        • Los brasinoesteroides favorecen el crecimiento de los tubos polínicos, la germinación, el desenrollamiento de las hojas, el crecimiento del tallo (elongación y división celular) y la diferenciación del xilema, al tiempo que inhiben el crecimiento de las raices y retardan la abscisión de las hojas.
        • Los jasmonatos son hormonas fundamentalmente inhibidoras: inhiben la germinación y el crecimiento de las semillas y la elongación de las raíces. En el mismo sentido, promueven la degradación de la clorofila, la senescencia y abscisión de las hojas y la síntesis de etileno, además de provocar el cierre de estomas en condiciones adversas. Por otra parte, también mejoran la capacidad de la planta de resistir a los patógenos.
        • El ácido salicílico induce la floración e incrementa la resistencia a patógenos.
        • Las poliaminas (putrescina, cadaverina...) favorecen la floración, estimulan la senescencia en hojas cortadas, promueven la división celular e incrementan la tolerancia al estrés.
        • El óxido nitrico puede actuar conjuntamente con el ácido salicílico en la respuesta contra patógenos y en la apoptosis celular. Favorece la germinación de las semillas, de modo más eficaz incluso que las giberelinas, y el crecimiento de las raíces. También retrasa la senescencia de hojas y frutos, y la maduración de los frutos  en un efecto opuesto al del etileno. Interviene en la respuesta al estrés, aunque su efecto depende de la concentración: a bajas concentraciones actúa como molécula anti-estrés, mientras que a concentraciones elevadas lo induce. Esta misma variación se produce respecto a la expansión foliar: la activa a baja concentración, mientras que la inhibe a concentraciones elevadas.

        Brasinoesteroides Ácido Jasmónico


        Ácido salicílico Putrescina (poliamina)

        miércoles, 26 de enero de 2011

        La selección natural

        La consideración de la evolución biológica como un hecho científico es el resultado de un largo proceso histórico en el que han confluido descubrimientos e investigaciones realizados a lo largo de un largo periodo de tiempo. Desde nuestra perspectiva actual, podemos encontrar las raíces del pensamiento que relaciona al hombre con el resto de los animales en los estudios de anatomía comparada realizados por Vesalio, que observó parecidos y diferencias entre el ser humano y otros organismos similares.

        En el siglo XVII la formulación del principio de superposición normal de estratos y la identificación de los fósiles como organismos antiguos, con la constatación de que eran diferentes a los actuales, abrió el paso a que se aceptara la idea básica de la teoría evolutiva, es decir, el hecho de que las especies actuales de seres vivos proceden de otras especies diferentes a ellas y que han desaparecido. Sin embargo, dados los conocimientos de la época, esta idea presentaba varias dificultades epistemológicas que dificultaban su adopción:
        • El tiempo que requiere la evolución. Desde un primer momento, se tuvo la consciencia de que la evolución es un proceso lento, lo que chocaba con la idea generalmente aceptada de que la Tierra tenía una antigüedad de unos 6.000 años.
        • La aceptación universal de la verdad establecida en las Escrituras. Paralelamente a lo que sucedía con las ideas de Galileo respecto al funcionamiento del Sistema Solar, la idea evolutiva se enfrenta a la consideración de la Biblia como un compendio de verdad revelada e indiscutible. Puesto que la Biblia señala que las especies fueron creadas por Dios, las teorías científicas que se oponían a esta idea eran rechazadas, tanto desde el punto de vista epistemológico como social.
        • La dificultad para clasificar y catalogar todas las formas de vida.
        Precisamente uno de los grandes impulsos que, a largo plazo, abriría paso al desarrollo de las teorías evolutivas fue el establecimiento, por parte de Carlos Linneo, de un sistema jerárquico de clasificación de los seres vivos. En el sistema de Linneo, que básicamente se mantiene en la actualidad, los organismos se incluyen en grupos que reflejan su grado de similitud, de modo que los más parecidos están incluidos en categorías más pequeñas. En principio, este modelo de organización solo refleja los parecidos entre los organismos, sin entrar a identificar a qué se deben dichas semejanzas. Sin embargo, pronto se hizo evidente que el trabajo de Linneo podía ser fácilmente interpretado a la luz de una teoría evolutiva: las proximidad taxonómica entre organismos puede ser un reflejo de su proximidad filogenética, de modo que las semejanzas serían consecuencia de una historia y de un conjunto de antepasados comunes.

        Buffon en el siglo XVII y, sobre todo, Lamarck en el XVIII propusieron teorías evolutivas bastante acordes con los hechos observables, que lograban explicar con bastante éxito el fenómeno más llamativo en la época: las grandes diferencias entre los fósiles encontrados en estratos diferentes. Sin embargo, ambos chocaron con el obstáculo de no ser capaces de explicar el mecanismo mediante el cual se produce la evolución, y el principal motivo de que en su época acabaran triunfando las tesis catastrofistas, como las defendidas por Cuvier, según las cuales la existencia de organismos diferentes en distintas épocas se debía a su desaparición brusca como consecuencia de fenómenos catastróficos, seguida de nuevos periodos de "creación".

        La gran aportación de Darwin a la idea evolutiva fue, precisamente, la identificación del mecanismo mediante el cual ocurre. Darwin observó durante mucho tiempo la variabilidad que caracteriza a las poblaciones biológicas, y combinó esta observación con las conclusiones extraídas de la obra de Malthus ("Ensayo sobre el principio de la población"), introduciendo una dimensión ecológica, hoy casi podríamos decir que sistémica, en la idea de la evolución, al relacionar la evolución de los organismos con la capacidad que tienen de relacionarse con su ambiente.

        Los principios básicos sobre los que descansa la teoría evolutiva de Darwin son los siguientes:
        • No todos los organismos de una población pueden sobrevivir y dejar descendencia. De acuerdo con los principios expuestos por Malthus, Darwin observó que las poblaciones biológicas tienen potencialidad para crecer exponencialmente (en progresión geométrica), mientras que los recursos que esas poblaciones necesitan solo crecen linealmente. De ahí dedujo que solo algunos individuos de cada población pueden llegar a dejar descendencia.
        • No todos los organismos de una población tienen las mismas posibilidades de sobrevivir. Darwin documentó de forma prolija, casi exhaustiva, la variabilidad que presentan las especies de organismos, tanto en condiciones naturales como criados en cautividad. Observó que algunas de las características que varían dentro de una población confieren a los individuos que las poseen ventajas sobre otros individuos, y comprobó también que esas características podían transmitirse de unos individuos a sus descendientes.
        La combinación de ambas observaciones le llevó a formular el principio de la "Selección Natural": sometidos a las limitaciones que les impone el ambiente, no todos los individuos de una población sobreviven. Pero los que lo hacen, no son una muestra aleatoria de la población, sino aquellos cuyas características individuales les proporcionan una mayor capacidad para aprovechar su entorno. En otras palabras, la parte de una población  que llega a reproducirse está "seleccionada" como resultado de las condiciones concretas en las que viven los organismos.

        Darwin asoció el concepto de selección natural con el de selección artificial: los criadores de animales o plantas eligen los que tienen características más apropiadas y los utilizan para la reproducción, de modo que se garantizan que tales características pasen a la generación siguiente. La selección natural actuaría de un modo similar, haciendo que los individuos que peor se adaptan a su entorno no lleguen a reproducirse, y por lo tanto eliminando esas características de la población.

        De la idea de la selección natural se deriva fácilmente el concepto de eficacia biológica ("fitness"), que ha sido traducido frecuentemente como "la supervivencia del más apto". Sin embargo, hay que tener en cuenta que no es posible determinar, a priori, la eficacia biológica de un organismo, puesto que es imposible conocer de antemano cuáles serán las características ambientales que afectarán a sus posibilidades de supervivencia.

        Darwin no pudo explicar el origen de la variabilidad entre los individuos de cada población, pero sí entendió algo que corrigió uno de los errores de Lamarck: los individuos ya poseen las caracteristicas que les van a facilitar su supervivencia en el momento de su nacimiento, no las desarrollan como respuesta a las condiciones externas. Dicho de otro modo: la variación es pre-selectiva, se genera aleatoriamente, produciendo características que pueden favorecer o dificultar la supervivencia del organismo. La selección, por lo tanto, actúa eliminando características que resultan poco adaptativas.

        El origen de la variabilidad

        Durante bastante tiempo resultó muy difícil conjugar la teoría de la evolución mediante selección natural con la teoría de la herencia elaborada por Mendel, aunque ahora casi resulta imposible entender la una sin la otra. De acuerdo con el modelo mendeliano, las características genéticas sencillas están determinadas por un único gen, un fragmento de ADN presente en el núcleo de la célula. Los cambios producidos por agentes físicos o químicos capaces de alterar los procesos de replicación del ADN generan secuencias distintas, que  en muchos casos pueden ser inviables, mientras que en otros dan lugar a otra "modalidad" del gen, que se manifiesta en una característica diferente. En este caso el gen presenta dos alelos.
        Lo más frecuente, cuando ocurre una mutación, es que el nuevo alelo sea menos eficaz, menos adaptativo que el anterior, pero ocasionalmente la nueva característica puede proporcionar ventaja adaptativa a los organismos que la poseen. Así pues, la mutación del material genético, producida al azar y transmisible a la descendencia, explica la aparición de nuevas características en los individuos.

        Sin embargo, es importante no perder de vista el hecho de que una única característica apenas puede proporcionar ventaja adaptativa a un individuo sobre otro. El efecto de las mutaciones puntuales, salvo en casos muy concretos, es casi insignificante, y la posibilidad de que estas nuevas mutaciones se extiendan por la población es muy baja. La recombinación genética que tiene lugar durante la meiosis constituye un mecanismo mucho más eficaz, ya que permite la acumulación de características adaptativas en un mismo organismo, lo que le puede proporcionar una ventaja más importante.

        La recombinación genética consiste, a nivel molecular, en el intercambio de material genético entre cromosomas homólogos procedentes de dos individuos que se han reunido en su descendiente común gracias a la reproducción sexual. El resultado de la recombinación es la formación de dos cromosomas distintos a los iniciales, con una nueva combinación de alelos. De nuevo, como ocurre con la mutación, el proceso se produce al azar, y su resultado puede ser negativo o positivo.

        Otros mecanismos habitualmente menos comentados también tienen una considerable importancia en la generación y extensión de la variabilidad genética en los organismos. Por ejemplo, las mutaciones por duplicación génica permiten que el organismo desarrolle nuevas características sin perder las anteriores. El mecanismo es el siguiente: un fragmento de ADN, portador de un gen, se duplica dentro del genoma del organismo, y una de esas copias permanece "silente", es decir, no se expresa. El efecto es que esta copia no se ve sometida a presiones selectivas, pudiendo acumular mutaciones porque el individuo ya posee un gen funcional para ese carácter. Alguna de esas copias silenciosas puede llegar a ser activada en ciertos momentos, pudiendo proporcionar ventajas adaptativas. Esto explicaría la gran cantidad de "ADN basura" que se acumula en los organismos complejos, que representaría un "fondo de armario" de variabilidad genética.

        También es un mecanismo importante de generación de variabilidad la aparición y multiplicación de intrones en los genes eucariotas. Los intrones son fragmentos de ADN intercalados en la secuencia de un gen, pero que no son traducidos a proteína sino que son eliminados tras la transcipción en un proceso denominado procesamiento. O al menos esa era la idea que se tenía de ellos hasta hace algún tiempo. Por lo que se sabe actualmente, el procesamiento de un mismo gen puede variar entre unos tejidos y otros del mismo organismo, de modo que la secuencia genética que, finalmente, se plasma como proteína cambia entre los diferentes tejidos. Se sabe que la variabilidad en los intrones es mayor que en los exones, de modo que este mecanismo también puede suponer otra oportunidad para la evolución.

        La evolución en acción

        Un caso bien conocido y muy comentado de selección natural es la rápida evolución que ha sufrido la polilla del abedul, Biston betularia. Esta pequeña polilla posee habitualmente una coloración blanquecina con manchas grises, que simula casi a la perfección el aspecto de los líquenes que cubren la corteza de estos árboles. Sin embargo, una única mutación es suficiente para la aparición de formas melánicas, prácticamente negras (Biston betularia carbonaria), que además son dominantes frente a las formas claras (Biston betularia typica).

        Evidentemente, la forma typica tiene una clara ventaja adaptativa, proporcionada por su coloración mimética, sobre la forma oscura, de modo que la mortalidad de estas polillas es mucho más alta debido a que los pájaros, sus principales depredadores, pueden verlas con mucha mayor facilidad. A pesar de esa desventaja, y puesto que la tasa de mutación es constante, las polillas melánicas siguen apareciendo en la población con una frecuencia baja pero constante.

        A lo largo del siglo XX, la contaminación industrial sufrida en algunas zonas de Inglaterra provocó la muerte de la mayoría de los líquenes que habitan en los abedules (estos organismos son tan sensibles a la contaminación por azufre que se usan como bioindicadores) y el ennegrecimiento de estos árboles. En estas condiciones, las formas melánicas tienen una clara ventaja sobre las formas típicas, que resultan mucho más conspícuas sobre el fondo oscuro de los troncos. El resultado de este fenómeno fue que en un plazo de tiempo muy corto, apenas unas cuantas generaciones, se invirtió la proporción entre ambas formas de polilla en las poblaciones inglesas, de modo que la forma carbonaria pasó a ser la mayoritaria, aunque la forma typica no llegó a desaparecer por completo, aunque sí se hizo mucho más rara.

        Al cabo de cierto tiempo, la promulgación de leyes de protección ambiental (La "clean air act") redujo considerablemente los niveles de contaminación y permitió la recuperación de los bosques de abedules, y la regeneración de los líquenes epifitos. Evidentemente, esto acabó repercutiendo en las poblaciones de Biston betularia, ya que la ventaja adaptativa en estas condiciones volvía a estar del lado de las formas típicas. El resultado, también al cabo de unas pocas generaciones, fue que se recuperara la proporción original entre las dos formas de la polilla.

          Este ejemplo muestra claramente los principales aspectos de la selección natural:
          • En primer lugar, la mutación es un proceso absolutamente independiente de la evolución, como queda patente por el hecho de que sigan apareciendo entre la población individuos poco adaptativos (negros cuando los troncos son claros, o claros cuando los troncos están ennegrecidos). 
          • En segundo lugar, se aprecia la importancia de los cambios ambientales en el proceso evolutivo; la población bien adaptada de Biston betularia mantiene, básicamente, sus características mientras su entorno se mantiene estable y, por lo tanto, su grado de adaptación al mismo es elevado. Cuando se produce un cambio ambiental, el cambio de las características de la población se precipita.
          • Por otra parte, la importancia fundamental que tiene la variabilidad para que la evolución pueda tener lugar: si todos los individuos de la población presentaran la misma característica, al producirse el cambio en las condiciones ambientales el número de individuos se reduciría drásticamente, posiblemente hasta el límite de la extinción.
          Es interesante observar la universalidad de la selección natural como mecanismo evolutivo: el mismo principio que explica la sustitución de la forma typica por la carbonaria cuando los troncos de los árboles se ennegrecen permite explicar también el cambio opuesto, cuando los líquenes reaparecen.

          Cuentan que cuando Thomas Henry Huxley leyó por primera vez las ideas de Darwin acerca de la selección natural exclamó "¿Cómo he podido ser tan estúpido como para no darme cuenta antes?". El mayor atractivo de la selección natural como mecanismo evolutivo es, precisamente, ese: la claridad y sencillez con la que explica un proceso tan complejo.


            lunes, 24 de enero de 2011

            La flor

            El grupo taxonómico predominante entre las plantas terrestes es el de las Angiospermas, caracterizado por poseer auténticas flores. La flor es el órgano reproductor de este tipo de plantas; se especializa en la producción y protección de los gametofitos y de las semillas, pero también interviene activamente en otras fases del proceso reproductivo, entendido en sentido amplio: juega un importante papel en la polinización, gracias a la relación cooperativa que se ha desarrollado entre plantas e insectos, y su transformación en fruto mejora la eficacia de la distribución de las semillas, de nuevo gracias a la relación colaborativa con los animales, que aprovechan los nutrientes que almacena el fruto y, a cambio, alejan las semillas del lugar de origen de la planta madre.

            Desde el punto de vista de la ontogenia, las flores se desarrollan a partir de los brotes de crecimiento situados en vástagos vegetativos (tallos o ramas). En general, la floración es estacional y requiere, además, un cierto grado de desarrollo vegetativo, de modo que la planta ha tenido que alcanzar un grado de "maduración" suficiente para que se produzca. El inicio de la floración se produce cuando se dan, simultáneamente, un conjunto de factores endógenos (mecanismos hormonales) y ambientales (condiciones determinadas de luz y temperatura).

             Cuando se inicia la floración el meristemo apical vegetativo se transforma en un meristemo reproductivo. A partir de él se van a formar varios verticilos (conjuntos de tres o más hojas) modificados en mayor o menor grado, cada uno de ellos en un nudo del vástago correspondiente, pero separados entre sí por entrenudos extremadamente cortos, hasta el punto de parecer contiguos los unos a los otros.

            Estructura floral

            La flor se une al tallo a través de un eje llamado pedicelo, que en su parte superior se ensancha para formar un receptáculo, en el que se insertan los verticilos florales. En los casos de mayor complejidad, la flor presenta cuatro verticilos. Dos de ellos son estériles, mientras que los otros dos producen gametos. De fuera a dentro, dichos verticilos son los siguientes:

            • El cáliz, formado por hojas apenas modificadas, que conservan su color verde, llamadas sépalos. Su función es básicamente protectora.
            • La corola, formada por pétalos. En este caso, la estructura sigue siendo plana, aunque la forma suele alejarse bastante de la típica de las hojas. Lo más significativo es que los pétalos pierden el color verde, adquiriendo otro distinto y característico de cada especie.
            • El androceo es el primero de los verticilos esporófilos (llamados así porque producen esporas, diferenciándose de las estructuras trofófilas, que se dedican a la nutrición de la planta). Se trata de la estructura que da lugar a los gametos masculinos. Los elementos que forman el androceo son los estambres, cuya estructura característica consiste en un filamento rematado por dos sacos unidos entre sí.
            • El gineceo es el verticilo productor de los gametos femeninos. Consta de uno o varios carpelos que pueden estar separados o unidos entre sí, en cuyo interior se encuentran los gametofitos femeninos. Los carpelos presentan, típicamente, una estructura en forma de jarrón, con la parte baja ensanchada y un cuello alargado.
            Este plan general de la flor se puede ver considerablemente alterado, en función de las adaptaciones particulares de cada planta a su ambiente. Entre las modificaciones más frecuentes que se pueden encontrar tenemos las siguientes:
            Flores que carecen de algún verticilo
            • Puede faltar algún verticilo floral. En particular, existen muchas plantas que poseen flores unisexuales, debido a que en ellas solo está presente uno de los dos verticilos esporófilos. También es habitual, en especial en las plantas cuya polinización tiene lugar con ayuda del aire, que estén ausentes la corola o los dos verticilos estériles (periantio)
            Flor del género Calochortus, periantio formado por tépalos
            • En ocasiones, algunas flores no presentan pétalos y sépalos diferenciados, sino un único verticilo estéril formado por tépalos, que suelen tener un aspecto más parecido al de los pétalos (no suelen ser verdes).

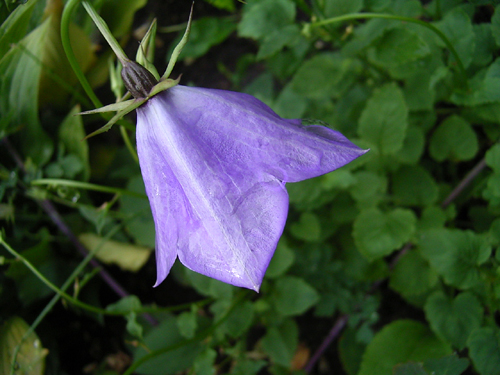
            Campanula, flor con los pétalos soldados
            •  En muchos casos, los elementos de un mismo verticilo pueden estar fusionados entre sí. Este fenómeno se da muy habitualmente en el gineceo, de modo que muchas flores presentan un único carpelo. Sin embargo, también son frecuentes las flores que presentan sépalos o pétalos fusionados entre sí, formando estructuras tubiformes.

            Flores con elevado número de elementos
            • Multiplicación del número de elementos de un verticilo. El número de piezas que forman cada verticilo floral es uno de los caracteres diagnósticos más importantes entre las plantas. En general, las monocotiledóneas tienen verticilos cuyo número de piezas es múltiplo de 3, mientras que las dicotiledóneas tienen verticilos cuyo número de elementos es múltiplo de 4 o de 5., siendo lo más frecuente que las flores tengan 3, 6, 4, 8, 5 ó 10 elementos por verticilo. Sin embargo, en algunos casos puede ocurrir que un verticilo floral tenga un elevado número de elementos. Esto es frecuente en las plantas más antiguas, pero también en otras más evolucionadas, como el género Rosa.
            Flores irregulares (arriba Jengibre, abajo una orquídea)
            • Desarrollo de corolas irregulares. Si, en general, las flores suelen presentar simetría radial, algunos grupos han evolucionado hacia el desarrollo de flores muy irregulares, tendencia que llega a su extremo en las orquídeas, cuyas flores llegan a imitar de modo casi perfecto el aspecto de los insectos que las polinizan.

            • Formación de inflorescencias. Las inflorescencias son grupos de flores que se encuentran próximas entre sí y que se forman a partir de un mismo vástago. Cuando la planta posee inflorescencias, las flores se disponen siempre siguiendo un mismo esquema, la misma posición relativa, que es característica de cada grupo. En ocasiones, las inflorescencias se agrupan, a su vez, formando un nivel mayor de integración. Este es el caso del Edelweiss, cuya flor es una inflorescencia de inflorescencias, concretamente un capítulo de capítulos.

            Tipos de inflorescencias
            Las funciones de la flor

            Una de las mayores dificultades que se encuentran las plantas en su adaptación al medio terrestre es el proceso de encuentro de sus gametos durante la reproducción sexual. Las briofitas y las pteridofitas (musgos y helechos) dependen de un medio acuoso para el encuentro de sus gametos, y la independización total no se consigue hasta la aparición de las espermafitas, es decir, hasta el desarrollo de la semilla característico de gimnospermas y angiospermas.
            En ambos grupos de plantas, la adaptación al medio terrestre se logra reduciendo al máximo la generación haploide (los gametofitos masculino y femenino son totalmente dependientes del esporofito), manteniendo inmóvil sobre la planta madre el gameto femenino y proporcionándole una reserva nutricional para facilitar el desarrollo de la nueva planta, además de un mecanismo que controla el inicio de la germinación en función de las condiciones ambientales, mientras que el gametofito masculino se reduce a dos únicas células protegidas por una cubierta que impide su desecación (grano de polen).

            En todo caso, este conjunto de adaptaciones deja pendiente el problema del encuentro entre los gametos. Los animales lo resuelven mediante la aproximación de los individuos que van a reproducirse, estrategia (la movilidad de los individuos) que no se ha desarrollado en las plantas. En cambio, la evolución de las plantas terrestres ha permitido el desarrollo de sistemas de dispersión del polen que maximizan la posibilidad de que éste alcance los óvulos de otra planta de la misma especie. La flor es un elemento absolutamente fundamental tanto en el desarrollo de la semilla como en la dispersión y encuentro de los gametos.

            Flores y polinización

            Las dos estrategias más habituales para la dispersión de los gametos masculinos y la optimización de su probabilidad de encuentro con los femeninos son la anemofilia (polinización con la ayuda del viento) y la entomofilia (polinización con ayuda de los insectos), además de otras adaptaciones menos frecuentes como la hidrofilia (polinización con ayuda del agua, que se da en algunas plantas acuáticas) o con ayuda de otros animales (aves, murciélagos). Las diferentes estrategias de dispersión se traducen en conjuntos de características que se presentan en los respectivos tipos de flores, conjuntos de características que reciben el nombre de síndromes florales.

            La anemofilia fue, sin ninguna duda, la estrategia de polinización más primitiva de las plantas con flores. Se basa en la producción de una gran cantidad de gametos masculinos que son dispersados al azar por el viento. La baja probabilidad de que uno de estos gametos alcance un óvulo apropiado se compensa, en cierta medida, con el bajo coste energético que supone la producción de un número muy elevado de granos de polen.
            Las flores que son polinizadas por el viento presentan, en mayor o menor grado, el "síndrome de anemofilia": se trata, en general, de flores poco vistosas, en las que en muchos casos ha desaparecido el periantio (cáliz y corola). Normalmente suelen aparecer muy pronto, antes del desarrollo de las hojas, lo que facilita la dispersión del polen. También es habitual que las flores masculinas y femeninas estén separadas, con las masculinas agrupadas en inflorescencias péndulas (colgantes), que pueden ser fácilmente agitadas por el viento. Las flores masculinas (o al menos los estambres) son muy numerosas y producen polen en grandes cantidades. Las flores femeninas, por su parte, suelen poseer estilos y estigmas alargados, con estructuras que facilitan la captura del polen. Éste, por último, suele ser de pequeño tamaño, liso (evitando que los granos se agrueguen entre sí) y seco.

            Flor con marcas ultravioleta (derecha) que atraen insectos
            La entomofilia se desarrolla como resultado de la coevolución entre las angiospermas y los insectos, dos grupos biológicos que aparecieron de forma prácticamente simultánea. Frente a la estrategia anemófila, la entomofilia se caracteriza porque los granos de polen son transportados de forma directa entre una planta y otra de la misma especie, lo que garantiza el encuentro entre los gametos. Esto permite que la planta pueda producir un número más bajo de granos de polen. A cambio, es necesario desarrollar mecanismos que atraigan a los insectos polinizadores hacia la flor. Esto incluye colores llamativos y/o la presencia de marcas ultravioletas que los insectos son capaces de percibir y formas que recuerdan a insectos de la misma especie y de sexo opuesto, con lo que se ofrece a los polinizadores el estímulo de la cópula.

            Sin embargo, el mayor atractivo para que los insectos acudan a las flores es la presencia en ellos de nectarios, estructuras productoras de un jugo azucarado muy concentrado (el néctar) que supone la principal fuente de alimento de estos organismos.

            Existen, por último, flores adaptadas a la polinización por otros animales como los murciélagos (quiropterofilia: flores alejadas de las hojas, color blanco o crema, gran producción nocturna de néctar con olor a fermentación y anteras largas) o algunos pájaros (ornitofilia: flores de color de la gama del rojo, tubulares, sin guías ultravioletas, que producen grandes cantidades de néctar poco concentrado en el que predomina la sacarosa).
            La formación de semillas

            Estructura del estambre
            Los gametofitos masculino y femenino de las angiospermas se desarrollan en el interior de los verticilos fértiles de la flor. En los estambres, las células madre de las microsporas sufren meiosis y dan lugar a las esporas haploides, que se desarrollan sin abandonar la propia antera para formar el gametofito masculino, reducido al grano de polen. Éste consta de dos cubiertas (exina e intina, ésta celulósica) con diseños y aperturas características, y en su interior dos núcleos procedentes de una mitosis de la microspora: el núcleo vegetativo y el generativo que, a su vez, volverá a dividirse durante la fecundación.

            El gametofito femenino se desarrolla dentro del carpelo. Se denomina carpelo al conjunto de elementos florales femeninos. Incluye el ovario, que es la parte fértil en la que se desarrollan los óvulos, el estigma, región receptora del polen, y el estilo, zona alargada que debe ser recorrida por el polen para alcanzar el óvulo. Dentro del ovario, la macrospora se desarrolla a partir de un tejido llamado nucela. Las células madres de las macrosporas sufren una meiosis, dando lugar a cuatro células haploides tres de las cuales degeneran. La cuarta forma el saco embrionario como resultado de tres mitosis consecutivas. El saco embrionario consta de ocho núcleos, pero solo de siete células ya que la célula central, de tamaño mucho mayor que las otras, posee dos núcleos (núcleos polares). El resto de las células se dispone en los dos polos del saco embrionario, agrupadas de tres en tres: en uno de los polos se sitúa el óvulo, flanqueado por dos células llamadas sinérgidas. Las tres células del otro polo reciben el nombre de antípodas.
            El óvulo y las sinérgidas se sitúan junto al micrópilo, una abertura en las cubiertas que rodean al saco embrionario a través de la cual llega el tubo polínico y se produce la fecundación.


            Origen y evolución de la flor

            La aparición de la flor tuvo lugar durante el Mesozoico, en un grupo de plantas emparentado con los modernos nenúfares. Los elementos de la flor evolucionaron a partir de hojas, mediante procesos de diferenciación y de plegamiento sobre sí mismas que dieron lugar a las estructuras más modificadas (estambres y carpelos), aunque aún pueden verse estructuras con aspectos bastante primitivos, como en las flores de las Magnólidas.

            El ancestro común de todas las plantas con flores debió tener un eje floral alargado, con las piezas florales dispuestas en espiral, como aún ocurre en las magnolias. Cada verticilo debió poseer un elevado número de piezas grandes y más parecidas a las hojas que sus homólogas en las flores modernas. Los estambres, en lugar de tener aspecto filamentoso, debieron presentar un aspecto laminar, como el de algunas ninfáceas. Seguramente el ovario estaba insertado por encima del resto de las partes de la flor (súpero), y la flor sería polinizada por escarabajos, de modo que tendría que producir polen y néctar en grandes cantidades, para satisfacer a estos animales.

              lunes, 17 de enero de 2011

              La semilla y su germinación

              El concepto de espermatofitas, sin categoría taxonómica, incluye dos grandes grupos de plantas (gimnospermas y angiospermas) que normalmente son consideradas como "plantas superiores" y que tienen en común la presencia de semillas, una estructura relacionada con la reproducción que les permite proteger y nutrir al embrión, con lo que se consigue la independencia casi total del medio acuático. La semilla sustituye ventajosamente a las esporas como medio de dispersión, además, porque contiene una importante reserva de nutrientes que el esporofito embrionario puede utilizar para acelerar su desarrollo hasta alcanzar el momento en que es capaz de autoabastecerse.
              La semilla es, básicamente, una estructura que incluye el esporofito desarrollado hasta el grado de embrión pluricelular, envuelto en tejidos protectores y nutricios. Las primeras plantas que presentaron estructuras relacionadas con la semilla fueron las progimnospermas, que aparecieron en el Devónico tardío. En el desarrollo de esta estructura confluyen tres tendencias evolutivas que se habían manifestado en las plantas terrestres:
              1. La transición desde la homosporia hacia la heterosporia, es decir, la diferenciación entre las esporas masculinas, que reducen su tamaño y se hacen móviles, y las femeninas, que aumentan su tamaño, acumulando sustancias de reserva, y se hacen inmóviles.
              2. La evolución del tegumento, un tejido procedente de la planta madre que protege el óvulo, dando lugar a la cubierta de la semilla.
              3. La evolución de estructuras que reciben el polen, lo que permite la independización del proceso de polinización y fecundación.
              Las gimnospermas presentan semillas desnudas, característica a la que hace referencia el nombre del grupo. Esto significa que ni el óvulo ni la semilla están totalmente rodeados por una estructura específica de la planta madre, lo que sí ocurre en las angiospermas. El gametofito femenino (haploide) se desarrolla en el interior de la nucela (diploide). Finalmente, una vez fecundado el ovocito, la semilla consta del embrión, resultado de la fecundación, que dará origen a la nueva planta (esporofito, 2n), nucela o endospermo (n), procedente del gametofito, y tegumento, que es la cubierta protectora de la semilla, procedente de la planta madre (2n).

              Semillas de gimnospermas: pino (izquierda) y cicas (derecha)
              Las dos diferencias fundamentales entre las semillas de gimnospermas y la de las angiospermas son, en primer lugar, que la semilla de las angiospermas se encuentra totalmente rodeada por las estructuras de la planta madre (los carpelos), lo que da nombre al grupo (angiosperma significa "de semilla cubierta"), y en segundo lugar, la naturaleza del endospermo, que en este grupo no se desarrolla directamente desde el gametofito, sino que es el resultado de la segunda fecundación: los núcleos polares del saco embrionario se fusionan entre sí y con el  segundo núcleo espermático del grano de polen para dar lugar a un tejido triploide (3n).
              Estructura de la semilla de las angiospermas
                Dentro de la semilla, el embrión se desarrolla hasta formar prácticamente una planta en miniatura, en la que se distinguen la radícula, que formará la raíz de la planta, el hipocótilo, que dará lugar al tallo, los cotiledones, que son las primeras hojas de la planta, y la plúmula o gémula, que es la yema de crecimiento a partir de la cual se producirá el crecimiento de la planta.
                Este modelo de organización es mucho más complejo en las Gramíneas, en las que el embrión tiene varios órganos diferenciados, y el cotiledón se ha transformado en un órgano absorbente adherido al endospermo.
                El número de cotiledones de la semilla es un carácter diagnóstico fundamental, ya que distingue, dentro de las angiospermas, entre dos grandes grupos: las dicotiledóneas presentan dos cotiledones en su semilla, mientras que las monocotiledóneas solo presentan un cotiledón. En cuanto a las gimnospermas, presentan en general varios cotiledones en la semilla, desde dos hasta unos ocho, como en el pino.

                Los tejidos embrionarios son meristemáticos, pero presentan ya características diferenciadas: la capa exterior (protodermis o dermatógeno) dará lugar a la epidermis. Bajo ella se encuentra un meristemo fundamental que dará lugar a la futura corteza, y en la zona más profunda, finalmente, el procámbium, a partir del cual se formarán los tejidos conductores.

                Sustancias de reserva en la semilla

                Las sustancias de reserva de las que se alimentará el embrión durante su desarrollo no siempre se acumulan en el endospermo. En gimnospermas, no hay endospermo verdadero, porque no se forma como resultado de una doble fecundación. La parte de la semilla que almacena las reservas se llama endospermo primario, y acumula grasas, aceites y proteínas. Las orquídeas carecen por completo de sustancias de reserva. En su lugar, los tegumentos de la semilla son verdes y pueden realizar la fotosíntesis. En el resto de las angiospermas las sustancias de reserva pueden acumularse en el endospermo, en el perispermo (derivado de la planta madre) o en los cotiledones, situación frecuente en las dicotiledóneas.

                Las sustancias que sirven de nutrientes al embrión son:
                • Almidón: es la sustancia más abundante. Se acumula en gránulos dentro de plastos incoloros (amiloplastos).
                • Proteínas: en algunos casos se depositan formando una capa que rodea al endospermo propiamente dicho, llamada capa de aleurona o gluten. La presencia de estas proteínas es lo que diferencia los cereales panificables (con capa de aleurona) de los que no lo son. Por otra parte, el gluten es un potente alergeno que puede provocar importantes intolerancias alimenticias.
                • Grasas y aceites: en general, se acumulan en los cotiledones de las semillas oleaginosas.
                • Hemicelulosas: se acumulan en las paredes celulares de las células del endospermo, lo que las hace extremadamente gruesas y resistentes.
                Germinación

                Una de las características adaptativas de las semillas es su capacidad de permanecer durante cierto tiempo en un estado de "dormición", es decir, de permanecer en un estado fisiológicamente pasivo hasta el momento en el que se dan las condiciones apropiadas para que se produzca el desarrollo de la planta. El  conjunto de procesos metabólicos y fisiológicos que conducen a la activación de la semilla y al inicio del crecimiento de la planta se denomina germinación.
                Las semillas pueden mantenerse en estado de dormición durante un periodo variable de tiempo. Las semillas microbiónticas solo pueden sobrevivir algunos días, hasta meses, mientras que las macrobiónticas pueden llegar a ser viables incluso varios centenares de años (la mayor longevidad registrada corresponde a semillas de hace unos 400 años; la germinación de semillas encontradas en las pirámides es solo una leyenda). Sin embargo, las semillas más comunes (mesobiónticas) pueden mantenerse viables entre 3 y 15 años.
                Germinación hipogea
                La salida de dormición, es decir, el inicio de la germinación, se produce como resultado de la acción de diferentes factores: la escasez de oxígeno, la alternancia entre temperaturas diurnas altas y nocturnas bajas, el aumento en la duración de los días y, sobre todo, la presencia de agua en el medio, son factores que activan la germinación.

                Cuando la semilla se encuentra en presencia de agua, ésta atraviesa las cubiertas protectoras gracias a la diferencia de concentración entre el interior y el exterior de la semilla, fenómeno denominado imbibición. Gracias a la entrada de agua, la semilla sufre una serie de modificaciones internas que permiten su desarrollo: dispersión de los coloides celulares, rehidratación de las reservas y activación de las enzimas necesarias para la germinación. Como resultado, se activan varias rutas metabólicas que permiten al embrión producir energía (glucolisis) y movilizar las reservas acumuladas en la semilla: los polisacáridos se transforman en monosacáridos, las proteínas en aminoácidos disponibles para la síntesis de nuevas proteínas y los lípidos son degradados para producir energía, lo que permite el rápido desarrollo de la plántula.
                Germinación epígea

                La germinación puede producirse de dos modos diferentes. En la germinación hipogea los cotiledones, es decir, las primeras hojas de la plántula, permanecen bajo tierra, desarrollándose primero la radícula, mientras que en la germinación epigea son los cotiledones la primera parte de la planta en desarrollarse, hasta asomar por encima del nivel del suelo, produciéndose más adelante el crecimiento de la radícula.

                El crecimiento primario de la planta es el que se debe al desarrollo de los meristemos apicales. Tras la germinación, el meristemo apical del vástago (en el hipocótilo) da lugar a las hojas, nudos y entrenudos de la planta. Los meristemos axilares de las hojas pueden formar vástagos axilares (ramas) que, a su vez, dan lugar a otros vástagos axilares, aunque hay plantas en las que la ramificación no se produce, debido a la inactividad de estos tejidos.
                En muchas plantas la raíz principal, formada a partir del meristemo radicular, se ramifica para formar raíces secundarias que también pueden ramificarse, aunque en otros casos (monocotiledóneas) el sistema radicular de la planta se desarrolla a partir de raíces adventicias formadas por el tallo.
                Cuando se dan condiciones adecuadas (endógenas y ambientales) el meristemo apical de los vástagos se transforma en un meristemo reproductivo, que da lugar a la formación de los órganos reproductores que, en el caso de las angiospermas, son las flores.

                Las gimnospermas y la mayoría de las dicotiledóneas poseen, además, un crecimiento secundario que  se produce gracias a la actividad de tejidos meristemáticos no situados en el ápice de crecimiento: el cambium es el meristemo que permite a las plantas añadir tejidos conductores, lo que hace que aumente el espesor del tallo, y el felógeno permite la sustitución de la epidermis por un nuevo tejido protector: la peridermis.