martes, 16 de febrero de 2010

El ciclo de Krebs

De acuerdo con una de las teorías más aceptadas, la endosimbiótica, el origen de los eucariotas está estrechamente relacionado con la aparición de la fotosíntesis oxigénica y su principal consecuencia, la revolución del oxígeno. Según esta teoría, los primeros eucariotas procederían de la unión de dos organismos, uno de los cuales sería el antepasado de nuestras mitocondrias. Esta asociación habría dejado dos importantes "huellas metabólicas" en todos los organismos eucariotas: el ciclo de Krebs y la respiración celular, realizada en la cadena de transporte electrónico mitocondrial.

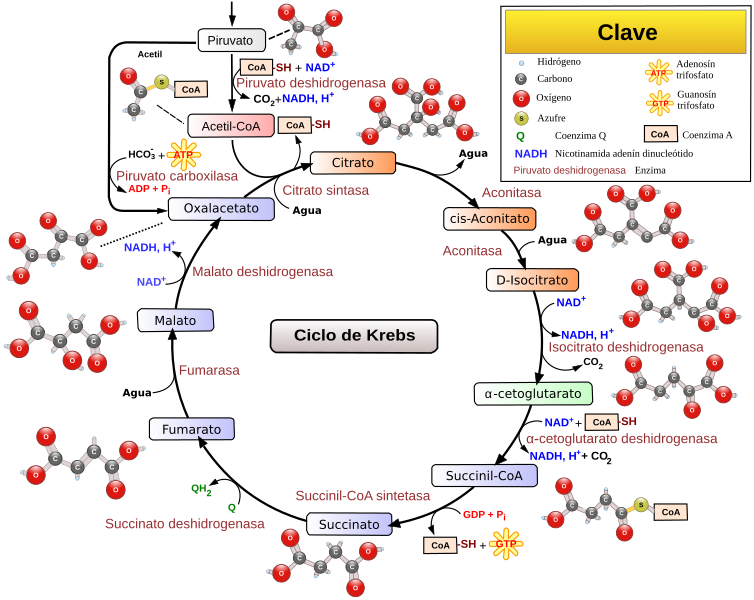
El ciclo de Krebs es una ruta metabólica oxidativa que ocurre en la matriz mitocondrial, mediante la cual un compuesto orgánico de dos carbonos (el acetato) se degrada completamente para dar lugar a dióxido de carbono. En este proceso se produce tanto energía química en forma de un nucleótido trifosfato como poder reductor, así como un conjunto de sustancias químicas que la célula utiliza en diferentes procesos celulares.

Relación entre la glucolisis y el ciclo de Krebs

El producto final de la glucolisis es el piruvato, un compuesto de tres carbonos que se genera en el citoplasma de la célula. Esta sustancia penetra a la mitocondria a través de transportadores específicos. Una vez en la matriz mitocondrial sufre una reacción crítica para su incorporación al ciclo de Krebs: una descarboxilación oxidativa que lo transforma en acetato al tiempo que aprovecha la energía desprendida para convertirla en una molécula activada, mediante la unión con la coenzima A.

La descarboxilación oxidativa, un tipo de reacción que se producirá de nuevo como parte del propio ciclo de Krebs, consiste en la eliminación de una molécula de dióxido de carbono, dos protones y dos electrones de la molécula inicial, en este caso el piruvato. La reacción resulta tan exotérmica que permite la formación de un enlace de alta energía, aunque en este caso no es un enlace entre grupos fosfato, sino entre un átomo de carbono del acetato y un átomo de azufre de una sustancia llamada coenzima A.
La coenzima A es una molécula compleja derivada de la adenosina, la cisteína y el ácido pantoténico, una vitamina del grupo B. El grupo -SH de la cisteína puede formar un enlace de alta energía con un átomo de carbono de otra molécula, por lo que se utiliza muy frecuentemente para activar esas sustancias y facilitar que intervengan en reacciones químicas. En particular, las células utilizan frecuentemente el acetil coenzima A, resultado de la unión entre esta coenzima y el radical acetilo.

El resultado de la descarboxilación oxidativa del piruvato es, por tanto, el acetil coenzima A, que es precisamente la sustancia que se incorpora al ciclo de Krebs. Además, los protones y los electrones arrancados del piruvato en esa reacción son cedidos al NAD+ para formar NADH+H+.

Los ciclos metabólicos

El metabolismo celular incluye un cierto número de rutas metabólicas de carácter cíclico, cuyo resultado final es la transformación de una sustancia en otra con la ayuda de un grupo de sustancias intermedias que, después de un recorrido completo de la ruta, se recuperan por completo. En general, esta visión resulta bastante simplista, porque en realidad las moléculas que forman parte del ciclo pueden "entrar" y "salir" de él, incorporándose desde otras vías metabólicas o siendo utilizadas por otras rutas, de modo que el carácter cíclico de la ruta es más teórico que práctico. De hecho, muchas de las sustancias que forman parte de los ciclos metabólicos son intermediarios de gran interés en otras rutas, por lo que la célula utiliza los ciclos tanto por su balance global como para poder sintetizar dichos intermediarios y utilizarlos en otros procesos metabólicos.

El ciclo de Krebs es un buen ejemplo de esto, ya que algunas de las sustancias que participan en él son los productos finales o iniciales de otras rutas de gran importancia en el funcionamiento celular. Es esta versatilidad la que hace que el ciclo de Krebs sea el centro del metabolismo de toda la célula.

Descripción e importancia del ciclo de Krebs


La primera reacción del proceso consiste en la incorporación del acetil coenzima A, que se une al oxalacetato para formar una molécula con tres grupos áciedos. El ciclo se denomina también de los ácidos tricarboxílicos porque incluye varias moléculas con tres grupos ácidos cada una. Globalmente el ciclo de Krebs consiste en la transformación de una molécula de acetato en dos moléculas de dióxido de carbono mediante dos descarboxilaciones oxidativas acopladas a la síntesis de NADH+H+. A lo largo del proceso también se producen otras dos reacciones de oxidación que permiten la transferencia de electrones a coenzimas de oxidación reducción y una fosforilación a nivel de sustrato, de modo que finalmente se genera poder reductor (tres moléculas de NADH+H+ y una molécula de FADH2) y energía química en forma de GTP (guanosina trifosfato), que puede transferir su energía muy fácilmente a un ATP.


El ciclo de Krebs ocupa, además, un lugar central en el metabolismo celular por la relación que existe entre sus componentes y otras rutas metabólicas:

  • El acetil coenzima A es el producto final de la degradación de glúcidos, lípidos y proteínas. Este producto se introduce en el ciclo de Krebs, por lo que esta ruta es la fase final de todo el catabolismo celular.
  • Algunos de los compuestos que se forman en las reacciones intermedias del ciclo actúan como precursores en el anabolismo de otras familias de compuestos:
    • El citrato es uno de los precursores de la síntesis de lípidos.
    • El α-oxoglutarato es precursor de la síntesis de bases nitrogenadas.
    • El oxalacetato es uno de los precursores de la síntesis de glucosa.
    • Tanto el α-oxoglutarato como el oxalacetato son precursores de la síntesis de la mayoría de los aminoácidos y, por tanto, de las proteínas.
    • El succinil coenzima A es precursor de la síntesis de diferentes grupos nitrogenados.

domingo, 14 de febrero de 2010

Glucolisis y fermentación

El ambiente en el que evolucionaron los seres vivos primitivos carecía de oxígeno. La aparición de este compuesto, ocurrida hace unos 3.000 millones de años como consecuencia de la evolución de la fotosíntesis oxigénica, supuso una verdadera catástrofe para los organismos que existían en aquella época, porque el oxígeno resultaba tremendamente tóxico para ellos. Algunos consiguieron adaptarse a las nuevas condiciones, incluso utilizando el nuevo compuesto como un elemento básico de su metabolismo, y de ellos proceden todos los organismos aerobios actuales. Sin embargo, todos los seres vivos actuales conservamos, como un resto evolutivo, algunas rutas metabólicas que ya existían antes de la evolución del oxígeno y que han permanecido como elementos centrales de nuestro funcionamiento: la glucolisis y las fermentaciones.

Glucolisis

La glucolisis es, seguramente, la ruta metabólica más antigua que se conserva, como lo prueba su presencia en todos los seres vivos y la naturaleza química de las reacciones que tienen lugar en ella. Se trata de un conjunto de procesos que hacen posible la degradación oxidativa de la glucosa (y de otros monosacáridos que pueden transformarse en ella) en ausencia de oxígeno. Sin embargo, en estas condiciones la oxidación de los monosacáridos es solo parcial, dando lugar a compuestos orgánicos que no están totalmente oxidados.
La producción de energía en la fosforilación ocurre exclusivamente mediante fosforilación a nivel de sustrato, mientras que los electrones y los protones que se arrancan de la glucosa a lo largo del proceso acaban siendo transferidos al NAD+ para dar lugar a NADH+H+. El compuesto final que se obtiene como resultado de la degradación es el piruvato:

La glucolisis tiene lugar en el citoplasma de las células eucariotas, circunstancia que tiene su interés, porque apoya la teoría de que los eucariotas evolucionaron a partir de procariotas anaerobios; de hecho, el oxígeno resulta tóxico en el citoplasma, y la célula lo envía rápidamente hacia la mitocondria, donde puede aprovecharse.

Descripción del proceso

Desde el punto de vista químico pueden distinguirse varias etapas distintas en la glucolisis, mediante las cuales se van "preparando" paulatinamente los diferentes compuestos para facilitar la reacción global:

  1. Fase de activación: requiere el aporte de energía en forma de ATP, que se recuperará en reacciones posteriores. La activación permite que los compuestos activados reaccionen con mayor facilidad. Esta "inversión energética" recuperable se da en muchos procesos metabólicos.
    1. Transformación de la glucosa en glucosa 6-fosfato: La glucosa reacciona con una molécula de ATP, fosforilándose y liberando ADP. En realidad no se trata de un proceso de activación energética (aunque también sea necesario para eso), sino que tiene un motivo diferente desde el punto de vista de la lógica celular. La membrana plasmática permite el paso de loa glucosa mediante difusión facilitada a través de transportadores específicos. Esto haría imposible la acumulación de glucosa dentro de la célula, ya que ese transporte es bidireccional y a favor de gradiente. La modificación química de la glucosa, concretamente la fosforilación, impide que la glucosa 6-fosfato salga de la célula (porque no existe transportador para ella). Toda la glucosa intracelular está fosforilada.
    2. Transformación de la glucosa 6-fosfato en fructosa 6-fosfato: Es una reacción de isomerización espontánea y reversible, que transforma la forma aldosa en la cetosa. La glucosa 6-fosfato es una sustancia que puede participar en varias rutas metabólicas, mientras que la fructosa 6-fosfato solo interviene en la glucolisis. La formación de este compuesto permite, por lo tanto, regular la cantidad de glucosa que se metaboliza y, en consecuencia, la cantidad de energía que se va a producir mediante esta ruta.
    3. Transformación de la fructosa-6-fosfato en fructosa 1,6-difosfato: Con esta nueva fosforilación se consigue que el compuesto alcance la energía interna suficiente para sufrir la siguiente reacción.
  2. Rotura de la fructosa 1,6-difosfato: La molécula se rompe en dos mitades del mismo tamaño, gliceraldehído 3-fosfato y dihidoxiacetona fosfato. Ambos compuestos son isómeros entre sí (son las formas fosforiladas de las dos triosas que existen), y de hecho se transforman la una en la otra en una reacción espontánea y reversible. Este equilibrio es fundamental en la continuación de la ruta, ya que solo el gliceraldehído 3-fosfato es metabolizado. Sin embargo, a medida que dicha sustancia se va consumiendo, la dihidroxiacetona fosfato se transforma en gliceraldehído, de acuerdo con el principio de equilibrio químico.
  3. Oxidación y fosforilación a nivel de sustrato: La última fase de la glucolisis consiste en una srie de reacciones que, conjuntamente, suponen su oxidación parcial acoplada a la fosforilación a nivel de sustrato que sintetiza más ATP del que se había consumido durante la activación. Los electrones y protones separados en el proceso se ceden a una coenzima de oxidación-reducción.
    1. Transformación del gliceraldehído 3-fosfato en 1,3-difosfoglicerato: se trata de una oxidación tan exotérmica que  basta para unir un grupo de fosfato inorgánico al grupo ácido recién formado. Los electrones y los protones separados de la molécula de gliceraldehído 3-fosfato son cedidos al NAD+ para formar una molécula de NADH+H+ (dos por cada molécula de glucosa).
    2. Fosforilación de ADP y formación de 3-fosfoglicerato: El 1,3-difosfoglicerato reacciona con el ADP dando lugar a las primeras moléculas de ATP que se producen en la ruta metabólica. Como cada molécula de glucosa ha permitido la formación de dos moléculas de 1,3-difosfoglicerato en esta reacción se recupera la energía invertida en la activación del monosacárido.
  4. Recuperación de la energía proporcionada para la activación: El 3-fosfoglicerato conserva aún el grupo fosfato que se había unido durante la fase de activación. El final de la glucolisis permite la recuperación de este ATP, proporcionando por tanto un balance energético positivo. Para que esta reacción sea posible, es necesario que antes el 3-fosfoglicerato sufra ciertas modificaciones quimicas.
    1. Transformación del 3-fosfoglicerato en 2-fosfoglicerato: El grupo fosfato cambia de posición dentro de la molécula, lo que facilita las reacciones posteriores.
    2. Deshidratación del 2-fosfoglicerato: Da lugar a un compuesto llamado fosfoenolpiruvato.
    3. Formación de piruvato y ATP: El fosfoenolpiruvato reacciona con el ADP transfiriéndole el grupo fosfato. El producto final de la glucolisis es el piruvato.
Balance energético de la glucolisis: Cada molécula de glucosa que interviene en la glucolisis necesita utilizar dos moléculas de ATP para activarse por completo. Su hidrólisis y oxidación posterior acaba proporcionando cuatro moléculas de ATP, por lo que el balance neto de la glucolisis es de una ganancia de dos ATPs por molécula de glucosa. Además, se sintetizan también dos moléculas de NADH+H+ en la oxidación del gliceraldehído 3-fosfato.

El compuesto final de la degradación de la glucosa mediante esta vía es el piruvato, una molécula de tres átomos de carbono que aún está parcialmente reducida, por lo que aún sería posible extraer más energía química de ella. El destino del piruvato, sin embargo, depende de la naturaleza de la célula y de las condiciones en las que ésta se desarrolle: las células aerobias que disponen de oxígeno van a seguir aprovechando la energía contenida en esa molécula, gracias a la respiración celular, pero las células que no disponen de oxígeno, o que son incapaces de utilizarlo, no pueden obtener más energía de esta molécula.

Fermentaciones

Las fermentaciones son, igual que la glucolisis, rutas metabólicas características de la falta (o insuficiencia) de oxígeno ambiental. En esas condiciones, el NADH+H+ no puede ser utilizado por la célula para transformarlo en ATP, sino que su función celular consiste simplemente en recibir los protones y los electrones desprendidos en otras reacciones celulares. Una vez conseguido esto, su papel se agota, y lo que la célula necesita es regenerar el NAD+, cuya síntesis es costosa, para seguir realizando su metabolismo.

Algo similar ocurre con el piruvato. Mientras que las células aerobias pueden seguir degradándolo y obteniendo la energía que aún contiene, si no hay oxígeno disponible es una molécula que resulta "inútil" para la célula, por lo que su destino final es su eliminación.

Las fermentaciones van a dar solución a ambos problemas cuando la célula se encuentra en un ambiente anaerobio: por una parte, van a ceder los electrones y los protones del NADH+H+ al piruvato (o a una sustancia relacionada con él), regenerando así la coenzima que necesitan para seguir funcionando, y por otra van a sintetizar un derivado del piruvato, que incluya esos protones y esos electrones, que va a ser eliminado como sustancia de desecho.

Evolutivamente, por tanto, las fermentaciones constituían la fase final de la degradación anaerobia de la glucosa, en la que la célula se liberaba de sus residuos y regeneraba sus coenzimas. En la actualidad, la mayor parte de los organismos que llevan a cabo fermentaciones lo hacen como adaptación a condiciones de falta de oxígeno, ya sea porque escasea en el ambiente en el que se encuentran, ya sea porque el metabolismo de la propia célula es tan activo que no recibe la cantidad suficiente de este gas para mantenerlo (por ejemplo, las células musculares en condiciones de un esfuerzo muy intenso no llegan a recibir un aporte de oxígeno suficiente para quemar completamente la glucosa, y se ven obligadas a degradar el piruvato mediante la fermentación láctica).

Existen diferentes tipos de fermentación, que dan lugar a la transformación del piruvato en distintos compuestos:
  • La fermentación láctica transforma el piruvato en lactato. Es la que se produce en las células musculares cuando escasea el oxígeno y la que llevan a cabo algunas bacterias.
  • La fermentación alcohólica transforma el piruvato en etanol, después de eliminar una molécula de dióxido de carbono (descarboxilación). Es característica de muchas levaduras.
  • La fermentación acética transforma el piruvato en acetato, también tras una descarboxilación. Es propia de bacterias del género Acetobacter.

Uso industrial de las fermentaciones

El hombre ha aprovechado las fermentaciones desde la antigüedad como proceso para transformar ciertos alimentos y aprovechar algunas características de los productos transformados. Por ejemplo, todas las bebidas alcohólicas son productos de la fermentación alcohólica de diferentes vegetales, llevadas a cabo por la levadura Saccharomyces cerevisiae. La levadura aprovecha parte de los azúcares presentes en el vegetal de partida (cebada en el caso de la cerveza, uva en el del vino...) produciendo alcohol y, en algunos casos, dióxido de carbono (si hay suficiente oxígeno). Otras fermentaciones aprovechadas industrialmente incluyen, por ejemplo, la producción de yogur (fermentación láctica) o la de vinagre (fermentación acética), entre muchas otras.

    viernes, 12 de febrero de 2010

    Introducción al metabolismo

    La célula se define como la unidad de estructura y funcionamiento de los seres vivos lo que significa, entre otras cosas, que es capaz de realizar por sí misma las funciones que caracterizan a todos los organismos y que se utilizan en la definición tradicional de vida: nutrición, relación y reproducción.

    Se puede definir la función de nutrición de una célula como el conjunto de procesos mediante el cual la célula adquiere y utiliza los nutrientes que necesita para su funcionamiento habitual, y elimina las sustancias de desecho que han sido producidas durante ese funcionamiento. Eso incluye los siguientes procesos:
    • Adquisición de nutrientes del medio extracelular, a través de la membrana:
      • Entrada de moléculas (en la mayoría de los casos en los organismos pluricelulares)
        • Por difusión a través de la membrana
        • A través de transportadores específicos
      • Entrada de líquidos: pinocitosis
      • Entrada de partículas: endocitosis
    • Metabolismo: utilización de los nutrientes por parte de la célula
      • Obtención de energía
      • Elaboración de las sustancias que necesita la célula
    • Eliminación de desechos al medio extracelular, a través de la membrana
    Los nutrientes que necesita una célula eucariota, en general, incluyen agua, iones, monosacáridos, aminoácidos y ácidos grasos. Los residuos producidos por las células como consecuencia de su actividad metabólica son, fundamentalmente, dióxido de carbono y  sustancias nitrogenadas no utilizables.

    El metabolismo celular

    El metabolismo es el conjunto de reacciones químicas y procesos físico-químicos que tienen lugar en el interior de un ser vivo. La célula contiene una gran cantidad de moléculas, en cantidades distintas, la mayor parte de las cuales se transforman en otras mediante diversas reacciones químicas que ocurren en la célula de forma coordinada. Un conjunto de reacciones quimicas encadenadas, tales que el producto de una de ellas es utilizado como sustrato de la siguiente, y que ocurren coordinadamente en la célula constituye una ruta metabólica.

    Todas las rutas metabólicas celulares están reguladas, lo que significa que están sometidas a control por parte de la célula para que su velocidad se adapte a sus necesidades. Este control se ejerce sobre enzimas clave dentro del proceso, mediante los mecanismos de regulación enzimática habituales.

    El metabolismo de una célula consta de un gran número de rutas metabólicas interrelacionadas entre sí, formando un esquema químico muy complejo pero que funciona de un modo totalmente coordinado.
    Un esquema como el anterior, que no es más que un resumen simplificado del metabolismo celular, puede interpretarse como si fuera el "plano del metro" de una ciudad. Las rutas metabólicas serían algo así como las rutas del metro, conectadas entre sí en ciertas "estaciones", representadas por compuestos clave. A lo largo del tiempo en cada "estación" se incorpora a la ruta un cierto número de moléculas; algunas siguen toda la ruta hasta su final, pero otras pueden cambiar en alguna "estación intermedia". Esas estaciones intermedias son sustancias que juegan un papel importante en el metabolismo celular, y suelen ser conocidas como intermediarios metabólicos.


    Panorámica general del metabolismo

    Las rutas metabólicas pueden clasificarse en dos grandes categorías: las rutas catabólicas (en su conjunto se denominan catabolismo) se encargan, en general, de degradar moléculas orgánicas proporcionando a la célula moléculas más pequeñas, que en muchos casos pueden ser utilizadas por otras rutas, energía química y poder reductor. Las rutas anabólicas (que constituyen el anabolismo) son, por el contrario, rutas que dan lugar a moléculas de mayor tamaño, partiendo de intermediarios metabólicos y utilizando para ello energía y poder reductor producidos en otras reacciones químicas. Por último, hay algunas rutas que sirven tanto para proporcionar energía como para formar nuevas moléculas que servirán en los procesos anabólicos de la célula. En ese caso se habla de rutas anfibólicas, siendo el ciclo de Krebs la más representativa de todas ellas.


    Las rutas metabólicas celulares se producen en tres niveles de complejidad molecular:
    1. Interconversión entre moléculas complejas y sus monómeros. Este nivel incluye la rotura de polímeros (polisacáridos, proteínas o ácidos nucleicos) para convertirse en sus monómeros (catabolismo) y la polimerización de los monómeros (monosacáridos, aminoácidos, nucleótidos) para formar polímeros (anabolismo).
    2. Interconversión entre moléculas orgánicas sencillas (intermediarios metabólicos). Estas reacciones no son propiamente anabólicas o catabólicas, sino que la célula las utiliza indistintamente para conseguir energía (por degradación de esos intermediarios metabólicos) o para sintetizar nuevas moléculas que vaya a necesitar a partir de otras diferentes que ya tenía.
    3. Paso de moléculas orgánicas sencillas a moléculas inorgánicas (catabolismo) o síntesis de moléculas orgánicas sencillas a partir de moléculas inorgánicas (anabolismo). Este último tipo de reacciones se da exclusivamente en los organismos autótrofos.
    Visión general del catabolismo

    La mayor parte de los organismos, tanto autótrofos como heterótrofos, comparten un mismo conjunto de rutas metabólicas catabólicas, lo que supone un apoyo indirecto a la hipótesis de que todos tienen un origen común. Asimismo, el catabolismo rinde los mismos tipos de productos en todos los organismos:
    • Energía química, generalmente en forma de ATP, obtenida sobre todo en reacciones de degradación oxidativa.
    • Poder reductor, es decir, algún tipo de compuesto químico que es capaz de ceder electrones (reducir) a otras sustancias orgánicas. La sustancia que más frecuentemente realiza esta función en los organismos es el NADH+H+, esto es, la forma reducida del nicotín adenín dinucleótido. Este tipo de compuestos, por otra parte, pueden utilizarse también para dar lugar a ATP en procesos de fosforilación oxidativa.
    • Precursores metabólicos, pequeñas moléculas que intervienen en otras reacciones químicas, especialmente anabólicas.
    Las reacciones de degradación oxidativa consisten en la transferencia de electrones de un compuesto a otro, en un proceso que supone una reducción de su energía interna, una parte de la cual corresponde a los electrones transferidos. Las reacciones de oxidación se producen siempre en paralelo a reacciones de reducción, ya que los electrones perdidos por el primer compuesto deben ser captados por otro. Algunas de estas reacciones son tan exotérmicas que proporcionan energía suficiente para formar un enlace entre dos grupos fosfato, transformando ADP y un fosfato inorgánico en ATP, mientras que otras ceden los electrones a alguna coenzima de oxidación reducción (como el NAD+) que, a su vez, pueden cederlos a otros compuestos en reacciones químicas diferentes. En los seres vivos, la transferencia de electrones se produce casi siempre por parejas, y  en general va acompañada de una transferencia de protones en la misma dirección.

    En cuanto a los precursores metabólicos, en realidad la célula utiliza básicamente unas cuantas sustancias, que forman parte simultáneamente de varias rutas metabolicas, para elaborar con ellas la mayor parte de los compuestos que necesita. Los más importantes de esos compuestos son los siguientes:
    Glucolisis

    Ciclo
    de Krebs
    Glucosa
    6 fosfato
    Acetil
    coenzima A
    Fructosa
    6 P
    α-oxoglutarato
    (α-cetoglutarato)
    Triosas
    fosfato
    Succinil
    coenzima A
    3
    fosfoglicerato
    Oxalacetato

    Fosfoenolpiruvato Ruta
    de las pentosas fosfato
    Piruvato

    Ribulosa
    5 fosfato


    Eritrosa
    fosfato

    Visión general del anabolismo

     Los seres vivos necesitan tomar de su entorno materia y energía. En cuanto a la materia, tanto el carbono como el nitrógeno son esenciales para el metabolismo de todos los organismos, y ambos elementos deben ser captados, en última instancia, de compuestos inorgánicos.

    Los organismos se clasifican según el modo en el que consiguen sus componentes y su energía. En función del proceso que utilizan para conseguir el carbono, los organismos se clasifican en:
    • Autótrofos: obtienen el carbono a partir de CO2, bien sea de la atmósfera, bien disuelto en el agua.
    • Heterótrofos: consiguen el carbono a partir de moléculas orgánicas procedentes de otros organismos.
    Por otra parte, según el procedimiento que utilizan para obtener su energía los organismos pueden clasificarse en:
    • Fototrofos: consiguen energía para sintetizar ATP a partir de la radiación electromagnética.
    • Quimiotrofos: utilizan exclusivamente reacciones químicas para sintetizar ATP


    Fotótrofos Quimiótrofos
    Autótrofos

    Consiguen
    el carbono para su metabolismo a partir del CO2 y la
    energía a partir de la luz

    Plantas, bacterias fotosintéticas y algunos protistas
    Consiguen
    el carbono para su metabolismo a partir del CO2 y la
    energía a partir de reacciones químicas

    Bacterias quimiolitotrofas

    Heterótrofos

    Consiguen
    el carbono a partir de compuestos orgánicos y la energía
    a partir de la luz

    Algunas bacterias
    Consiguen
    el carbono y la energía a partir de compuestos orgánicos

    Animales, hongos, muchas bacterias y protistas
      El anabolismo incluye el conjunto de todas las reacciones biosintéticas que ocurren en la célula. Se pueden distinguir tres tipos de reacciones:
      1. Formación de los monómeros que la célula utiliza en otros compuestos.
      2. Formación de los polímeros a partir de los monómeros.
      3. Formación de estructuras celulares (ensamblaje de los componentes).
      En general, estas reacciones requieren un aporte de energía química, que suele proceder del ATP, y de poder reductor, que las células obtienen de alguna coenzima de oxidación reducción, frecuentemente el NADH+H+. Los distintos tipos de organismos obtienen los electrones, en último término, de diferentes compuestos: los autótrofos obtienen electrones del agua o de otros compuestos inorgánicos reducidos mientras que los heterótrofos los consiguen de sustancias orgánicas reducidas.


      Autótrofos

      Heterótrofos

      Síntesis
      de monómeros a partir de moléculas inorgánicas

      Fotosíntesis

      Quimiosíntesis


      Síntesis
      de polímeros a partir de monómeros

      Rutas
      metabólicas comunes a todos los organismos

      Ensamblaje
      de componentes celulares

      Producción de ATP

      En todos los procesos metabólicos se intercambia energía química. Algunas reacciones químicas son espontáneas, y liberan energía que se aprovecha en otras o se pierde, mientras que otras reacciones metabólicas necesitan un aporte externo de energía. La célula necesita realizar tanto reacciones espontáneas como no espontáneas, por lo que es preciso que cuente con un sistema que pueda proporcionarle energía para éstas últimas. Esto es posible gracias al acoplamiento químico entre reacciones distintas.

      Se dice que dos procesos químicos están acoplados cuando un producto de uno de ellos es utilizado como sustrato por el otro. El aprovechamiento de la energía liberada en una reacción para llevar a cabo otra reacción no espontánea no es más que un caso particular de acoplamiento químico, en el que el producto aprovechado es la energía liberada en la primera reacción.

      Las células de todos los organismos utilizan un intermediario químico para acoplar energéticamente diferentes reacciones. Se trata del ATP (Adenosina Trifosfato), un nucleótido formado por adenina, ribosa y tres grupos fosfato encadenados. Los enlaces entre grupos fosfato requieren mucha energía para formarse, pero también liberan una gran cantidad de energía al romperse. Los seres vivos han desarrollado la capacidad de acoplar estas reacciones tanto a reacciones exotérmicas (que permiten fosforilar el ADP, es decir, crear un ATP a partir de la adenosina difosfato y un grupo fosfato inorgánico) como a reacciones endotérmicas hidrolizando el ATP en ADP y fosfato.

      Esta versatilidad del ATP, la posibilidad de utilizarlo como "portador" de energía en multitud de procesos diferentes hacen que se le considere la moneda universal de energía de todas las células.

      Dada la importancia del ATP en el funcionamiento de la célula, resulta también fundamental que la célula disponga de mecanismos para llevar a cabo la fosforilación, es decir, la formación del enlace entre el ADP y el fosfato inorgánico. Todas las células disponen de dos mecanismos distintos para poder llevar adelante este proceso clave de su funcionamiento: la fosforilación a nivel de sustrato y la fosforilación quimiosmótica.

      La fosforilación a nivel de sustrato consiste en el acoplamiento químico entre dos reacciones, siendo una de ellas precisamente la síntesis de ATP. Normalmente ocurre porque ambas reacciones están catalizadas por la misma enzima, o por el mismo complejo enzimático, por lo que la energía liberada por la primera es utilizada directamente en la segunda reacción.

      La fosforilación quimiosmótica es bastante más compleja. En este caso, el acoplamiento se produce entre dos procesos de diferente naturaleza: la síntesis de ATP, catalizada por una enzima llamada ATP sintasa (o simplemente ATPasa), y por otra el paso de una especie química a favor de gradiente de concentración a través de una membrana. La especie química en cuestión son los protones que, debido a que poseen carga eléctrica, no pueden atravesar las membranas biológicas por difusión, sino que deben hacerlo a través de un transportador de membrana. El acoplamiento quimiosmótico entre la síntesis de ATP y el transporte de protones se produce porque la ATP sintasa es, a la vez, el transportador que permite el paso de los protones.

      Sin embargo, para que se produzca el paso de los protones a través de una membrana es necesario que exista un gradiente de concentración, es decir, que la concentración de protones a ambos lados de la membrana sea diferente. Y eso necesita un sistema que acumule los protones a un lado de la membrana lo que, a su vez, necesita energía.

      La generación del gradiente de protones ocurre en las células utilizando la energía procedente de reacciones de oxidación reducción espontáneas. Como se ha comentado, la mayor parte de las redox biológicas suponen tanto transferencia de electrones como de protones. La generación del gradiente de protones necesario para sintetizar ATP se produce gracias a la actividad de un conjunto de proteínas, que reciben el nombre de cadenas transportadoras de electrones, que utilizan la energía de ciertas reacciones redox espontáneas para bombear protones a uno de los lados de una membrana biológica. Así pues, los elementos necesarios para sintetizar ATP mediante un proceso quimiosmótico son los siguientes:
      1. Una membrana biológica que separe por completo dos compartimentos celulares, entre los cuales generar el gradiente quimiosmótico de protones.
      2. Una sustancia de elevado poder reductor, capaz de ceder protones y electrones en un proceso espontáneo.
      3. Un conjunto de proteínas insertadas en la membrana biológica, que transporten los electrones hasta una sustancia final de mucho menor poder reductor (cadena de transporte electrónico) bombeando al mismo tiempo protones a uno de los lados de la membrana.
      4. La ATP sintasa (o ATPasa), también integrada en la membrana, que permita el paso de los protones a favor de gradiente de concentración entre los dos compartimentos, acoplando ese flujo a la síntesis de ATP.
      La fosforilación  quimiosmótica se produce en dos procesos de importancia fundamental para la vida:
      • La fosforilación oxidativa, común a todos los organismos aerobios.
        • La membrana en la que ocurre el proceso es la membrana mitocondrial interna, que separa el espacio intermembranoso (donde se acumulan los protones) y la matriz mitocondrial. En los procariotas el proceso ocurre en la membrana plasmática.
        • Las sustancias reducidas que proporcionan los protones y los electrones son coenzimas de oxidación-reducción (NADH+H+, FADH2), que se han producido en reacciones de degradación oxidativa de compuestos orgánicos.
        • La cadena transportadora de electrones incluye varios complejos multienzimáticos y algunos transportadores solubles en la membrana, y acaba cediendo los electrones y algunos protones al oxígeno para formar agua.
      • La fotofosforilación es característica de los organismos fotosintetizadores.
        • El proceso ocurre en la membrana interna del cloroplasto, que separa el espacio intermembranoso e intratilacoidal (donde se acumulan los protones) del estroma del cloroplasto. En los procariotas, es la membrana plasmática.
        • Las sustancias reducidas que proporcionan los protones y electrones son los pigmentos fotosintéticos (como la clorofila), aunque en los organismos que realizan la fotosíntesis oxigénica proceden, en último extemo, del agua.
        • Las cadenas de transporte electrónico incluyen los fotosistemas que captan la luz y diferentes transportadores, tanto fijos como solubles en membrana. Finalmente ceden sus electrones y algunos protones a coenzimas de oxidación reducción (como el NADPH+H+).

        martes, 9 de febrero de 2010

        Tipos celulares en eucariotas

        Si el nivel de organización celular de los procariotas coincide plenamente con una categoría taxonómica, el reino Moneras, no ocurre lo mismo con los eucariotas. En este caso, el mismo tipo general de organización es compartido por los cuatro reinos restantes, aunque entre ellos se presenten grandes diferencias morfológicas y estructurales. A grandes rasgos, el Reino Animales, el Reino Vegetales y el Reino Hongos poseen tipos celulares característicos, mientras que el Reino Protistas presenta una considerable variedad de tipos celulares.

        Las células animales

        La animal es el tipo celular que menos se diferencia del presunto tipo de célula "generalizado" con los orgánulos comunes a todos los eucariotas. En realidad, hay solo unos pocos orgánulos característicos de las células animales y que no se presentan, por ejemplo, en las vegetales:
        • Componentes del citoesqueleto
          • Centriolos
          • Cilios y flagelos (en algunas)
        • Especializaciones de membrana: 
          • Invaginaciones, microvellosidades
          • Estructuras de unión entre células.

          Especializaciones de membrana de la célula animal

          Las invaginaciones son repliegues de la membrana plasmática hacia el interior de la célula. En muchos casos, son zonas por las que se produce la endocitosis activa de diferentes elementos.

          Las microvellosidades son prolongaciones de la membrana plasmática con forma de dedo. En su interior hay filamentos de actina que les proporcionan soporte, para mantenerlos más o menos rígidos. La función de las microvellosidades es aumentar la superficie de la célula, con lo que se facilitan los procesos que tienen lugar a través de la membrana, en particular la absorción de sustancias.
          Las microvellosidades son características de las células intestinales.

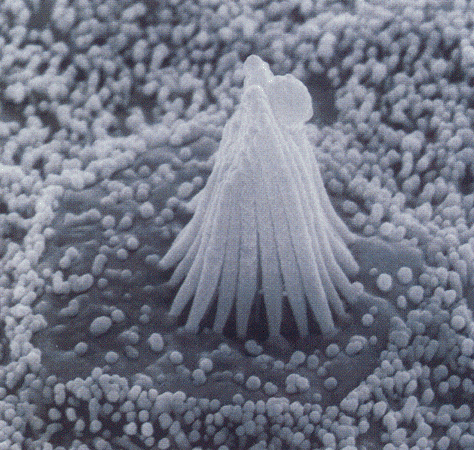
          Los estereocilios son también prolongaciones membranosas en forma de dedo, característicos en este caso del oido interno. Su función es sensorial: son capaces de detectar el movimiento del fluido en el que están inmersos, transmitiendo al cerebro una señal que permite identificar la dirección del movimiento del cuerpo.

          Uniones intercelulares: las células animales necesitan unirse a otras células adyacentes a ellas en el organismo. Estas uniones pueden ser de diferente naturaleza, en función de las necesidades de cada tejido; en algunos casos, es necesario que las células se unan estrechamente para formar una capa totalmente impermeable, por ejemplo para separar el exterior y el interior del cuerpo; en otros casos puede ocurrir que, a pesar de que la unión intercelular deba ser muy firme deba permitir la circulación de sustancias de una zona a otra del tejido. Por último en otros casos puede ser necesario que ciertas sustancias pasen de una célula a otra sin salir al medio extracelular. Los organismos animales tienen estructuras de unión entre células que permiten realizar todas esas funciones.
          • Las uniones adherentes forman un "cinturón" completo en torno a cada célula, uniéndola con las que la rodean. de esta forma se crea una banda impermeable, que impide la entrada o la salida de sustancias. Este tipo de uniones crea un tejido "impermeable", lo que las hace particularmente útiles en epitelios, tejidos que tapizan órganos separándolos de su entorno.
          • Las uniones estrechas son placas de unión que mantienen firmemente unidas a dos entre sí. Aunque la unión en sí misma es impermeable, el resto de la superficie en contacto no está tan íntimamente unidas, por lo que las sustancias pueden rodearlas. Un tipo particular de unión estrecha son los desmosomas y los hemidesmosomas, en los que juegan un importante papel los filamentos intermedios.
          • Las uniones comunicantes están formadas por canales iónicos de las dos membranas adyacentes enfrentados entre sí, de modo que se crea un conducto de comunicación entre ambas células, permitiendo el paso de iones de una a la otra. Hay que tener claro que los canales iónicos que forman estas uniones pueden estar abiertos o cerrados.
          Procesos dinámicos en la membrana

          La membrana de las células animales es su envoltura más externa, a través de la cual tienen lugar todos los procesos de relación de la célula con el exterior. Muchos de estos procesos tienen lugar a nivel molecular (intercambio de sustancias, reconocimiento celular, recepción de señales químicas) pero otros involucran a porciones de la membrana. Es el caso de la endocitosis y la exocitosis. El término endocitosis se utiliza, en general, para referirse a los procesos en los que la célula capta del medio extracelular diferentes tipos de elementos, aunque en sentido estricto se utiliza tan solo para la ingestión de partículas por parte de una célula, utilizando el término pinocitosis para la ingestión de líquidos y fagocitosis para el proceso mediante el cual una célula "se traga" a otra entera. Los elementos atrapados por la célula son envueltos por una porción de la membrana plasmática, que da lugar a una vesícula que se separa del resto de la superficie celular y se introduce en el citoplasma. Su destino suele ser la fusión con lisosomas para digerir las partículas ingeridas.

          En cuanto a la exocitosis, se refiere a la salida de la célula de sustancias que se encontraban en su interior englobadas en vesículas de membrana, procedentes en general del aparato de Golgi.

          Especializaciones del citoesqueleto

          Las células animales presentan siempre, como mínimo, un par de estructuras cilíndricas formadas por microtúbulos que reciben el nombre de centriolos. En todas las células animales aparece siempre un par de centriolos cerca de la envoltura nuclear, aunque en algunos casos pueden aparecer también en la base de cilios o flagelos.

          Estructuralmente los centriolos están formados por nueve tripletes de microtúbulos, distribuidos formando un cilindro sin ninguna otra estructura aparente en su interior. Los centriolos aparecen siempre de dos en dos, dispuestos uno perpendicularmente respecto al otro. Su función está relacionada con la dinámica de los microtúbulos, ya que el crecimiento de estas estructuras se produce a partir de estas estructuras. Debido a esta función, los centriolos se incluyen en un grupo de estructuras que reciben el nombre de "organizadores de microtúbulos".

          Los cilios y flagelos son estructuras básicamente iguales entre sí, hasta el punto de que solo se diferencian en su longitud y, en general, en el número en el que aparecen en la célula (los cilios suelen ser más numerosos que los flagelos, aunque puede haber excepciones; los flagelos son mucho más largos que los cilios).
          En ambas estructuras se aprecian las mismas partes: el axonema o tallo, que es la parte que sobresale del citoplasma celular, una zona de transición, que aparece al microscopio electrónico como una estructura densa que atraviesa la membrana plasmática y un cuerpo basal, cuya estructura es igual que la de los centriolos. La estructura interna de cilios y flagelos es idéntica: en su periferia, justo por debajo de la membrana plasmática, aparecen nueve pares (dobletes) de microtúbulos, unidos entre sí por otro tipo de proteínas. En el centro del tallo aparecen, además, dos microtúbulos separados entre sí. Por último, entre los dobletes de microtúbulos periféricos y el par de microtúbulos central pueden apreciarse estructuras radiales, también constituidas por proteína.

          La función fundamental de cilios y flagelos es la de proporcionar movilidad a la célula, si bien dentro de los organismos pluricelulares las células ciliadas pueden desempeñar otras funciones. Por ejemplo, las células ciliadas del epitelio respiratorio se ocupan de crear corrientes en el medio extracelular para eliminar las pequeñas partículas que hayan podido penetrar a través de las fosas nasales e impedir que lleguen hasta los alveolos.

          Finalmente, las células animales se encuentran inmersas en un medio extracelular, pero interno al organismo del que forman parte, que normalmente ha sido producido por ellas mismas. Desde el punto de vista de su composición, suele tratarse de un gel hidratado formado por polisacáridos y otras sustancias, aunque varía mucho de unos tejidos a otros. Las funciones que realiza son:
          • Rellenar los espacios que quedan entre las células.
          • Conferir resistencia mecánica (frente a la compresión, al estiramiento, etc.) a los tejidos.
          • Constituir el medio homeostático, que proporciona estabilidad química, nutricional y metabólico para las células.
          • Proporcionar fijación para el anclaje celular.
          • Constituir el medio por el que se produce el tránsito de las células.
          • Formar el medio por el cual se transmiten las diferentes señales que viajan entre las células.
          Las células vegetales


          Pared celular

          La característica distintiva más aparente de las células vegetales es la presencia de pared celular, la estructura más externa presente en este tipo de células. Se trata de una cubierta mucho más gruesa que la membrana plasmática, compuesta básicamente por una mezcla de polisacáridos:
          • Celulosa: es el componente mayoritario de la pared. Se trata de un homopolisacárido de glucosa con enlaces (β1→4) con ramificaciones (β1→6).
          • Hemicelulosas: una mezca de diferentes heteropolisacáridos.
          • Pectinas: grupo de heteropolímeros formados por derivados de monosacáridos.
          • Lignina: se encuentra en las células lignificadas (las que forman parte de la madera).

            La pared celular de todas las células vegetales tiene, al menos, dos capas: la lámina media, una capa rica en pectinas, que separa entre sí dos células adyacentes y la pared primaria, formada inmediatamente después de la división celular, que está formada por varias capas de microfibrillas de celulosa. Además, algunas células especializadas presentan también capas adicionales de pared celular que, en conjunto, reciben el nombre de pared secundaria. La pared secundaria se deposita entre la primaria y la membrana plasmática. Puede incluir varias capas, que se van formando a ritmo de una por año.
            En algunos casos, la pared celular presenta perforaciones llamadas plasmodesmos, a través de las cuales se produce el contacto directo entre los citoplasmas de células adyacentes.
            Vacuola

            La mayor parte del citoplasma de las células vegetales suele estar ocupada por una gran vacuola, que desplaza al resto de los orgánulos a la periferia celular. Esta característica no se da en las células inmaduras, en las que, en cambio, aparece un gran número de pequeñas vacuolas. A lo largo del desarrollo, estas vesículas se van fusionando entre sí hasta formar la estructura característica de las células maduras. En el interior de la vacuola vegetal se acumulan diferentes tipos de sustancias químicas, según la planta o incluso el tipo de célula de que se trate. Entre esas sustancias suelen aparecer agua, sales minerales, azúcares, proteínas e incluso sustancias tóxicas que la planta utiliza como defensa contra predadores. La vacuola vegetal, a pesar de su sencillez, realiza diferentes funciones de importancia para la célula:
            • Contribuye al mantenimiento de la presión osmótica celular.
            • Almacena diferentes tipos de sustancias.
            • Participa en procesos de detoxificación
            • Mantiene separados en compartimentos distintos sustancias que no deben mezclarse.
             Plastos

            Los plastos son un tipo de orgánulo exclusivo de las células vegetales, de forma ovalada y gran tamaño (de hecho, son mayores que la mayor parte de las bacterias). Tienen una estructura compleja, bastante relacionada con la de las mitocondrias, ya que presentan dos membranas separadas entre sí por un espacio, e incluyen en su interior una molécula de ADN circular y cerrada y ribosomas 70S.

            El interior de los plastos recibe el nombre de estroma, y en él aparece un gran número de vesículas de membrana aplanadas, con forma de moneda, llamadas tilacoides. Suelen estar apiladas formando conjuntos llamados grana (en singular granum), y su membrana es estructural y funcionalmente continua con la membrana interna del plasto.
            Aunque los más conocidos son los cloroplastos, existen también otros tipos de plastos en la célula: los hay incoloros (leucoplastos), bien porque son inmaduros, bien porque tienen como función principal el almacenamiento de almidón (amiloplastos). Los cloroplastos reciben su nombre de su color (cloro significa verde en griego) que, a su vez, se debe a la abundancia en ellos de clorofila, pero también los hay de otros colores (como amarillo o rojo) debido a la presencia en ellos de otros pigmentos. Los plastos coloreados reciben el nombre genérico de cromoplastos, y tienen como función transformar la energía electromagnética de la luz en energía química.
             

            La célula fúngica, otro modelo de organización eucariota
            Los hongos son organismos totalmente diferentes tanto de las plantas como de los animales. Sus células son muy sencillas, con unos pocos orgánulos; se parecen básicamente a las células vegetales (poseen pared celular, aunque sin celulosa, y presentan una gran vacuola central), aunque carecen de cloroplastos. La organización de su núcleo también es muy sencilla.


            sábado, 6 de febrero de 2010

            Una visita guiada a la célula

            (Adaptado de S. Berg)

            • La célula es el mínimo agrupamiento de materia que tiene todas las propiedades de la vida
              • Es el mínimo nivel de organización que puede considerarse vivo
              • Constituye la unidad básica de la vida
              • Realiza todas las funciones necesarias para mantenerse viva y reproducirse
            • Visión general de las células
              • Existen dos tipos básicos de células
                • Células procariotas
                  • Corresponden a los organismos del Reino Moneras
                  • No tienen núcleo
                    • El material genético se encuentra en un área de la célula llamada nucleoide
                  • Componentes visibles de todas las células procariotas
                    • Membrana plasmática
                    • Ribosomas 70S
                      • El tipo de ribosomas permite distinguir entre células procariotas y eucariotas
                    • Nucleoide
                    • Citoplasma
                  • Componentes visibles de algunas células procariotas
                    • Pared celular (en casi todas)
                    • Pili (cuando se reproducen sexualmente)
                    • Flagelos
                    • Mesosomas
                    • Membranas fotosintéticas (algunas bacterias)
                • Células eucariotas
                  • Se encuentran en cuatro reinos
                    • Protistas
                    • Hongos
                    • Plantas
                    • Animales
                  • Tienen núcleo auténtico
                    • Rodeado por una envuelta
                    • El núcleo contiene el ADN celular
                  • Componentes que están siempre presentes
                    • Membrana plasmática
                    • Citoplasma
                    • Núcleo
                    • Ribosomas 80S
                    • Orgánulos subcelulares
                    • Sistema endomembranoso
                    • Citoesqueleto
                      • Con diferentes características, pero todas las células eucariotas tienen algún tipo de citoesqueleto
                  • Componentes presentes en algunos casos
                    • Pared celular
                    • Glucocálix
                    • Ciertos orgánulos
            • Componentes de las células eucariotas
              • Núcleo
                • Es el elemento más visible de la célula
                • Su diámetro varía, pero está en torno a los 5μm de diámetro
                • Contenido nuclear
                  • Cromosomas
                    • Largas cadenas de ADN
                      • En el hombre, llegan a los 4 cm; cada célula humana tiene casi 2m en total
                      • Su número es característico de cada especie
                    • En eucariotas el ADN está asociado a proteínas
                      • Las proteínas hacen al ADN mucho más compacto
                      • El máximo grado de compactación se alcanza durante la mitosis
                  • Cromatina
                    • ADN + proteína
                • Envuelta nuclear
                  • Es una envoltura, no propiamente una membrana
                  • Rodea al núcleo y lo separa del citoplasma
                  • Está formada por dos membranas lipídicas
                • La envuelta nuclear tiene poros
                  • Controlan la entrada y salida de moléculas
                • La envuelta nuclear se continúa con el retículo endoplásmico
                • Nucleolo
                  • Es el lugar donde se sintetiza el ARNr
                  • En él empiezan a ensamblarse los ribosomas
                  • Solo está presente en células que no se están dividiendo
                • ARN mensajero
              • Ribosomas 80S
                • Se encuentran libres o adheridos al retículo endoplásmico
                  • Los libres sintetizan proteínas solubles
                  • Los adosados al retículo sintetizan proteínas de membrana o para la exportación
                • Compuestos por varias proteínas y varias moléculas de ARNr
                • Tienen dos subunidades de distinto tamaño; son activos cuando las subunidades están ensambladas.
              • Sistema endomembranoso
                • Las diferentes membranas del interior de la célula tienen un origen común
                  • Envuelta nuclear
                  • Retículo endoplásmico
                  • Aparato de Golgi
                  • Lisosomas
                  • Vesículas de secreción
                  • Vacuolas
                  • Membrana plasmática
                • Envuelta nuclear
                  • Se continúa con el retículo endoplásmico
                  • Separa el material genético del citoplasma
                • Retículo endoplásmico
                  • Red de túbulos, compartimentos y sacos aplanados interconectados
                  • Encierra un espacio llamado "lumen"
                  • Tipos de retículo endoplásmico
                    • Rugoso
                      • Dotado de ribosomas que le dan un aspecto "rugoso" al microscopio
                      • Los ribosomas sintetizan proteínas de membrana
                    • Liso
                      • No presenta ribosomas
                      • Sintetiza fosfolípidos
                      • Se usa para la detoxificación de la célula
                    • El conjunto de ambos retículos sintetiza la membrana celular
                • Aparato de Golgi
                  • Vesículas formadas a partir del retículo endoplásmico
                  • La membrana y el contenido de las vesículas sufren modificaciones al pasar por el Golgi
                • Lisosomas
                  • Vesículas formadas por una sola membrana
                  • Contienen enzimas hidrolíticos capaces de romper todos los tipos de macromoléculas celulares
                  • Son centros de digestión y reciclaje celular
                • Vacuolas
                  • Características de las células vegetales
                  • Normalmente una única vacuola, que ocupa hasta el 90% del volumen celular
                  • Rodeadas de una única membrana
                  • Se usan como sistema de almacenamiento intracelular
                    • Iones inorgánicos
                    • Ácidos orgánicos
                    • A veces enzimas hidrolíticas y sustancias tóxicas
                • Flujo de membrana en la célula
                  • La membrana nueva se sintetiza en el retículo endoplásmico
                  • Las vesículas de membrana salen del retículo y viajan hacia el aparato de Golgi
                  • Las vesículas se fusionan entre sí para formar los dictiosomas del Golgi
                  • La membrana y las proteínas son "marcadas" durante su paso por el Golgi
                    • Las "marcas químicas" determinan el destino celular de los distintos componentes
              • Orgánulos productores de energía
                • Posiblemente originados por endosimbiosis de organismos primitivos
                • Cloroplastos
                  • Se encuentran únicamente en las plantas
                  • Rodeados por dos membranas totalmente separadas entre sí
                    • Dejan un espacio intermembranoso esencial para su funcionamiento
                  • En su interior aparecen sacos de membrana aplanados, llamados tilacoides
                    • El interior de los tilacoides es continuo con el espacio intermembranoso
                  • El espacio central del cloroplasto se denomina estroma
                    • Incluye una molécula de ADN circular y cerrado y ribosomas 70S
                  • Llevan a cabo la fotosíntesis
                • Mitocondrias
                  • Se encuentran en todos los organismos eucariotas
                  •  Rodeadas por dos membranas totalmente separadas entre sí
                    • Dejan un espacio llamado espacio intermembranoso
                  • La membrana interna presenta invaginaciones llamadas crestas
                  • El interior de la mitocondria se denomina matriz
                    • Contiene una molécula de ADN circular y cerrado y ribosomas 70S
                • En ambos casos, la energía se produce en la membrana interna, que tiene mucha más superficie que la externa
              • Citoesqueleto
                • Red de fibras interconectadas a lo largo de todo el citoplasma
                • Función del citoesqueleto
                  • Algunas fibras proporcionan soporte mecánico
                    • Importante para las células animales, porque no tienen pared
                    • Puntos de anclaje para orgánulos y enzimas
                  • Algunas fibras están relacionadas con la motilidad
                  • Otras sirven como "caminos" para motores moleculares que se mueven respecto al citoesqueleto
                • Tipos de fibras del citoesqueleto
                  • Microtúbulos
                    • Tubos huecos formados por unión de proteínas globulares (tubulina)
                    • Presentes en todos los eucariotas
                    • No se contraen, proporcionan soporte a la célula y sirven de "pistas" para el movimiento de macromoléculas y orgánulos
                  • Microfilamentos
                    • Varillas macizas constituidas por unión de proteínas globulares (actina)
                    • Pueden asociarse con otras proteínas
                      • Actina-miosina: filamentos contráctiles
                  • Filamentos intermedios
                    • Su composición y estructura varía de unas células a otras
                    • En algunos casos se usan como indicadores tumorales
              • Superficie celular
                • Pared celular: estructura rígida, externa a la membrana plasmática, que rodea algunos tipos de células
                  • Vegetales: ayuda a distinguirlas de las células animales
                  • También es frecuente en procariotas, hongos y protistas
                  • Nunca aparece en células animales
                  • Su estructura varía de un reino a otro
                  • No es esencial para la vida
                • Pared celular vegetal
                  • Mucho más gruesa que la membrana plasmática
                  • Muy rígida y resistente
                  • Composición
                    • Fibras de celulosa
                    • Embebidas en una matriz de otros polisacáridos
                • Uniones intercelulares
                  • Plasmodesmos
                    • Conexiones entre células vegetales
                    • Suponen la conexión citoplasma a citoplasma entre dos células adyacentes
                  • Desmosomas: unión física muy fuerte entre dos células
                    • Reforzada por filamentos intercelulares
                    • Función: mantener juntas las células
                  • Uniones estrechas:
                    • Cinturón que rodea totalmente la célula
                    • No deja espacio entre células adyacentes
                  • Uniones tipo "gap"
                    • Permiten contacto citoplasma a citoplasma entre células animales
                    • Hacen posible la difusión de pequeñas moléculas

              miércoles, 3 de febrero de 2010

              Estructura celular: células eucariotas

              El segundo gran modelo de organización celular es el característico de los organismos eucariotas, que incluyen a los protistas, los hongos, las plantas y los animales. Aunque existen diferencias significativas entre ellos, todos comparten la misma organización básica, caracterizada por la compartimentalización interna, posible gracias a la presencia de un sistema de membranas intracelular.

              La compartimentalización ofrece a la célula nuevas posibilidades; por una parte, los diferentes compartimentos pueden especializarse en funciones distintas, lo que facilita la coordinación entre distintas funciones celulares y la realización de varias al mismo tiempo. Por otra parte, las membranas intracelulares son utilizadas como mecanismo de producción de energía mediante la creación de gradientes quimiosmóticos en el interior de la célula (mitocondria, cloroplasto). Por último, los diferentes compartimentos pueden tener ambientes químicos distintos, incluso totalmente diferentes. Por ejemplo, el citoplasma de las células eucariotas es anaerobio, hasta el punto de que el oxígeno resulta tóxico en esa zona de la célula, mientras que la matriz mitocondrial es aerobia, y permite la utilización del oxígeno en procesos metabólicos.

              De hecho, se supone que el origen de las células eucariotas es el resultado de la necesidad de adaptarse a un ambiente químico diferente al que existía previamente. Según la hipótesis endosimibionte, antes de la revolución del oxígeno (la aparición de la fotosíntesis oxigénica que dio lugar a que la atmósfera acumulara oxígeno) solo existían células procariotas. La acumulación de oxígeno en la atmósfera propició la aparición de algunas células también procariotas capaces de utilizarlo en sus procesos metabólicos (las proto-mitocondrias), mientras que otras habrían evolucionado "englobando" con su membrana este tipo celular (y dando lugar a los eucariotas heterótrofos) o también a las células fotosintéticas (proto-cloroplastos), originando los eucariotas autótrofos. El sistema endomembranoso (los orgánulos como el retículo endoplásmico, el aparato de Golgi, las vacuolas o la membrana nuclear) habría evolucionado previamente a partir de invaginaciones de la membrana plasmática de la célula.


              Aunque no existe una "célula eucariota generalizada" es posible hacer un listado de todos los orgánulos y estructuras comunes a todas las células con este grado de organización, si bien hay que tener en cuenta que las células reales difieren siempre de este modelo simplificado.


              Las características generales de este tipo de células son las siguientes:
              • Nucleoplasma:
                • El material genético de la célula siempre está formado por varias moléculas.
                • Los cromosomas son moléculas de ADN de cadena doble, lineal y terminadas en secuencias de ADN especiales llamadas "telómeros"
                • El ADN está asociado a histonas.
                • El conjunto del material genético está rodeado de una doble membrana (membrana nuclear) formando un compartimento separado, el núcleo.
              • El material genético se replica mediante mitosis.
              • Organización del citoplasma:
                • Los ribosomas tienen un coeficiente de sedimentación de 80S (son algo más grandes que los bacterianos).
                • Poseen citoesqueleto y corrientes citoplasmáticas.
                • Existen orgánulos diferenciados, constituidos por membrana, con funciones especializadas.
              Aspectos generales de la organización eucariota

              El material genético de los procariotas es mucho más complejo que el de los procariotas. Consta siempre de varias moléculas, lo que supone una cantidad de información considerablemente mayor. Además, el ADN está organizado en forma de cromosomas, estructuras en las que un conjunto de proteínas (entre ellas las histonas) empaquetan y protegen el material genético propiamente dicho. Por último, el material genético y todos los compuestos relacionados directamente con su replicación y expresión están separados del resto del citoplasma por un sistema membranoso.

              La organización del citoplasma también es mucho más compleja: tiene una estructura de sostén, constituida por varios tipos de proteínas, que recibe el nombre de citoesqueleto. Además posee varios sistemas de membrana, diferenciados en estructura y función (orgánulos membranosos).

              Orgánulos comunes a todas las células eucariotas

              Las células eucariotas incluyen dos tipos diferentes de ribosomas: los de su citoplasma tienen un coeficiente de sedimentación (parámetro relacionado con su masa y con su forma) de 80S. Su subunidad mayor tiene un coeficiente de sedimentación de 60S y la pequeña de 40S. Este tipo de ribosomas se encuentran tanto libres en el citoplasma como adheridos a algunos sistemas de membrana del citoplasma, concretamente a una parte de su retículo endoplásmico. Los ribosomas libres se encargan de sintetizar las proteínas que la célula necesita en su citoplasma, mientras que los que están unidos al retículo se encargan de sintetizar proteínas que van a quedar en el interior del sistema endomembranoso (en el aparato de Golgi, en el retículo endoplásmico o en algunas vesículas especializadas, como los lisosomas) o que van a ser secretadas al exterior de la célula para que cumplan su función allí.

              Pero, por otra parte, las células eucariotas cuentan también con ribosomas 70S, idénticos a los que se encuentran en los procariotas, en el interior de sus orgánulos más complejos: mitocondrias y plastos. Este hecho, junto a la presencia de ADN circular y cerrado y la doble membrana de estos orgánulos, apoya la hipótesis endosimbionte para explicar su origen.

              Todas las células eucariotas poseen también vesículas o bolsas de membrana, de estructura sencilla (básicamente esféricas, o deformadas), que se diferencian entre sí fundamentalmente por su función. Entre esas estructuras se encuentran las vacuolas de las células vegetales (su nombre procede de vacuum, vacío, porque al microscopio no se aprecia su contenido; en realidad contienen líquido de composición diferente al citoplasma), las vesículas de transporte que se mueven entre diferentes orgánulos celulares llevando sustancias que no se mezclan con el citoplasma, o cuerpos más o menos especializados como los lisosomas, que contienen enzimas capaces de romper otras proteínas, y que no pueden mezclarse con otros componentes celulares sin riesgo de destruirlos. Los peroxisomas se ocupan de eliminar sustancias tóxicas de la célula mediante su oxidación.

              El siguiente nivel de complejidad en las estructuras intracelulares está constituido por los sistemas membranosos complejos (retículo endoplásmico liso y rugoso, aparato de Golgi y membrana celular), que pueden diferenciarse entre sí tanto por su morfología como por su función.

              El retículo endoplásmico liso es un conjunto de cisternas de membrana, típicamente en forma de tubo, que en su conjunto forman un sistema de tuberías interconectadas que recorren buena parte de la célula, aunque puede tener distintos aspectos en células diferentes. Su principal característica distintiva es que no presenta ribosomas adheridos. Las funciones que realiza son las siguientes:
              • Participa en la síntesis de lípidos (ácidos grasos, triacilglicéridos y fosfolípidos) y en el transporte de estas sustancias a través de la célula.
              • Posee enzimas detoxificantes, que metabolizan y eliminan el alcohol y otras sustancias químicas.
               El retículo endoplásmico rugoso es un conjunto de cisternas y conductos que se distribuye por toda la célula, aunque su aspecto más típico es el de un conjunto de sacos aplanados. El término "rugoso" que se utiliza para designarlo se refiere a su aspecto en las micrografías electrónicas, en las que se observa que su membrana presenta, hacia su cara citoplasmática, puntos oscuros que sobresalen de la línea de membrana. Se trata de ribosomas que se encuentran adheridos a la superficie de la membrana y que vierten las proteínas que sintetizan directamente al interior de las vesículas manteniendolas, por tanto, separadas del citoplasma. Las funciones que realiza son:
              • Síntesis de proteínas destinadas al interior de las vesículas de membrana (lisosomas), que se incorporan a las membranas (proteínas integrales de membrana) o destinadas a la secreción.
              • Glucosilación de proteínas.
              • Circulación intracelular de sustancias que no deben mezclarse con el contenido citoplasmático.
              El aparato de Golgi es un conjunto de sacos aplanados, que reciben el nombre de dictiosomas. Se encuentran apilados unos sobre otros, y típicamente tienen un aspecto curvado, en general con la cara convexa orientada hacia el núcleo. Sus funciones son, fundamentalmente:
              • Modificación química de diversas sustancias producidas en la célula, para que puedan adquirir su forma activa (glucosilación, fosforilación) o para identificar su destino final, dentro o fuera de la célula (se unen sustancias que actúan como señal, en particular oligosacáridos).
              • Secreción celular: todas las sustancias secretadas por la célula pasan por el aparato de Golgi.
              • Producción de membrana para otros sistemas celulares, como los lisosomas o la membrana externa de la célula.

              El núcleo celular es una estructura que contiene el material genético celular en el interior de un sistema membranoso. Los elementos que lo forman son:

              • La envoltura nuclear, una doble membrana que lo separa del citoplasma y que se continúa con el retículo endoplásmico rugoso. Al igual que éste, la cara externa de la membrana presenta ribosomas adosados. El sistema de doble membrana está atravesado por "poros", estructuras proteicas complejas que desempeñan una función de "diafragma", ya que tienen la posibilidad de cerrarse o abrirse, permitiendo la salida de moléculas de ARN.
              • La lámina nuclear, una zona situada inmediatamente por debajo de la zona interna de la membrana nuclear, formada por filamentos proteicos que tienen como función proporcionar sostén al núcleo.
              • El nuceloplasma es la zona poco diferenciada que contiene el resto de los elementos nucleares.
              • El nucleolo es una zona que presenta aspecto diferente al resto del núcleo. Se sabe que en él se está sintetizando activamente ARN ribosómico a lo largo de casi todo el tiempo.
              • La cromatina es el conjunto de material genético de la célula. Durante la interfase, es decir, mientras la célula está funcionalmente activa, se encuentra desespiralizada, por lo que no se observan los cromosomas. Por el contrario, durante los periodos de división, el ADN se empaqueta hasta formar los cromosomas, que sí pueden observarse.
              El retículo endoplásmico liso, el rugoso y la membrana nuclear están interconectados, formando un sistema endomembranoso cuyo espacio interno está interconectado.
              La mitocondria es uno de los orgánulos celulares de mayor complejidad. Está presente en la práctica totalidad de las células eucariotas. Al microscopio aparece como un cuerpo alargado, del tamaño y forma de un bacilo. La observación de su estructura permite apreciar que posee un sistema de dos membranas, separadas entre sí por una zona llamada espacio intermembranoso. La membrana interna suele presentar un conjunto de invaginaciones en forma de tabique que reciben el nombre de crestas mitocondriales.

              La presencia de las crestas mitocondriales indica que la mitocondria maximiza la proporción entre la superficie de su membrana interna y su volumen, lo que indica que la membrana interna tiene una importancia considerable en su funcionamiento. Se sabe, en efecto, que una parte importante de los procesos metabólicos que ocurren en la mitocondria se producen, precisamente, en su membrana interna.

              El interior de la mitocondria se denomina matriz mitocondrial, y es bastante similar al interior de una célula procariota. Al igual que estas células, presenta un genóforo propio, constituido por una única molécula de ADN bicatenario circular, cerrado y no asociado a histonas. Los genes de este genóforo se expresan en la mitocondria, y dan lugar a algunas (pero no a todas) de las proteínas que la mitocondria utiliza en su funcionamiento. También aparecen en la matriz mitocondrial ribosomas similares a los bacterianos, es decir, con un coeficiente de sedimentación de 70S y subunidades 50S y 30S. Estas características comunes con los procariotas refuerzan la hipótesis de su origen endosimbionte. También apoya esta hipótesis el hecho de que la mitocondria se reproduzca autónomamente dentro de la célula, replicando y transmitiendo su material genético a las nuevas mitocondrias, sin que haya relacion directa con los procesos generales de reproducción celular.

              En cuanto a las funciones mitocondriales, la más importante es la de proporcionar energía al resto de la célula, gracias a que en su interior (matriz celular y membrana interna) ocurren algunas de las rutas metabólicas más importantes: el ciclo de Krebs, la fosforilación oxidativa y la β-oxidación. Puesto que la mitocondria es el único orgánulo celular capaz de utilizar el oxígeno, es en su interior donde finalizan los procesos degradativos de los combustibles metabólicos. Algunas de estas rutas metabólicas, en particular el ciclo de Krebs, sirven también para proporcionar a la célula sustancias que intervienen en diferentes procesos celulares (intermediarios metabólicos).

              El citoesqueleto o esqueleto celular es un conjunto de estructuras filamentosas de naturaleza proteica entre cuyas funciones destacan mantener la forma celular, o permitir sus cambios, permitir la movilidad o inmovilidad de los orgánulos y participar en la división del citoplasma celular (citocinesis) durante los procesos de división celular.
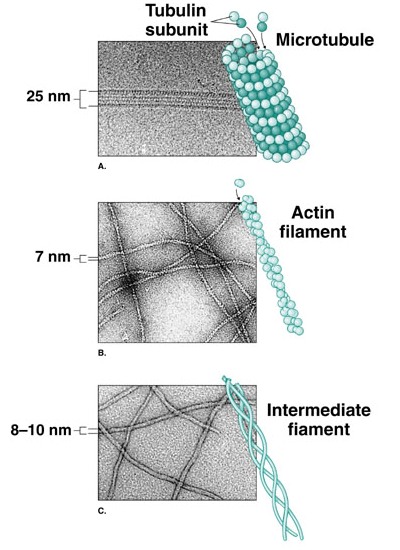
              El citoesqueleto tiene tres tipos de componentes fundamentales: filamentos de actina (microfilamentos), filamentos intermedios y microtúbulos.
              • Los microfilamentos son fibras de unos 7 nm de diámetro, constituidas por dos cadenas de actina. La actina es una proteína globular que puede formar largas cadenas por unión de un gran número de moléculas individuales. Para formar los microfilamentos, dos de estas cadenas constituidas por actina polimerizada se enrollan entre sí formando una espiral. Aparecen especialmente por debajo de la membrana celular, formando una especie de malla que contribuye a mantener la forma de la célula. También son abundantes en las protuberancias celulares (microvellosidades, pseudópodos) o en zonas en las que se dan procesos de comunicación intercelular. Por último, la combinación de la actina con la miosina permite la contracción celular, por ejemplo en las fibras musculares.
              • Los filamentos intermedios son ligeramente más gruesos que los microfilamentos. En realidad se usa este nombre para referirse a fibras celulares de diferente composición, que básicamente participan en el mantenimiento de la estructura de la célula, mediante el establecimiento de una red tridimensional que se extiende por toda la célula a modo de un andamiaje interno.
              • Los microtúbulos son cilindros huecos de unos 25 nm de diámetro. En un corte transversal, se observa que el cilindro está formado por trece filamentos que, a su vez, son el resultado de la polimerización de una proteína globular, la tubulina que, a su vez, tiene dos subunidades. Los microtúbulos son estructuras muy dinámicas, que pueden formarse o deshacerse según las necesidades de la célula. Su crecimiento tiene lugar en una única dirección, por lo que se dice que están polarizados (uno de sus extremos, el +, es el que crece, mientras que el otro, llamado -, es el lado por el que se van separando las moléculas de tubulina). En general, los microtúbulos están asociados siempre a una estructura llamada centro organizador de microtúbulos. Pueden existir varios de estos orgánulos en la célula, por ejemplo los corpúsculos basales de cilios y flagelos, o los centriolos, pero en todo caso parecen encargarse de dirigir la polimerización y despolimerización de los microtúbulos relacionados con ellos.
              La animación anterior muestra un modelo de la polimerización y despolimerización de los microtúbulos.
              Las funciones que realizan los microtúbulos son:
              • Contribuyen a mantener la forma de la célula.
              • Participan en el transporte de partículas y orgánulos por el citoplasma

              •  Forman parte del huso acromático, que interviene en la división celular de las células animales.
              • Forman parte de los cilios y flagelos, y de los centríolos en las células que los presentan.