martes, 9 de febrero de 2010

Tipos celulares en eucariotas

Si el nivel de organización celular de los procariotas coincide plenamente con una categoría taxonómica, el reino Moneras, no ocurre lo mismo con los eucariotas. En este caso, el mismo tipo general de organización es compartido por los cuatro reinos restantes, aunque entre ellos se presenten grandes diferencias morfológicas y estructurales. A grandes rasgos, el Reino Animales, el Reino Vegetales y el Reino Hongos poseen tipos celulares característicos, mientras que el Reino Protistas presenta una considerable variedad de tipos celulares.

Las células animales

La animal es el tipo celular que menos se diferencia del presunto tipo de célula "generalizado" con los orgánulos comunes a todos los eucariotas. En realidad, hay solo unos pocos orgánulos característicos de las células animales y que no se presentan, por ejemplo, en las vegetales:
  • Componentes del citoesqueleto
    • Centriolos
    • Cilios y flagelos (en algunas)
  • Especializaciones de membrana: 
    • Invaginaciones, microvellosidades
    • Estructuras de unión entre células.

    Especializaciones de membrana de la célula animal

    Las invaginaciones son repliegues de la membrana plasmática hacia el interior de la célula. En muchos casos, son zonas por las que se produce la endocitosis activa de diferentes elementos.

    Las microvellosidades son prolongaciones de la membrana plasmática con forma de dedo. En su interior hay filamentos de actina que les proporcionan soporte, para mantenerlos más o menos rígidos. La función de las microvellosidades es aumentar la superficie de la célula, con lo que se facilitan los procesos que tienen lugar a través de la membrana, en particular la absorción de sustancias.
    Las microvellosidades son características de las células intestinales.

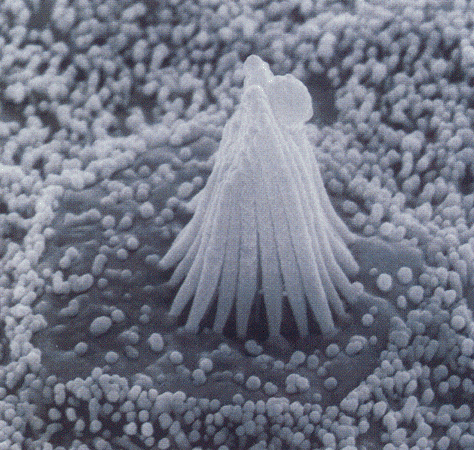
    Los estereocilios son también prolongaciones membranosas en forma de dedo, característicos en este caso del oido interno. Su función es sensorial: son capaces de detectar el movimiento del fluido en el que están inmersos, transmitiendo al cerebro una señal que permite identificar la dirección del movimiento del cuerpo.

    Uniones intercelulares: las células animales necesitan unirse a otras células adyacentes a ellas en el organismo. Estas uniones pueden ser de diferente naturaleza, en función de las necesidades de cada tejido; en algunos casos, es necesario que las células se unan estrechamente para formar una capa totalmente impermeable, por ejemplo para separar el exterior y el interior del cuerpo; en otros casos puede ocurrir que, a pesar de que la unión intercelular deba ser muy firme deba permitir la circulación de sustancias de una zona a otra del tejido. Por último en otros casos puede ser necesario que ciertas sustancias pasen de una célula a otra sin salir al medio extracelular. Los organismos animales tienen estructuras de unión entre células que permiten realizar todas esas funciones.
    • Las uniones adherentes forman un "cinturón" completo en torno a cada célula, uniéndola con las que la rodean. de esta forma se crea una banda impermeable, que impide la entrada o la salida de sustancias. Este tipo de uniones crea un tejido "impermeable", lo que las hace particularmente útiles en epitelios, tejidos que tapizan órganos separándolos de su entorno.
    • Las uniones estrechas son placas de unión que mantienen firmemente unidas a dos entre sí. Aunque la unión en sí misma es impermeable, el resto de la superficie en contacto no está tan íntimamente unidas, por lo que las sustancias pueden rodearlas. Un tipo particular de unión estrecha son los desmosomas y los hemidesmosomas, en los que juegan un importante papel los filamentos intermedios.
    • Las uniones comunicantes están formadas por canales iónicos de las dos membranas adyacentes enfrentados entre sí, de modo que se crea un conducto de comunicación entre ambas células, permitiendo el paso de iones de una a la otra. Hay que tener claro que los canales iónicos que forman estas uniones pueden estar abiertos o cerrados.
    Procesos dinámicos en la membrana

    La membrana de las células animales es su envoltura más externa, a través de la cual tienen lugar todos los procesos de relación de la célula con el exterior. Muchos de estos procesos tienen lugar a nivel molecular (intercambio de sustancias, reconocimiento celular, recepción de señales químicas) pero otros involucran a porciones de la membrana. Es el caso de la endocitosis y la exocitosis. El término endocitosis se utiliza, en general, para referirse a los procesos en los que la célula capta del medio extracelular diferentes tipos de elementos, aunque en sentido estricto se utiliza tan solo para la ingestión de partículas por parte de una célula, utilizando el término pinocitosis para la ingestión de líquidos y fagocitosis para el proceso mediante el cual una célula "se traga" a otra entera. Los elementos atrapados por la célula son envueltos por una porción de la membrana plasmática, que da lugar a una vesícula que se separa del resto de la superficie celular y se introduce en el citoplasma. Su destino suele ser la fusión con lisosomas para digerir las partículas ingeridas.

    En cuanto a la exocitosis, se refiere a la salida de la célula de sustancias que se encontraban en su interior englobadas en vesículas de membrana, procedentes en general del aparato de Golgi.

    Especializaciones del citoesqueleto

    Las células animales presentan siempre, como mínimo, un par de estructuras cilíndricas formadas por microtúbulos que reciben el nombre de centriolos. En todas las células animales aparece siempre un par de centriolos cerca de la envoltura nuclear, aunque en algunos casos pueden aparecer también en la base de cilios o flagelos.

    Estructuralmente los centriolos están formados por nueve tripletes de microtúbulos, distribuidos formando un cilindro sin ninguna otra estructura aparente en su interior. Los centriolos aparecen siempre de dos en dos, dispuestos uno perpendicularmente respecto al otro. Su función está relacionada con la dinámica de los microtúbulos, ya que el crecimiento de estas estructuras se produce a partir de estas estructuras. Debido a esta función, los centriolos se incluyen en un grupo de estructuras que reciben el nombre de "organizadores de microtúbulos".

    Los cilios y flagelos son estructuras básicamente iguales entre sí, hasta el punto de que solo se diferencian en su longitud y, en general, en el número en el que aparecen en la célula (los cilios suelen ser más numerosos que los flagelos, aunque puede haber excepciones; los flagelos son mucho más largos que los cilios).
    En ambas estructuras se aprecian las mismas partes: el axonema o tallo, que es la parte que sobresale del citoplasma celular, una zona de transición, que aparece al microscopio electrónico como una estructura densa que atraviesa la membrana plasmática y un cuerpo basal, cuya estructura es igual que la de los centriolos. La estructura interna de cilios y flagelos es idéntica: en su periferia, justo por debajo de la membrana plasmática, aparecen nueve pares (dobletes) de microtúbulos, unidos entre sí por otro tipo de proteínas. En el centro del tallo aparecen, además, dos microtúbulos separados entre sí. Por último, entre los dobletes de microtúbulos periféricos y el par de microtúbulos central pueden apreciarse estructuras radiales, también constituidas por proteína.

    La función fundamental de cilios y flagelos es la de proporcionar movilidad a la célula, si bien dentro de los organismos pluricelulares las células ciliadas pueden desempeñar otras funciones. Por ejemplo, las células ciliadas del epitelio respiratorio se ocupan de crear corrientes en el medio extracelular para eliminar las pequeñas partículas que hayan podido penetrar a través de las fosas nasales e impedir que lleguen hasta los alveolos.

    Finalmente, las células animales se encuentran inmersas en un medio extracelular, pero interno al organismo del que forman parte, que normalmente ha sido producido por ellas mismas. Desde el punto de vista de su composición, suele tratarse de un gel hidratado formado por polisacáridos y otras sustancias, aunque varía mucho de unos tejidos a otros. Las funciones que realiza son:
    • Rellenar los espacios que quedan entre las células.
    • Conferir resistencia mecánica (frente a la compresión, al estiramiento, etc.) a los tejidos.
    • Constituir el medio homeostático, que proporciona estabilidad química, nutricional y metabólico para las células.
    • Proporcionar fijación para el anclaje celular.
    • Constituir el medio por el que se produce el tránsito de las células.
    • Formar el medio por el cual se transmiten las diferentes señales que viajan entre las células.
    Las células vegetales


    Pared celular

    La característica distintiva más aparente de las células vegetales es la presencia de pared celular, la estructura más externa presente en este tipo de células. Se trata de una cubierta mucho más gruesa que la membrana plasmática, compuesta básicamente por una mezcla de polisacáridos:
    • Celulosa: es el componente mayoritario de la pared. Se trata de un homopolisacárido de glucosa con enlaces (β1→4) con ramificaciones (β1→6).
    • Hemicelulosas: una mezca de diferentes heteropolisacáridos.
    • Pectinas: grupo de heteropolímeros formados por derivados de monosacáridos.
    • Lignina: se encuentra en las células lignificadas (las que forman parte de la madera).

      La pared celular de todas las células vegetales tiene, al menos, dos capas: la lámina media, una capa rica en pectinas, que separa entre sí dos células adyacentes y la pared primaria, formada inmediatamente después de la división celular, que está formada por varias capas de microfibrillas de celulosa. Además, algunas células especializadas presentan también capas adicionales de pared celular que, en conjunto, reciben el nombre de pared secundaria. La pared secundaria se deposita entre la primaria y la membrana plasmática. Puede incluir varias capas, que se van formando a ritmo de una por año.
      En algunos casos, la pared celular presenta perforaciones llamadas plasmodesmos, a través de las cuales se produce el contacto directo entre los citoplasmas de células adyacentes.
      Vacuola

      La mayor parte del citoplasma de las células vegetales suele estar ocupada por una gran vacuola, que desplaza al resto de los orgánulos a la periferia celular. Esta característica no se da en las células inmaduras, en las que, en cambio, aparece un gran número de pequeñas vacuolas. A lo largo del desarrollo, estas vesículas se van fusionando entre sí hasta formar la estructura característica de las células maduras. En el interior de la vacuola vegetal se acumulan diferentes tipos de sustancias químicas, según la planta o incluso el tipo de célula de que se trate. Entre esas sustancias suelen aparecer agua, sales minerales, azúcares, proteínas e incluso sustancias tóxicas que la planta utiliza como defensa contra predadores. La vacuola vegetal, a pesar de su sencillez, realiza diferentes funciones de importancia para la célula:
      • Contribuye al mantenimiento de la presión osmótica celular.
      • Almacena diferentes tipos de sustancias.
      • Participa en procesos de detoxificación
      • Mantiene separados en compartimentos distintos sustancias que no deben mezclarse.
       Plastos

      Los plastos son un tipo de orgánulo exclusivo de las células vegetales, de forma ovalada y gran tamaño (de hecho, son mayores que la mayor parte de las bacterias). Tienen una estructura compleja, bastante relacionada con la de las mitocondrias, ya que presentan dos membranas separadas entre sí por un espacio, e incluyen en su interior una molécula de ADN circular y cerrada y ribosomas 70S.

      El interior de los plastos recibe el nombre de estroma, y en él aparece un gran número de vesículas de membrana aplanadas, con forma de moneda, llamadas tilacoides. Suelen estar apiladas formando conjuntos llamados grana (en singular granum), y su membrana es estructural y funcionalmente continua con la membrana interna del plasto.
      Aunque los más conocidos son los cloroplastos, existen también otros tipos de plastos en la célula: los hay incoloros (leucoplastos), bien porque son inmaduros, bien porque tienen como función principal el almacenamiento de almidón (amiloplastos). Los cloroplastos reciben su nombre de su color (cloro significa verde en griego) que, a su vez, se debe a la abundancia en ellos de clorofila, pero también los hay de otros colores (como amarillo o rojo) debido a la presencia en ellos de otros pigmentos. Los plastos coloreados reciben el nombre genérico de cromoplastos, y tienen como función transformar la energía electromagnética de la luz en energía química.
       

      La célula fúngica, otro modelo de organización eucariota
      Los hongos son organismos totalmente diferentes tanto de las plantas como de los animales. Sus células son muy sencillas, con unos pocos orgánulos; se parecen básicamente a las células vegetales (poseen pared celular, aunque sin celulosa, y presentan una gran vacuola central), aunque carecen de cloroplastos. La organización de su núcleo también es muy sencilla.


      sábado, 6 de febrero de 2010

      Una visita guiada a la célula

      (Adaptado de S. Berg)

      • La célula es el mínimo agrupamiento de materia que tiene todas las propiedades de la vida
        • Es el mínimo nivel de organización que puede considerarse vivo
        • Constituye la unidad básica de la vida
        • Realiza todas las funciones necesarias para mantenerse viva y reproducirse
      • Visión general de las células
        • Existen dos tipos básicos de células
          • Células procariotas
            • Corresponden a los organismos del Reino Moneras
            • No tienen núcleo
              • El material genético se encuentra en un área de la célula llamada nucleoide
            • Componentes visibles de todas las células procariotas
              • Membrana plasmática
              • Ribosomas 70S
                • El tipo de ribosomas permite distinguir entre células procariotas y eucariotas
              • Nucleoide
              • Citoplasma
            • Componentes visibles de algunas células procariotas
              • Pared celular (en casi todas)
              • Pili (cuando se reproducen sexualmente)
              • Flagelos
              • Mesosomas
              • Membranas fotosintéticas (algunas bacterias)
          • Células eucariotas
            • Se encuentran en cuatro reinos
              • Protistas
              • Hongos
              • Plantas
              • Animales
            • Tienen núcleo auténtico
              • Rodeado por una envuelta
              • El núcleo contiene el ADN celular
            • Componentes que están siempre presentes
              • Membrana plasmática
              • Citoplasma
              • Núcleo
              • Ribosomas 80S
              • Orgánulos subcelulares
              • Sistema endomembranoso
              • Citoesqueleto
                • Con diferentes características, pero todas las células eucariotas tienen algún tipo de citoesqueleto
            • Componentes presentes en algunos casos
              • Pared celular
              • Glucocálix
              • Ciertos orgánulos
      • Componentes de las células eucariotas
        • Núcleo
          • Es el elemento más visible de la célula
          • Su diámetro varía, pero está en torno a los 5μm de diámetro
          • Contenido nuclear
            • Cromosomas
              • Largas cadenas de ADN
                • En el hombre, llegan a los 4 cm; cada célula humana tiene casi 2m en total
                • Su número es característico de cada especie
              • En eucariotas el ADN está asociado a proteínas
                • Las proteínas hacen al ADN mucho más compacto
                • El máximo grado de compactación se alcanza durante la mitosis
            • Cromatina
              • ADN + proteína
          • Envuelta nuclear
            • Es una envoltura, no propiamente una membrana
            • Rodea al núcleo y lo separa del citoplasma
            • Está formada por dos membranas lipídicas
          • La envuelta nuclear tiene poros
            • Controlan la entrada y salida de moléculas
          • La envuelta nuclear se continúa con el retículo endoplásmico
          • Nucleolo
            • Es el lugar donde se sintetiza el ARNr
            • En él empiezan a ensamblarse los ribosomas
            • Solo está presente en células que no se están dividiendo
          • ARN mensajero
        • Ribosomas 80S
          • Se encuentran libres o adheridos al retículo endoplásmico
            • Los libres sintetizan proteínas solubles
            • Los adosados al retículo sintetizan proteínas de membrana o para la exportación
          • Compuestos por varias proteínas y varias moléculas de ARNr
          • Tienen dos subunidades de distinto tamaño; son activos cuando las subunidades están ensambladas.
        • Sistema endomembranoso
          • Las diferentes membranas del interior de la célula tienen un origen común
            • Envuelta nuclear
            • Retículo endoplásmico
            • Aparato de Golgi
            • Lisosomas
            • Vesículas de secreción
            • Vacuolas
            • Membrana plasmática
          • Envuelta nuclear
            • Se continúa con el retículo endoplásmico
            • Separa el material genético del citoplasma
          • Retículo endoplásmico
            • Red de túbulos, compartimentos y sacos aplanados interconectados
            • Encierra un espacio llamado "lumen"
            • Tipos de retículo endoplásmico
              • Rugoso
                • Dotado de ribosomas que le dan un aspecto "rugoso" al microscopio
                • Los ribosomas sintetizan proteínas de membrana
              • Liso
                • No presenta ribosomas
                • Sintetiza fosfolípidos
                • Se usa para la detoxificación de la célula
              • El conjunto de ambos retículos sintetiza la membrana celular
          • Aparato de Golgi
            • Vesículas formadas a partir del retículo endoplásmico
            • La membrana y el contenido de las vesículas sufren modificaciones al pasar por el Golgi
          • Lisosomas
            • Vesículas formadas por una sola membrana
            • Contienen enzimas hidrolíticos capaces de romper todos los tipos de macromoléculas celulares
            • Son centros de digestión y reciclaje celular
          • Vacuolas
            • Características de las células vegetales
            • Normalmente una única vacuola, que ocupa hasta el 90% del volumen celular
            • Rodeadas de una única membrana
            • Se usan como sistema de almacenamiento intracelular
              • Iones inorgánicos
              • Ácidos orgánicos
              • A veces enzimas hidrolíticas y sustancias tóxicas
          • Flujo de membrana en la célula
            • La membrana nueva se sintetiza en el retículo endoplásmico
            • Las vesículas de membrana salen del retículo y viajan hacia el aparato de Golgi
            • Las vesículas se fusionan entre sí para formar los dictiosomas del Golgi
            • La membrana y las proteínas son "marcadas" durante su paso por el Golgi
              • Las "marcas químicas" determinan el destino celular de los distintos componentes
        • Orgánulos productores de energía
          • Posiblemente originados por endosimbiosis de organismos primitivos
          • Cloroplastos
            • Se encuentran únicamente en las plantas
            • Rodeados por dos membranas totalmente separadas entre sí
              • Dejan un espacio intermembranoso esencial para su funcionamiento
            • En su interior aparecen sacos de membrana aplanados, llamados tilacoides
              • El interior de los tilacoides es continuo con el espacio intermembranoso
            • El espacio central del cloroplasto se denomina estroma
              • Incluye una molécula de ADN circular y cerrado y ribosomas 70S
            • Llevan a cabo la fotosíntesis
          • Mitocondrias
            • Se encuentran en todos los organismos eucariotas
            •  Rodeadas por dos membranas totalmente separadas entre sí
              • Dejan un espacio llamado espacio intermembranoso
            • La membrana interna presenta invaginaciones llamadas crestas
            • El interior de la mitocondria se denomina matriz
              • Contiene una molécula de ADN circular y cerrado y ribosomas 70S
          • En ambos casos, la energía se produce en la membrana interna, que tiene mucha más superficie que la externa
        • Citoesqueleto
          • Red de fibras interconectadas a lo largo de todo el citoplasma
          • Función del citoesqueleto
            • Algunas fibras proporcionan soporte mecánico
              • Importante para las células animales, porque no tienen pared
              • Puntos de anclaje para orgánulos y enzimas
            • Algunas fibras están relacionadas con la motilidad
            • Otras sirven como "caminos" para motores moleculares que se mueven respecto al citoesqueleto
          • Tipos de fibras del citoesqueleto
            • Microtúbulos
              • Tubos huecos formados por unión de proteínas globulares (tubulina)
              • Presentes en todos los eucariotas
              • No se contraen, proporcionan soporte a la célula y sirven de "pistas" para el movimiento de macromoléculas y orgánulos
            • Microfilamentos
              • Varillas macizas constituidas por unión de proteínas globulares (actina)
              • Pueden asociarse con otras proteínas
                • Actina-miosina: filamentos contráctiles
            • Filamentos intermedios
              • Su composición y estructura varía de unas células a otras
              • En algunos casos se usan como indicadores tumorales
        • Superficie celular
          • Pared celular: estructura rígida, externa a la membrana plasmática, que rodea algunos tipos de células
            • Vegetales: ayuda a distinguirlas de las células animales
            • También es frecuente en procariotas, hongos y protistas
            • Nunca aparece en células animales
            • Su estructura varía de un reino a otro
            • No es esencial para la vida
          • Pared celular vegetal
            • Mucho más gruesa que la membrana plasmática
            • Muy rígida y resistente
            • Composición
              • Fibras de celulosa
              • Embebidas en una matriz de otros polisacáridos
          • Uniones intercelulares
            • Plasmodesmos
              • Conexiones entre células vegetales
              • Suponen la conexión citoplasma a citoplasma entre dos células adyacentes
            • Desmosomas: unión física muy fuerte entre dos células
              • Reforzada por filamentos intercelulares
              • Función: mantener juntas las células
            • Uniones estrechas:
              • Cinturón que rodea totalmente la célula
              • No deja espacio entre células adyacentes
            • Uniones tipo "gap"
              • Permiten contacto citoplasma a citoplasma entre células animales
              • Hacen posible la difusión de pequeñas moléculas

        miércoles, 3 de febrero de 2010

        Estructura celular: células eucariotas

        El segundo gran modelo de organización celular es el característico de los organismos eucariotas, que incluyen a los protistas, los hongos, las plantas y los animales. Aunque existen diferencias significativas entre ellos, todos comparten la misma organización básica, caracterizada por la compartimentalización interna, posible gracias a la presencia de un sistema de membranas intracelular.

        La compartimentalización ofrece a la célula nuevas posibilidades; por una parte, los diferentes compartimentos pueden especializarse en funciones distintas, lo que facilita la coordinación entre distintas funciones celulares y la realización de varias al mismo tiempo. Por otra parte, las membranas intracelulares son utilizadas como mecanismo de producción de energía mediante la creación de gradientes quimiosmóticos en el interior de la célula (mitocondria, cloroplasto). Por último, los diferentes compartimentos pueden tener ambientes químicos distintos, incluso totalmente diferentes. Por ejemplo, el citoplasma de las células eucariotas es anaerobio, hasta el punto de que el oxígeno resulta tóxico en esa zona de la célula, mientras que la matriz mitocondrial es aerobia, y permite la utilización del oxígeno en procesos metabólicos.

        De hecho, se supone que el origen de las células eucariotas es el resultado de la necesidad de adaptarse a un ambiente químico diferente al que existía previamente. Según la hipótesis endosimibionte, antes de la revolución del oxígeno (la aparición de la fotosíntesis oxigénica que dio lugar a que la atmósfera acumulara oxígeno) solo existían células procariotas. La acumulación de oxígeno en la atmósfera propició la aparición de algunas células también procariotas capaces de utilizarlo en sus procesos metabólicos (las proto-mitocondrias), mientras que otras habrían evolucionado "englobando" con su membrana este tipo celular (y dando lugar a los eucariotas heterótrofos) o también a las células fotosintéticas (proto-cloroplastos), originando los eucariotas autótrofos. El sistema endomembranoso (los orgánulos como el retículo endoplásmico, el aparato de Golgi, las vacuolas o la membrana nuclear) habría evolucionado previamente a partir de invaginaciones de la membrana plasmática de la célula.


        Aunque no existe una "célula eucariota generalizada" es posible hacer un listado de todos los orgánulos y estructuras comunes a todas las células con este grado de organización, si bien hay que tener en cuenta que las células reales difieren siempre de este modelo simplificado.


        Las características generales de este tipo de células son las siguientes:
        • Nucleoplasma:
          • El material genético de la célula siempre está formado por varias moléculas.
          • Los cromosomas son moléculas de ADN de cadena doble, lineal y terminadas en secuencias de ADN especiales llamadas "telómeros"
          • El ADN está asociado a histonas.
          • El conjunto del material genético está rodeado de una doble membrana (membrana nuclear) formando un compartimento separado, el núcleo.
        • El material genético se replica mediante mitosis.
        • Organización del citoplasma:
          • Los ribosomas tienen un coeficiente de sedimentación de 80S (son algo más grandes que los bacterianos).
          • Poseen citoesqueleto y corrientes citoplasmáticas.
          • Existen orgánulos diferenciados, constituidos por membrana, con funciones especializadas.
        Aspectos generales de la organización eucariota

        El material genético de los procariotas es mucho más complejo que el de los procariotas. Consta siempre de varias moléculas, lo que supone una cantidad de información considerablemente mayor. Además, el ADN está organizado en forma de cromosomas, estructuras en las que un conjunto de proteínas (entre ellas las histonas) empaquetan y protegen el material genético propiamente dicho. Por último, el material genético y todos los compuestos relacionados directamente con su replicación y expresión están separados del resto del citoplasma por un sistema membranoso.

        La organización del citoplasma también es mucho más compleja: tiene una estructura de sostén, constituida por varios tipos de proteínas, que recibe el nombre de citoesqueleto. Además posee varios sistemas de membrana, diferenciados en estructura y función (orgánulos membranosos).

        Orgánulos comunes a todas las células eucariotas

        Las células eucariotas incluyen dos tipos diferentes de ribosomas: los de su citoplasma tienen un coeficiente de sedimentación (parámetro relacionado con su masa y con su forma) de 80S. Su subunidad mayor tiene un coeficiente de sedimentación de 60S y la pequeña de 40S. Este tipo de ribosomas se encuentran tanto libres en el citoplasma como adheridos a algunos sistemas de membrana del citoplasma, concretamente a una parte de su retículo endoplásmico. Los ribosomas libres se encargan de sintetizar las proteínas que la célula necesita en su citoplasma, mientras que los que están unidos al retículo se encargan de sintetizar proteínas que van a quedar en el interior del sistema endomembranoso (en el aparato de Golgi, en el retículo endoplásmico o en algunas vesículas especializadas, como los lisosomas) o que van a ser secretadas al exterior de la célula para que cumplan su función allí.

        Pero, por otra parte, las células eucariotas cuentan también con ribosomas 70S, idénticos a los que se encuentran en los procariotas, en el interior de sus orgánulos más complejos: mitocondrias y plastos. Este hecho, junto a la presencia de ADN circular y cerrado y la doble membrana de estos orgánulos, apoya la hipótesis endosimbionte para explicar su origen.

        Todas las células eucariotas poseen también vesículas o bolsas de membrana, de estructura sencilla (básicamente esféricas, o deformadas), que se diferencian entre sí fundamentalmente por su función. Entre esas estructuras se encuentran las vacuolas de las células vegetales (su nombre procede de vacuum, vacío, porque al microscopio no se aprecia su contenido; en realidad contienen líquido de composición diferente al citoplasma), las vesículas de transporte que se mueven entre diferentes orgánulos celulares llevando sustancias que no se mezclan con el citoplasma, o cuerpos más o menos especializados como los lisosomas, que contienen enzimas capaces de romper otras proteínas, y que no pueden mezclarse con otros componentes celulares sin riesgo de destruirlos. Los peroxisomas se ocupan de eliminar sustancias tóxicas de la célula mediante su oxidación.

        El siguiente nivel de complejidad en las estructuras intracelulares está constituido por los sistemas membranosos complejos (retículo endoplásmico liso y rugoso, aparato de Golgi y membrana celular), que pueden diferenciarse entre sí tanto por su morfología como por su función.

        El retículo endoplásmico liso es un conjunto de cisternas de membrana, típicamente en forma de tubo, que en su conjunto forman un sistema de tuberías interconectadas que recorren buena parte de la célula, aunque puede tener distintos aspectos en células diferentes. Su principal característica distintiva es que no presenta ribosomas adheridos. Las funciones que realiza son las siguientes:
        • Participa en la síntesis de lípidos (ácidos grasos, triacilglicéridos y fosfolípidos) y en el transporte de estas sustancias a través de la célula.
        • Posee enzimas detoxificantes, que metabolizan y eliminan el alcohol y otras sustancias químicas.
         El retículo endoplásmico rugoso es un conjunto de cisternas y conductos que se distribuye por toda la célula, aunque su aspecto más típico es el de un conjunto de sacos aplanados. El término "rugoso" que se utiliza para designarlo se refiere a su aspecto en las micrografías electrónicas, en las que se observa que su membrana presenta, hacia su cara citoplasmática, puntos oscuros que sobresalen de la línea de membrana. Se trata de ribosomas que se encuentran adheridos a la superficie de la membrana y que vierten las proteínas que sintetizan directamente al interior de las vesículas manteniendolas, por tanto, separadas del citoplasma. Las funciones que realiza son:
        • Síntesis de proteínas destinadas al interior de las vesículas de membrana (lisosomas), que se incorporan a las membranas (proteínas integrales de membrana) o destinadas a la secreción.
        • Glucosilación de proteínas.
        • Circulación intracelular de sustancias que no deben mezclarse con el contenido citoplasmático.
        El aparato de Golgi es un conjunto de sacos aplanados, que reciben el nombre de dictiosomas. Se encuentran apilados unos sobre otros, y típicamente tienen un aspecto curvado, en general con la cara convexa orientada hacia el núcleo. Sus funciones son, fundamentalmente:
        • Modificación química de diversas sustancias producidas en la célula, para que puedan adquirir su forma activa (glucosilación, fosforilación) o para identificar su destino final, dentro o fuera de la célula (se unen sustancias que actúan como señal, en particular oligosacáridos).
        • Secreción celular: todas las sustancias secretadas por la célula pasan por el aparato de Golgi.
        • Producción de membrana para otros sistemas celulares, como los lisosomas o la membrana externa de la célula.

        El núcleo celular es una estructura que contiene el material genético celular en el interior de un sistema membranoso. Los elementos que lo forman son:

        • La envoltura nuclear, una doble membrana que lo separa del citoplasma y que se continúa con el retículo endoplásmico rugoso. Al igual que éste, la cara externa de la membrana presenta ribosomas adosados. El sistema de doble membrana está atravesado por "poros", estructuras proteicas complejas que desempeñan una función de "diafragma", ya que tienen la posibilidad de cerrarse o abrirse, permitiendo la salida de moléculas de ARN.
        • La lámina nuclear, una zona situada inmediatamente por debajo de la zona interna de la membrana nuclear, formada por filamentos proteicos que tienen como función proporcionar sostén al núcleo.
        • El nuceloplasma es la zona poco diferenciada que contiene el resto de los elementos nucleares.
        • El nucleolo es una zona que presenta aspecto diferente al resto del núcleo. Se sabe que en él se está sintetizando activamente ARN ribosómico a lo largo de casi todo el tiempo.
        • La cromatina es el conjunto de material genético de la célula. Durante la interfase, es decir, mientras la célula está funcionalmente activa, se encuentra desespiralizada, por lo que no se observan los cromosomas. Por el contrario, durante los periodos de división, el ADN se empaqueta hasta formar los cromosomas, que sí pueden observarse.
        El retículo endoplásmico liso, el rugoso y la membrana nuclear están interconectados, formando un sistema endomembranoso cuyo espacio interno está interconectado.
        La mitocondria es uno de los orgánulos celulares de mayor complejidad. Está presente en la práctica totalidad de las células eucariotas. Al microscopio aparece como un cuerpo alargado, del tamaño y forma de un bacilo. La observación de su estructura permite apreciar que posee un sistema de dos membranas, separadas entre sí por una zona llamada espacio intermembranoso. La membrana interna suele presentar un conjunto de invaginaciones en forma de tabique que reciben el nombre de crestas mitocondriales.

        La presencia de las crestas mitocondriales indica que la mitocondria maximiza la proporción entre la superficie de su membrana interna y su volumen, lo que indica que la membrana interna tiene una importancia considerable en su funcionamiento. Se sabe, en efecto, que una parte importante de los procesos metabólicos que ocurren en la mitocondria se producen, precisamente, en su membrana interna.

        El interior de la mitocondria se denomina matriz mitocondrial, y es bastante similar al interior de una célula procariota. Al igual que estas células, presenta un genóforo propio, constituido por una única molécula de ADN bicatenario circular, cerrado y no asociado a histonas. Los genes de este genóforo se expresan en la mitocondria, y dan lugar a algunas (pero no a todas) de las proteínas que la mitocondria utiliza en su funcionamiento. También aparecen en la matriz mitocondrial ribosomas similares a los bacterianos, es decir, con un coeficiente de sedimentación de 70S y subunidades 50S y 30S. Estas características comunes con los procariotas refuerzan la hipótesis de su origen endosimbionte. También apoya esta hipótesis el hecho de que la mitocondria se reproduzca autónomamente dentro de la célula, replicando y transmitiendo su material genético a las nuevas mitocondrias, sin que haya relacion directa con los procesos generales de reproducción celular.

        En cuanto a las funciones mitocondriales, la más importante es la de proporcionar energía al resto de la célula, gracias a que en su interior (matriz celular y membrana interna) ocurren algunas de las rutas metabólicas más importantes: el ciclo de Krebs, la fosforilación oxidativa y la β-oxidación. Puesto que la mitocondria es el único orgánulo celular capaz de utilizar el oxígeno, es en su interior donde finalizan los procesos degradativos de los combustibles metabólicos. Algunas de estas rutas metabólicas, en particular el ciclo de Krebs, sirven también para proporcionar a la célula sustancias que intervienen en diferentes procesos celulares (intermediarios metabólicos).

        El citoesqueleto o esqueleto celular es un conjunto de estructuras filamentosas de naturaleza proteica entre cuyas funciones destacan mantener la forma celular, o permitir sus cambios, permitir la movilidad o inmovilidad de los orgánulos y participar en la división del citoplasma celular (citocinesis) durante los procesos de división celular.
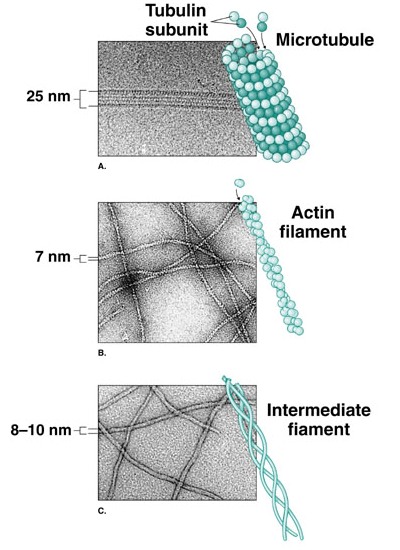
        El citoesqueleto tiene tres tipos de componentes fundamentales: filamentos de actina (microfilamentos), filamentos intermedios y microtúbulos.
        • Los microfilamentos son fibras de unos 7 nm de diámetro, constituidas por dos cadenas de actina. La actina es una proteína globular que puede formar largas cadenas por unión de un gran número de moléculas individuales. Para formar los microfilamentos, dos de estas cadenas constituidas por actina polimerizada se enrollan entre sí formando una espiral. Aparecen especialmente por debajo de la membrana celular, formando una especie de malla que contribuye a mantener la forma de la célula. También son abundantes en las protuberancias celulares (microvellosidades, pseudópodos) o en zonas en las que se dan procesos de comunicación intercelular. Por último, la combinación de la actina con la miosina permite la contracción celular, por ejemplo en las fibras musculares.
        • Los filamentos intermedios son ligeramente más gruesos que los microfilamentos. En realidad se usa este nombre para referirse a fibras celulares de diferente composición, que básicamente participan en el mantenimiento de la estructura de la célula, mediante el establecimiento de una red tridimensional que se extiende por toda la célula a modo de un andamiaje interno.
        • Los microtúbulos son cilindros huecos de unos 25 nm de diámetro. En un corte transversal, se observa que el cilindro está formado por trece filamentos que, a su vez, son el resultado de la polimerización de una proteína globular, la tubulina que, a su vez, tiene dos subunidades. Los microtúbulos son estructuras muy dinámicas, que pueden formarse o deshacerse según las necesidades de la célula. Su crecimiento tiene lugar en una única dirección, por lo que se dice que están polarizados (uno de sus extremos, el +, es el que crece, mientras que el otro, llamado -, es el lado por el que se van separando las moléculas de tubulina). En general, los microtúbulos están asociados siempre a una estructura llamada centro organizador de microtúbulos. Pueden existir varios de estos orgánulos en la célula, por ejemplo los corpúsculos basales de cilios y flagelos, o los centriolos, pero en todo caso parecen encargarse de dirigir la polimerización y despolimerización de los microtúbulos relacionados con ellos.
        La animación anterior muestra un modelo de la polimerización y despolimerización de los microtúbulos.
        Las funciones que realizan los microtúbulos son:
        • Contribuyen a mantener la forma de la célula.
        • Participan en el transporte de partículas y orgánulos por el citoplasma

        •  Forman parte del huso acromático, que interviene en la división celular de las células animales.
        • Forman parte de los cilios y flagelos, y de los centríolos en las células que los presentan.

          viernes, 29 de enero de 2010

          La membrana, estructura celular universal

          Si hay una estructura que se ha mantenido básicamente constante a lo largo de la evolución de los seres vivos, indicando la importancia que tiene para su supervivencia, es la membrana plasmática. Su composición básica, su estructura y las funciones que desempeña en los organismos son, fundamentalmente, las mismas en todos los seres vivos, incluso en los que más se diferencian entre sí.

          Las membranas biológicas actúan como límite de todas las células vivas. Además, constituyen también el límite de los orgánulos de los eucariotas. Pero, además de servir para delimitar la célula, las membranas desempeñan papeles fundamentales en su funcionamiento:
          • Actúan como barrera que condiciona el intercambio de sustancias entre la célula y su entorno. Pero se trata de una barrera de permeabilidad selectiva, es decir, que permite el paso de ciertas sustancias impidiendo al mismo tiempo el de otras, en función de las necesidades de la célula en cada momento.
          • Participa en los procesos de división celular, contribuyendo a la partición del citoplasma. En las bacterias, además, parece jugar un cirto papel también en la división del material genético.
          • Contribuye a la producción de energía química aprovechable por la célula, acoplando la creación de gradientes químicos a la síntesis de ATP. En estos procesos se aprovecha, precisamente, la selectividad de la membrana ante el paso de sustancias química.
          • Forman parte de los sistemas de transferencia de información: la membrana es la estructura que recibe los "mensajes químicos" o los estímulos eléctricos procedentes de otras células del organismo o del exterior.
          • Intervienen en los procesos de identificación intercelular, en particular en los organismos pluricelulares. La membrana, como superficie externa de la célula que es, incorpora elementos que permiten que las células del sistema inmunitario identifique a la célula como propia o como extraña.
          • Permiten la creación de ambientes químicamente diferenciados en el interior de la célula, compartimentalizando sus funciones, lo que permite una mayor complejidad en el funcionamiento de la célula.
          Composición de las membranas biológicas

           Todas las membranas biológicas comparten, a grandes rasgos, la misma composión: aproximadamente las dos terceras partes de sus moléculas son lípidos, mientras que el tercio restante son proteínas. Los lípidos más abundantes en la membrana son de naturaleza anfipática, en particular fosfatidilglicéridos. En cuanto a las proteínas de membrana, incluyen tanto holoproteínas como gluco y lipoproteínas.

          Los lípidos más abundantes en las membranas biológicas son los fosfatidilglicéridos, formados por una molécula de glicerol a la que están unidos dos ácidos grasos y un grupo polar (fosfato unido a otra molécula también polar), lo que les proporciona una naturaleza anfipática: una parte de la molécula (la cabeza formada por el glicerol, el fosfato y la otra molécula polar) es hidrófila, bien soluble en agua, mientras que la otra zona, la constituida por los ácidos grasos (cuyos enlaces son apolares) es hidrófoba, insoluble en agua. En el siguiente enlace puedes ver un modelo tridimensional de una molécula de fosfatidilcolina, uno de estos compuestos.

          Los glucolípidos, en particular los esfingolípidos, también son compuestos habituales de las membranas, aunque en menor proporción. Por último, los esteroles (fundamentalmente el colesterol) juegan un papel importante en las membranas de las células animales.

          Las proteínas realizan funciones diferentes en la membrana. Según su grado de integración en ella se distinguen proteínas periféricas, unidas débilmente a una de las superficies de la membrana, especialmente a la cara interna, o integrales, claramente insertadas en la membrana. Entre estas también se puede distinguir entre las proteínas que se encuentran en una de las caras (las de la cara interna son diferentes a las de la cara externa, en la que son bastante abundantes las glucoproteínas) y las transmembrana que, como su nombre indica, la atraviesan por completo.


          Estructura de la membrana

          Los lípidos de la membrana se disponen en ella formando una lámina cuya estructura recuerda a la de un panel de madera contrachapada: la zona central está ocupada por las partes hidrofóbicas de las moléculas, (las cadenas de ácidos grasos) que se mantienen próximas entre sí tanto gracias a las interacciones hidrofóbicas de atracción que se establecen entre ellas comoa la repulsión que ejercen las moléculas hidrófilas de su entorno. En cuanto a las zonas hidrófilas, forman  las dos superficies  externas de la lámina, que se mantienen próximas al entorno acuoso. Las proteínas se incluyen en esta estructura básica, bien adhiriéndose a una de las caras de la membrana (proteínas periféricas), bien integrándose profundamente en ella. En algunos casos, incluso, llegan a atravesar la membrana en su totalidad (proteínas transmembrana).

          La primera consecuencia de esta disposición es que la membrana se comporta como una estructura estable en entornos acuosos, gracias a que sus superficies de contacto tienen naturaleza hidrófila. Pero, por otra parte, su zona central hidrófoba impide el paso de sustancias polares a su través, por lo que la membrana en su conjunto se hace impermeable al agua y a las sustancias de naturaleza similar. De este modo, las estructuras rodeadas por membrana se mantienen aisladas de su entorno, sin que (en principio) puedan producirse intercambios de sustancias entre el interior y el exterior de tales estructuras.

          El modelo quese utiliza para describir la estructura de las membranas biológicas recibe el nombre de modelo de "mosaico fluido", haciendo referencia a dos de las características más determinantes de la membrana:
          • La membrana es un mosaico porque su composición no es homogénea en toda su superficie. Esto significa que ni los lípidos ni las proteinas que forman parte de la membrana se encuentran distribuidos en ella de un modo aleatorio, sino que algunos componentes son más abundantes en ciertas zonas, mientras que pueden incluso llegar a faltar en otras. Esta heterogeneidad en la distribución de los componentes celulares tiene importantes consecuencias en el funcionamiento de la membrana. En particular, las proteínas de membrana se distribuyen específicamente en las zonas de la misma en las que van a resultar útiles para la célula.
          • La membrana se encuentra en un estado que prácticamente podríamos considerar como fluido, lo que permite que sus componentes se desplacen lateralmente a lo largo de toda su extensión. De este modo, es posible que una molécula integrada en la membrana se desplace a lo largo de la misma de un punto a otro. Una visión más detallada del funcionamiento de las membranas celulares ha llevado a proponer el modelo de "balsas de membrana", según el cual hay zonas más rígidas, que actúan como "balsas" flotando en un entorno más fluido. En tales balsas suelen mantenerse fijadas ciertas proteínas que la célula necesita mantener siempre en la misma posición. En las células animales, la molécula que se ocupa de mantener cohesionadas las balsas y de forzar a que se comporten de un modo rígido es el colesterol.


          Permeabilidad de membrana

          La estructura de las membranas biológicas hace que éstas no sean estrictamente impermeables, sino que permitan el paso de ciertas sustancias, mientras que impiden completamente el de otras, en función de sus características químicas:
          • Los gases, las moléculas hidrófobas y las moléculas hidrófilas de pequeño tamaño (como el agua o el etanol) pueden difundirse a través de la membrana.
          • Las moléculas cargadas (como los iones) o las moléculas hidrófilas de tamaño mediano o grande (monosacáridos, aminoácidos...) no pueden atravesar la membrana.
          En todo caso, el paso de sustancias a través de la membrana cumple estrictamente las leyes químicas: se produce en ambos sentidos, y el flujo neto de moléculas va desde la zona donde la concentración es mayor a donde es menor (a favor del gradiente de concentración).

          Sin embargo, el hecho de que no todas las sustancias puedan atravesar la membrana libremente hace que puedan existir diferencias de concentración de esas moléculas a ambos lados de la membrana que no pueden ser eliminadas por entrada o salida de los solutos. Este desequilibrio se resuelve gracias a que el agua sí que puede difundirse a través de la membrana, por lo que, cuando una sustancia no atraviesa la membrana, el agua tiende a compensar la diferencia de concentración de dicho compuesto pasando desde la zona donde la concentración de esa sustancia es menor hacia la zona en la que es mayor (o, lo que es lo mismo, desde donde la disolución tiene más agua a la zona donde hay menos agua).

          Debido a esto se producen en las células diferentes fenómenos osmóticos, según la diferencia de concentración de sustancias que no se difunden a ambos lados de la membrana:
          • Cuando el medio es hipotónico (es decir, la concentración de solutos que no pueden atravesar la membrana es menor en el exterior de la célula que en su interior) el agua tiende a igualar esa diferencia de concentración, introduciéndose en la célula para diluir el contenido de la misma.
            • En las células animales este proceso termina con la "explosión" de la célula, debido al aumento de la presión osmótica en su interior.
            • En las células vegetales, la presencia de la pared celular impide que la célula reviente, pero en todo caso su citoplasma se hincha y presiona sobre la pared, dando lugar a la "turgencia celular"

          • Cuando el medio extracelular es hipertónico (está más concentrado que el citoplasma) el proceso es exactamente el inverso: el agua tiende a salir de la célula, para igualar las concentraciones de sustancias no difusibles a ambos lados de la membrana. Tanto en las células animales como en las vegetales, la pérdida de agua hace que el citoplasma se "arrugue", llegando a sufrir "plasmolisis", es decir, rotura celular.


          •  Si el medio es isotónico, es decir, si la concentración de solutos es igual en el interior que en el exterior de la célula, no se detiene el paso de sustancias a través de la membrana, sino que entra el mismo número de moléculas que sale. La célula está en equilibrio osmótico global con su entorno, lo que no significa que no siga intercambiando sustancias con él.

          El transporte a través de la membrana y el funcionamiento de la célula

          El transporte de sustancias a través de la membrana celular tiene cuatro objetivos primordiales: proporcionar nutrientes a la célula, permitir el intercambio de gases con su entorno, la excreción de los residuos del metabolismo y el mantenimiento del pH y de la concentración salina intracelular. Para conseguir esto es necesario que la membrana permita el paso a su través de ciertas sustancias que, debido a su naturaleza química, no podrían atravesarla. El mecanismo a través del cual la célula consigue que dichas sustancias entren o salgan de la célula es mediante la presencia en la membrana de transportadores específicos, ciertos tipos de proteínas que permiten el paso a través de la membrana de moléculas que, por sus características químicas, no pueden atravesarla por difusión.


          Los transportadores de membrana funcionan, en todo caso, de acuerdo con los principios químicos fundamentales: son bidireccionales (permiten el paso tanto en un sentido como en otro) y las moléculas los atraviesan siguiendo la dirección del gradiente de concentración, es decir, desde la zona en la que están más concentrados a la de menor concentración.

          La combinación entre la naturaleza semipermeable de la membrana (que permite el paso de ciertas sustancias, pero no de otras) y la presencia en ella de transportadores específicos da lugar a una característica fundamental de las membranas biológicas: su permeabilidad selectiva. Es decir, las membranas biológicas permiten el paso a su través de aquellas sustancias que la célula debe dejar pasar para que su funcionamiento sea correcto, impidiendo la entrada o la salida de otras. Esta selectividad no es, sin embargo, perfecta, lo que explica que ciertos tóxicos puedan atravesar la membrana, llegando a dañar la célula.

          Un caso particular de este tipo de transportadores son los canales iónicos, que permiten el paso de este tipo de especies químicas. Aunque algunos canales iónicos están permanentemente abiertos, la mayoría se abren o se cierran como respuesta a ciertos estímulos, como la presencia de una sustancia química (canales dependientes de ligando) o la existencia de una diferencia de potencial entre ambos lados de la membrana (canales dependientes de voltaje).

          Gradientes quimiosmóticos

          El carácter semipermeable de las membranas provoca que las sustancias que no pueden atravesar la membrana mediante difusión se encuentren a diferentes concentraciones a ambos lados de la misma, generando lo que se denomina un gradiente quimiosmótico (diferencia de concentración de una sustancia a través de la membrana). En cierto sentido, los gradientes químicos actúan como una "fuente de energía" química: la tendencia al equilibrio de los sistemas químicos trata de forzar el paso de las moléculas para anular el gradiente. Si ese paso es posible, el proceso se puede acoplar a otro, que necesite energía, de modo que ambos ocurren simultáneamente.

          Existen varios tipos de procesos que pueden acoplarse a los gradientes quimiosmóticos. Entre ellos se cuentan:
          • El transporte de otras sustancias en contra de su propio gradiente de concentración.
          • La producción de otras formas de energía química. En concreto, la compensación de un gradiente quimiosmótico de protones es utilizada por la célula para sintetizar ATP en los procesos de fosforilación oxidativa (respiración celular) y fotofosforilación (fotosíntesis).
          Transporte de sustancias en contra de gradiente

          En bastantes ocasiones, el funcionamiento de la célula requiere mantener concentraciones diferentes de ciertas sustancias a ambos lados de la membrana celular. Esto es, evidentemente, opuesto a la tendencia espontánea del sistema, por lo que su mantenimiento necesita un aporte de alguna forma de energía. Una de las posibilidades que tiene la célula para llevar a cabo este proceso es acoplar el transporte contra gradiente de una sustancia al transporte simultáneo de otra sustancia a favor de gradiente de concentración. Si las dos sustancias (la que se mueve a favor de gradiente y la que lo hace en contra de gradiente) atraviesan la membrana en la misma dirección el mecanismo recibe el nombre de simporte, mientras que si lo hacen en direcciones opuestas se denomina antiporte.

          Simporte:

          Antiporte:
          Por último, las células también pueden utilizar otra fuente de energía química, en general la hidrólisis de ATP, para bombear moléculas en contra de gradiente de concentración. En ese caso se dice que se produce un transporte activo.

          miércoles, 20 de enero de 2010

          Estructura celular: células procariotas

          Existen dos grandes tipos de organización celular, que se diferencian significativamente entre sí. Las diferencias más importantes se recogen en la siguiente tabla:

          Procariotas
          Eucariotas
          Genóforo
          Nucleoplasma

          Un solo cromosoma

          Varios cromosomas

          ADN de cadena doble, circular y cerrado covalentemente

          ADN de cadena doble, lineal y terminado en telómeros

          No existe membrana nuclear

          Existe membrana nuclear
          ADN no asociado a histonas
          ADN asociado a histonas
          Replicación del material
          genético
          : no ocurre mediante mitosis
          Replicación del material
          genético
          : ocurre mediante mitosis
          Organización del citoplasma
          Organización del citoplasma
          No tienen orgánulos formados o rodeados por membrana
          Con orgánulos formados o rodeados por membrana
          No tienen citoesqueleto ni corrientes citoplasmáticas
          Poseen citoesqueleto y corrientes citoplasmáticas
          Ribosomas 70 S
          Ribosomas 80 S (y 70 S en algunos orgánulos)

          Células procariotas

          La organización más simple, y evolutivamente más antigua, es la de las células procariotas. Este tipo celular se encuentra presente exclusivamente en el Reino Moneras, y los organismos que las presentan son siempre unicelulares. En general presentan un tamaño bastante reducido, entre uno y unos pocos micrómetros, lo que las hace comparables a algunos orgánulos presentes en las células eucariotas.

          Aunque estructuralmente estas células son bastante sencillas, existe una gran variabilidad entre ellas, de modo que algunas estructuras son comunes a todas, mientras que otras solo aparecen en ciertos grupos. En el listado que aparece a continuación, las estructuras indicadas en cursiva solo están presentes en algunos tipos bacterianos, mientras que las marcadas con letra negrita están siempre presentes. Las estructuras se ordenan desde el medio externo hacia el interior de la célula:
          • Cápsula o capa mucilaginosa, capa S paracristalina o vaina: son estructuras de protección, generalmente formadas por glucoproteínas. Son frecuentes en bacterias patógenas.
          • Botones de anclaje: permiten a las bacterias que los presentan adherirse al sustrato.
          • Pared celular: en realidad está presente en todos los grupos de bacterias, excepto en los Micoplasmas.
          • Protoplasto, que a su vez se compone de:
            • Membrana plasmática, en la que pueden presentarse (o no) invaginaciones.
            • Citoplasma, en el que se incluye
              • Genóforo, el material genético, formado por una sola molécula que recibe el nombre de cromosoma bacteriano.
                • En algunas estirpes bacterianas aparece material genético suplementario en forma de moléculas de ADN circulares, de tamaño mucho menor que el cromosoma bacteriano, llamadas plásmidos.
              • Ribosomas, con un coeficiente de sedimentación 70S
              • Inclusiones, depósitos de materiales de reserva que se acumulan en forma de gránulos cristalinos
              • Orgánulos no rodeados por membrana, que realizan funciones específicas.
              • Flagelos, que hacen posible el movimiento de la bacteria
              • Fimbrias o pelos, que pueden tener diferentes funciones.

          La pared celular es la principal cubierta de protección de prácticamente todas las bacterias, con la única excepción de los Micoplasmas. Se trata de una estructura gruesa y resistente, que se encuentra hacia el exterior de la membrana plasmática, y que proporciona resistencia mecánica a la célula. Existen dos tipos de paredes, que a su vez dan lugar a dos grandes tipos de bacterias, que se comportan de modo distinto ante los antibióticos. La diferencia en composición y estructura de ambos tipos de pared se manifiesta en su comportamiento frente a una técnica de tinción muy utilizada en Microbiología, la tinción de Gram. Algunos grupos de bacterias no se tieñen cuando se utiliza este colorante, que se fija específicamente a la pared bacteriana, por lo que reciben el nombre de bacterias gram negativas, mientras que la pared de otras bacterias sí retiene el colorante, por lo que reciben el nombre de bacterias gram positivas. Ambos tipos tienen un componente común, el peptidoglucano. Se trata de un polímero complejo, formado por dos derivados de monosacáridos, la N-acetilglucosamina y el ácido N-acetilmurámico. Este compuesto está unido a un tetrapéptido en el que aparecen aminoácidos raros (como la D-alanina), llamado ácido teicoico, y los pentapéptidos se unen entre sí mediante otros péptidos. El conjunto forma un entramado tridimensional.

           
          Las bacterias gram positivas tienen una pared sencilla, formada por varias capas superpuestas de peptidoglucano al que se unen moléculas de ácidos teicoicos. Por su parte, la pared celular de las gram negativas es más compleja: hacia el exterior de la membrana plasmática aparece un espacio, llamado espacio  periplásmico, rodeado de una fina capa de peptidoglucano. Por fuera del peptidoglucano aparece otra, capa la membrana externa, que tiene la misma estructura que la membrana plasmática, incluyendo la presencia de proteínas que actúan como transportadores (porinas). Algunas especies poseen también una capa proteica que rodea la membrana externa, y que recibe el nombre de capa S.


          La membrana plasmática de las células procariotas tiene las mismas características que la de las eucariotas, por lo que las analizaremos conjuntamente.

          El citoplasma bacteriano carece casi por completo de estructuras diferenciadas. Aparecen algunos gránulos que corresponden a acúmulos de sustancias de reserva y ribosomas, que se diferencian de los eucariotas en su coefiente de sedimentación (característica relacionada tanto con su tamaño como con su forma), pero que son similares a los que aparecen en el interior de algunos orgánulos (mitocondrias y plastos): tanto los bacterianos como los de dichos orgánulos tienen un coeficiente de sedimentación de 70S, y están formados por dos subunidades cuyos coeficientes de sedimentación son 50S y 30S, mientras que los ribosomas citoplasmáticos de los eucariotas tienen un coeficiente de sedimentación 80S, siendo sus subunidades de 60S y 40S.

          El material genético bacteriano no forma un auténtico núcleo, aunque está en una zona del citoplasma más o menos diferenciada, razón por la cual recibe el nombre de nucleoide. En algunas imágenes parece estar relacionado con la membrana plasmática a través de una estructura denominada mesosoma.


          En cuanto a su organización, el genoma bacteriano está formado por una única molécula de ADN de doble cadena, con la estructura típica propuesta por Watson y Crick. Dicha molécula se cierra sobre sí misma, de modo que no tiene extremos, sino que forma un círculo. La molécula está superenrollada, lo que significa que la doble hélice da varias vueltas sobre sí misma antes de cerrarse. Parece ser que la razón para que el material genético esté superenrollado es básicamente compactarlo, por lo que es necesario eliminar esta situación cuando debe ser leído (expresión génica o replicación). El superenrollamiento y la relajación de la molécula de ADN se producen por la acción de un tipo particular de enzimas, las topoisomerasas.

          En muchos casos, además del cromosoma bacteriano pueden aparecer moléculas de ADN suplementarias, mucho más pequeñas que el genóforo principal,  también cerradas sobre sí mismas, que reciben el nombre de plásmidos. Los plásmidos son material genético accesorio,  que en principio no son imprescindibles para la supervivencia de la bacteria, hasta el punto de que pueden aparecer en algunas bacterias pero no en otras de la misma especie.  Sin embargo, eso no significa que no tengan importancia: muchos plásmidos incluyen genes que proporcionan a las bacterias que los presentan características ventajosas, como la resistencia a antibióticos.
          Los plásmidos son transmisibles: algunas bacterias tienen capacidad para transferirlos a otras, en un proceso denominado conjugación, en el que la segunda bacteria adquiere las características de la primera, mientras que ésta las mantiene.


          Además, los plásmidos pueden recombinarse entre sí, reuniendo los genes en una misma molécula. En estos procesos intervienen enzimas bacterianas capaces de cortar el ADN en secuencias específicas complementarias entre sí, y de unir los fragmentos resultantes de ese corte, llamadas restrictasas (las que cortan) y ligasa (la que une los fragmentos). El descubrimiento de estas características y de las enzimas responsables de este proceso supuso el inicio de la ingeniería genética, porque abrió la puerta a la introducción de genes extraños en estos organismos.

          lunes, 18 de enero de 2010

          Aproximación al estudio de la célula

          Uno de las teorías fundamentales de la Biología es la Teoría Celular, cuya formulación ha requerido un proceso largo y paulatino, desde la observación de las primeras células por Leeuwenhoek en el siglo XVII hasta su generalización con el descubrimiento, por parte de Ramón y Cajal, de que las neuronas son también células individualizadas.

          En su formulación actual, la Teoría Celular explica la estructura de todos los seres vivos, desde los más simples a los más complejos, a la vez que establece un nexo evolutivo entre todos los organismos que han existido a lo largo de la historia de la Tierra.

          Los postulados actuales de la Teoría Celular son los siguientes:
          • Todos los seres vivos están formados por células.
          • La célula es la unidad de estructura y función de los seres vivos. Esto significa, por una parte, que la célula es la parte más pequeña común a todos los seres vivos (estructura básica), y que además es capaz de realizar por sí misma todas las funciones que caracterizan el funcionamiento de los organismos.
          • La célula es también la unidad de reproducción de los organismos, ya que es el elemento más pequeño con capacidad de reproducirse por sí mismo.
          • Todas las células proceden de otra, similar a ellas desde el punto de vista genético, estructural y funcional. La única excepción que existe a este postulado es, evidentemente, la primera célula que apareció, que se formó a partir de una estructura más sencilla.
          • La célula es también la unidad de vida independiente más sencilla, ya que existen muchos organismos formados por una única célula.
           Todas las células que existen presentan ciertas características comunes, que las relacionan evolutivamente entre sí:
          • Una membrana, que separa la célula del medio externo, seleccionando las sustancias químicas que entran y salen de la célula.
          • El citoplasma, el medio interno de la célula, que incluye todos los componentes y elementos necesarios para el funcionamiento celular.
          • La información genética, imprescindible para controlar la actividad celular, y que se encuentra siempre almacenada en una o varias moléculas de ADN.

          A pesar de estas características comunes, existen grandes diferencias entre unos tipos celulares y otros. Básicamente, pueden distinguirse dos niveles de organización diferentes: las células procariotas son las más sencillas, y se encuentran exlcusivamente en los organismos del Reino Moneras. Se caracterizan porque su citoplasma no está dividido en compartimentos, ni tienen orgánulos formados por estructuras membranosas. Su material genético es simple y reducido, ya que se limita a una única molécula de ADN no asociada a histonas y que se cierra sobre sí misma formando un anillo.


          El otro nivel de complejidad es el que caracteriza a las células eucariotas, que se presentan en el resto de los organismos. Aunque existen varios tipos de células eucariotas todas ellas tienen características comunes: tienen el citoplasma dividido en diferentes compartimentos separados entre sí por membrana, presentan también orgánulos especializados formados por membranas y su material genético es complejo, incluyendo siempre varias moléculas diferentes, llamadas cromosomas, en las que el ADN no se cierra sobre sí mismo y está asociado a histonas.


          Métodos de estudio de la célula

          El reducido tamaño de las células ha hecho difícil su estudio durante mucho tiempo. En la actualidad, gracias al avance tecnológico, se dispone de una gran variedad de métodos que permiten conocer tanto su composición como su estructura, e incluso el estudio de sus funciones in vivo. Un posible esquema de este tipo de estudios sería el siguiente:
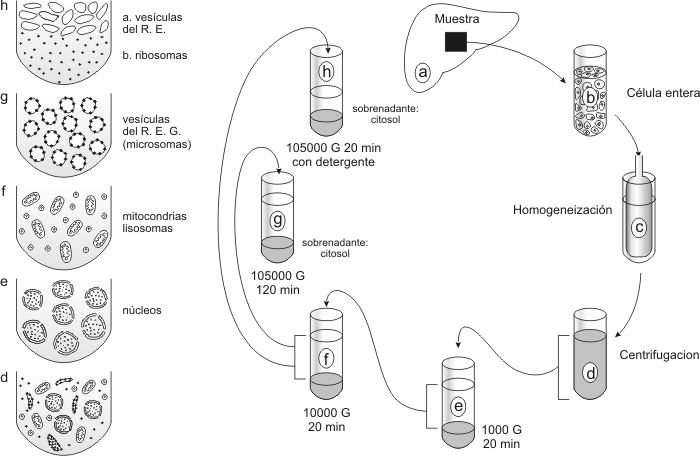
          • Métodos analíticos: pretenden el estudio de las partes de la célula, para lo cual es necesario fraccionarla y separar los distintos elementos que resultan de ese fraccionamiento. La rotura de las células se hace mediante sonicación (aplicación de ultrasonidos), digestión con detergentes u homogenización (rotura mecánica). Los componentes celulares liberados en este proceso se separan mediante centrifugación diferencial, técnica que se basa en que las partículas subcelulares tienen diferente densidad. Si se hace girar estos componentes en un medio con un gradiente de densidad (menor en la parte superior del tubo, mayor en la inferior) a grandes velocidades se consigue que los elementos con diferentes densidades se depositen en distintas partes del tubo, separándolos entre sí.


          • Técnicas bioquímicas: una vez separados los componentes celulares permiten el estudio de las diferentes sustancias presentes en la célula. Para ello, en primer lugar se utilizan técnicas que separan los grandes grupos de compuestos en función de sus características generales, y después otras que permiten separar sustancias similares entre sí, por ejemplo la electroforesis, que se utiliza para separar sobre todo proteínas según su punto isoeléctrico, o la cromatografía en columna, que permite separar moléculas por su tamaño (filtración en gel) o por su afinidad por determinados sustratos (lo que, por ejemplo, permite separar una enzima uniéndola a su sustrato). Puedes ver el funcionamiento de algunas de esas técnicas en las siguientes animaciones:
          • La autorradiografía permite seguir ciertas moléculas durante su "ciclo de vida" en el interior de la célula. Consiste, básicamente, en marcar la molécula cuyo destino nos interesa seguir uniéndole un isótopo radiactivo, cultivar las células con la molécula marcada y detectar la radiación a intervalos regulares de tiempo.


          • Técnicas de microscopía: La microscopía resulta particularmente útil para el estudio de la estructura celular, ya que en algunos casos permite visualizar los diferentes elementos que forman parte de la célula. Básicamente, existen dos grandes tipos de técnicas microscópicas: la microscopía óptica consigue una imagen aumentada utilizando luz visible, mientras que la microscopía electrónica proporciona una imagen aumentada utilizando electrones como "fuente de iluminación", aprovechando su menor longitud de onda. Los parámetros importantes en la microscopía son el aumento, que se define como la proporción entre el tamaño aparente de la imagen y el tamaño real de la muestra, y el poder de resolución, que es la capacidad del microscopio para formar imágenes diferentes de dos puntos cercanos. El poder de resolución depende de la apertura de la lente, una característica que mide la capacidad de la lente de recoger la luz, del índice de refracción del medio y de la longitud de onda de la radiación utilizada para formar la imagen.
          •  


              • La microscopía óptica consiste en hacer pasar la luz a través de la muestra que se desea observar y de dos lentes convergentes, que aumentan el tamaño aparente de la imagen. Además, se utilizan como complementos necesarios en el proceso una fuente de luz y un condensador, que concentra la luz sobre la muestra. En general, las muestras biológicas son prácticamente transparentes, por lo que apenas se observan en el microscopio. Suele ser necesario teñir las células utilizando diferentes sustancias, lo que, en general, supone matar la célula. Existen diferentes técnicas de microscopía óptica (campo claro, campo oscuro, contraste de fases...) que permiten observar características diferentes de la muestra. Algunas de estas técnicas permiten, incluso, la visualización de células vivas.
              • La microscopía electrónica se basa en que los electrones, como todas las partículas, se comportan en ocasiones como ondas. La longitud de esta radiación es mucho menor que la de la luz visible, lo que permite conseguir un poder de resolución mucho mayor que el que se logra con la microscopía óptica. El proceso consiste en hacer incidir sobre la muestra un haz de electrones focalizado mediante un electroiman, y recogerlos después en un sensor (una pantalla sensible o una placa fotográfica). Según el camino que sigan los electrones se distinguen dos tipos de microscopía electrónica:
                • En la microscopía electrónica de transmisión (TEM) el haz de electrones atraviesa un corte fino de la muestra. Las zonas más densas impiden el paso de los electrones, por lo que dejan una zona oscura o negra en la imagen. Posee el mayor poder de resolución de todas las técnicas de microscopía.
                • En la microscopía electrónica de barrido (SEM), en cambio, se recubre una muestra sin cortar con una fina capa metálica, que impide el paso de los electrones, haciéndolos rebotar. Los electrones reflejados son recogidos por el sensor, de forma que éste da una imagen aproximada del relieve de la muestra.
            • Cultivo celular: el estudio de la fisiología de la célula suele hacer necesario que ésta se mantenga viva, y al alcance del investigador. El mantenimiento de células en un medio artificial y controlado del que obtienen nutrientes se denomina cultivo celular. El cultivo de células procariotas o fúngicas es sencillo, hasta el punto de que se consigue hacerlo en grandes tanques de miles de litros llamados fermentadores, porque los requisitos de este tipo de organismos unicelulares también son sencillos. Los cultivos de células procedentes de organismos pluricelulares, en particular de animales, resultan más complicados, y requieren condiciones de esterilidad y un control riguroso del medio que se proporciona a las células.